La producción de leche y la capacidad de digerir su azúcar durante la vida adulta tienen historias distintas. Una comunidad puede criar animales lecheros, elaborar queso y transmitir esas técnicas a sus descendientes aunque la mayoría de sus integrantes reduzca la producción intestinal de lactasa después de la infancia. También puede ocurrir lo contrario, que una variante genética que mantiene esa producción circule en una población que apenas consume leche. Relacionar ambas historias exige explicar cuándo se encuentran, qué consecuencias tiene el encuentro y de qué manera se conserva lo que cada generación recibe.
Esa separación plantea el problema de la coevolución. Las prácticas aprendidas modifican las condiciones bajo las cuales se expresan y se seleccionan variantes biológicas, mientras las capacidades y restricciones de los organismos influyen sobre las prácticas que pueden aprenderse, mantenerse o difundirse. Parte del ambiente transformado permanece disponible para quienes llegan después. La evolución resultante depende del acoplamiento entre procesos con tiempos de transmisión diferentes (Laland et al., 2000, 2010).
Una explicación satisfactoria debe identificar esos procesos, dado que calificar una conducta de «biocultural» apenas abre la pregunta. Si una técnica cambia una presión selectiva, interesa saber sobre qué rasgo actúa esa presión, mediante qué diferencia de supervivencia o reproducción y durante cuántas generaciones. Si una práctica se conserva gracias a una infraestructura, corresponde establecer quién la mantiene y cómo puede deteriorarse. Solo cuando estas relaciones se formulan como hipótesis susceptibles de ser refutadas adquiere contenido el vocabulario de la coevolución.
Heredar componentes de un sistema
La herencia genética transmite secuencias mediante reproducción. En una población, las frecuencias de variantes pueden cambiar por selección, migración o deriva, además de la aparición de nuevas mutaciones. El efecto de una diferencia genética depende del resto del organismo y de las condiciones en que vive, de ahí que ninguna tenga una ventaja universal. Cuando una práctica cultural crea una exposición antes infrecuente, aparece una vía por la que una historia de aprendizaje modifica la evolución biológica.
La transmisión cultural sigue otras rutas. Un niño aprende de sus padres, pero también de compañeros y de personas con las que no tiene parentesco. Un adulto puede adoptar una técnica que sus padres nunca conocieron. Parte de las instrucciones queda depositada en objetos. Una herramienta delimita los movimientos posibles, un texto hace recuperable un procedimiento y una norma cambia el costo de desviarse de una práctica. Por ello la distribución de una variante cultural puede cambiar dentro de una misma generación biológica, de modo que el número de descendientes de sus portadores deja de ser la única medida pertinente de su propagación.
La herencia ecológica designa la persistencia de modificaciones ambientales que afectan a generaciones posteriores. Un suelo alterado por el cultivo puede conservar sus propiedades cuando ya han desaparecido quienes comenzaron a cultivarlo. Una red de riego sostiene ciertas actividades y exige mantenimiento. En estos casos se transmite una condición de desarrollo o de selección aunque nadie copie deliberadamente una instrucción. Laland et al. (2000) formularon esta distinción para representar las rutas causales que conectan la construcción de nicho con el cambio evolutivo.
Cada ruta conserva algo distinto. Una semilla puede transmitir un genotipo, una demostración de siembra transmite información práctica y un terreno irrigado transmite oportunidades y restricciones materiales. Estos legados pueden viajar juntos o separarse. Una familia migrante lleva conocimientos sin llevar el suelo donde los adquirió. A la inversa, una población puede ocupar la infraestructura construida por otra y reconstruir su uso mediante ensayo. La persistencia del resultado colectivo depende entonces de la compatibilidad entre lo transmitido y el contexto receptor.
Tampoco toda continuidad es una herencia del mismo tipo. La semejanza entre padres e hijos puede originarse en genes compartidos, en una exposición común o en la enseñanza, vías que se correlacionan cuando las familias eligen ambientes de acuerdo con sus preferencias. En esas condiciones ninguna comparación familiar simple consigue repartir la semejanza observada en porcentajes causales independientes. Para el análisis de sistemas, la dificultad sugiere representar primero las rutas de transmisión y solo después asignar nombres a los componentes de una varianza.
Pensemos en una población que utiliza hornos comunales. Fabricar el horno exige conocimientos y su operación depende de combustible y cooperación. La alimentación que produce modifica, a su vez, las exposiciones fisiológicas. Aunque la población siga usando hornos durante siglos, un cambio genético ligado a esa tradición requeriría además evidencia de variación heredable asociada a diferencias reproductivas. La permanencia de una tradición puede estudiarse por sí misma, mientras la hipótesis de coevolución genética exige otra escala temporal y otro conjunto de observaciones.
De una asociación a un acoplamiento causal
Dos rasgos pueden coincidir porque uno cambia las condiciones del otro, porque ambos llegaron con una misma migración o porque responden a un ambiente común. Si en una región abundan a la vez una variante genética y una técnica agrícola particular, introducidas ambas por el mismo grupo, su asociación actual podría persistir sin que la técnica seleccione la variante. La genealogía de las poblaciones crea dependencia entre observaciones que en un mapa parecerían independientes.
Una hipótesis de coevolución debe especificar alguna forma de influencia recíproca a través del tiempo, aunque la reciprocidad puede ser indirecta. Una práctica puede mejorar la supervivencia de ciertos portadores, aumentar el tamaño de la población que la utiliza y, por esa vía, ampliar las oportunidades de aprendizaje para otras personas. Nada obliga a suponer que cada portador decide adoptarla debido a su genotipo. Como las versiones directa e indirecta producen predicciones distintas, conviene que un modelo las mantenga separadas.
El modelo de Itan et al. (2009) sobre persistencia de lactasa ilustra esta distinción. Representaba grupos culturales con diferentes prácticas de subsistencia entre los que había intercambio genético y difusión cultural. La selección favorable al alelo de persistencia actuaba dentro del grupo que practicaba la producción lechera, cuyo aumento demográfico podía a su vez favorecer la propagación de la práctica. La probabilidad individual de convertirse en productor de leche no dependía explícitamente de ser portador del alelo. El mecanismo recíproco estaba mediado, en parte, por la dinámica de los grupos.
Esta precisión evita adjudicar al modelo una conclusión que no evaluó. La simulación mostró las consecuencias de un conjunto de reglas y sirvió para compararlas con datos, sin observar directamente la totalidad del circuito histórico. Sus parámetros estimados dependen de supuestos sobre crecimiento, difusión y selección. Una flecha sin mecanismo definido puede esconder varios procesos incompatibles, por lo que al formular una nueva explicación es útil escribir cada flecha con un verbo (consumir, producir, aprender, sobrevivir, migrar).
También debe especificarse la escala. El aprendizaje modifica la conducta de una persona durante su vida y la selección modifica una distribución genética a través de diferencias reproductivas. La construcción ambiental, por su parte, puede ocurrir rápidamente y persistir durante generaciones. Si esos cambios se representaran con una única variable llamada «adaptación», ni siquiera datos abundantes bastarían para distinguirlos. Un sistema acoplado puede contener respuestas rápidas y efectos evolutivos lentos sin que las primeras sean versiones abreviadas de los segundos.
Un modelo mínimo con memoria ambiental
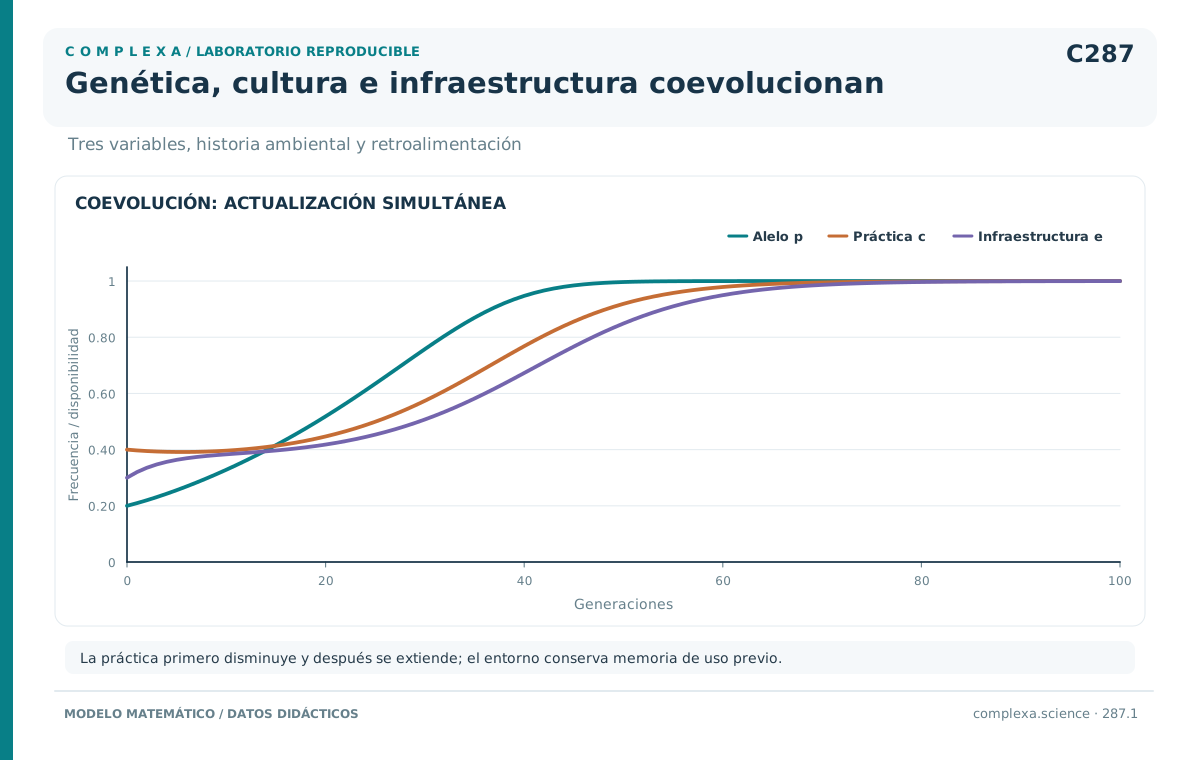
Construyamos un ejemplo didáctico, sin pretensión de representar una población histórica. Sean la frecuencia de un alelo, la proporción de usuarios de una práctica y la disponibilidad de una infraestructura ambiental que facilita esa práctica, todas ellas con valores entre cero y uno. Cada paso corresponde a una generación, dentro de la cual el aprendizaje se resume en un cambio neto de frecuencia cultural.
Para que la regla genética pueda leerse directamente supondremos organismos haploides. Los portadores del alelo tienen un éxito reproductivo relativo , con no negativo, frente al éxito relativo uno de los demás. La ventaja exige que existan a la vez la práctica y la infraestructura. Después de selección, la frecuencia es
El denominador es el éxito reproductivo promedio y mantiene la suma de frecuencias igual a uno. Si desaparece la exposición cultural o la ambiental, ambas variantes tienen en este modelo el mismo éxito. Como la fórmula no incluye mutación ni migración, la selección no puede producir un alelo ausente al comienzo, propiedad que señala qué procesos quedaron fuera y que debe tenerse presente antes de interpretar una trayectoria calculada.
Para la práctica cultural utilizaremos
El término entre paréntesis es una diferencia de atractivo neto, en la que mide cuánto favorece la adopción una mayor frecuencia del alelo, expresa la facilidad que da la infraestructura y representa los costos. El parámetro controla la rapidez del cambio. El factor introduce los encuentros entre usuarios y no usuarios, una simplificación de la transmisión social que no supone que las personas conozcan las frecuencias genéticas.
Para conservar frecuencias admisibles, esta ecuación exige controlar sus parámetros. En la región considerada basta que , condición que el ejemplo numérico siguiente satisface con margen. Con un paso de tiempo o coeficientes mayores habría que revisar la discretización o adoptar otra función de transición. Recortar automáticamente a cero cualquier resultado negativo ocultaría, en cambio, un problema del modelo.
La infraestructura conserva parte de su estado y se renueva con el uso según la regla
Se trata de una media ponderada. Cuando es pequeño la infraestructura cambia lentamente y guarda memoria de prácticas anteriores. Con , en cambio, se ajusta por completo al uso de la generación precedente. Una interpretación posible es la disponibilidad relativa de instalaciones mantenidas por los usuarios. Para describir el agotamiento de un recurso habría que cambiar el signo y la forma de la relación.
Tomemos , , , , y , con valores iniciales , y . La ventaja de los portadores es y el éxito promedio es 1,012, de modo que es aproximadamente 0,20949. La frecuencia genética aumenta aunque la práctica cultural disminuye ligeramente. El atractivo neto inicial de la práctica es y con él se obtiene . La infraestructura sube a 0,32.
La evolución posterior puede comprobarse iterando las mismas reglas, siempre con los valores de la generación previa en las tres actualizaciones. Usar el valor recién calculado de una variable para actualizar las demás introduciría otra regla dinámica. La tabla recoge los resultados redondeados.
| Generación | Frecuencia del alelo | Usuarios de la práctica | Infraestructura |
|---|---|---|---|
| 0 | 0,2000 | 0,4000 | 0,3000 |
| 1 | 0,2095 | 0,3971 | 0,3200 |
| 10 | 0,3284 | 0,3963 | 0,3833 |
| 50 | 0,9965 | 0,9190 | 0,8490 |
| 100 | 1,0000 | 0,9999 | 0,9998 |
La práctica empieza retrocediendo y solo después, cuando el cambio genético y la acumulación ambiental elevan su atractivo, termina extendiéndose, sin que ningún parámetro del sistema haya cambiado entretanto. Una observación limitada a las primeras generaciones podría sugerir un declive cultural y otra tomada mucho más tarde encontraría una asociación positiva fuerte.
La convergencia hacia valores altos, en apariencia inevitable, depende de las reglas elegidas y en particular de una asimetría escrita en las ecuaciones. Como el alelo nunca tiene un costo, su frecuencia no disminuye por selección. Un costo fuera del contexto cultural abriría otras posibilidades. Una práctica que desgastara la infraestructura con el uso, en lugar de mantenerla, podría producir una retroalimentación negativa.
Qué se aprende al intervenir en el ejemplo
Con el sistema pueden separarse preguntas que un gráfico de correlaciones mezcla. El efecto cultural sobre la selección puede examinarse fijando en distintos valores con las demás condiciones constantes. Para estudiar la retroalimentación genética sobre la difusión cultural puede ponerse , operación que conserva el efecto de la práctica sobre la selección y suprime la ruta de retorno desde la frecuencia genética hacia el atractivo de la práctica.
Una perturbación que destruya la infraestructura equivale a llevar instantáneamente a cero, con lo que la ventaja selectiva desaparece durante esa generación. Si quedan usuarios, sin embargo, la infraestructura empieza a recuperarse en la actualización siguiente. La duración del efecto depende de y de la frecuencia cultural. Por eso dos sociedades con la misma práctica actual pueden responder de manera distinta si una conserva más infraestructura acumulada.
Otro experimento consiste en introducir unos pocos usuarios cuando . Sin esa introducción el factor de encuentros mantiene la ausencia cultural indefinidamente, porque la innovación no forma parte de la regla y debe agregarse de forma explícita. Una vez incorporada, la pregunta es en qué condiciones se extiende una práctica rara. Cerca de cero, su crecimiento depende aproximadamente del signo de , de modo que la práctica puede invadir gracias al ambiente heredado aunque la frecuencia genética sea baja.
Estas intervenciones son operaciones sobre una simulación, cuya correspondencia con intervenciones reales requiere trabajo adicional. Ningún investigador dispone de una acción que fije una frecuencia genética como se fija en una ecuación. En cambio, modificar el acceso a una infraestructura puede tener un análogo institucional. Distinguir ambas situaciones ayuda a usar el modelo como instrumento explicativo sin tratar cada parámetro como una supuesta palanca de política pública.
El modelo admite además varias historias que llegan a un estado parecido. Una práctica puede extenderse porque disminuye su costo, porque aumenta la disponibilidad ambiental o porque cambia el término asociado con , mecanismos que pueden ser difíciles de distinguir cuando solo se observa . Como ninguna prolongación de la misma serie cultural suple la información que da medir el componente ambiental, la elección de las variables observables forma parte de la pregunta científica.
La distribución conjunta también conserva historia
Las frecuencias marginales pueden ocultar una parte decisiva del sistema. En el modelo anterior el efecto de la práctica sobre los portadores se resume en una exposición promedio que deja fuera cualquier asociación persistente entre portación genética y pertenencia cultural. Para ver qué se pierde, dividamos una población en cuatro grupos de frecuencias (portadores que usan la práctica), (portadores que no la usan), (no portadores que la usan) y (no portadores que no la usan).
Consideremos dos poblaciones ficticias en las que la frecuencia del alelo es 0,2 y la frecuencia cultural es 0,4. En la primera, que concentra la práctica entre los portadores, las cuatro frecuencias conjuntas son 0,18, 0,02, 0,22 y 0,58. En la segunda, con la asociación opuesta, son 0,02, 0,18, 0,38 y 0,42. Un registro que conservara únicamente las dos frecuencias marginales describiría ambas poblaciones como idénticas.
Supongamos que solo los portadores que usan la práctica reciben una ventaja reproductiva relativa de 0,2 y que todos los demás grupos quedan en el valor de referencia uno. Para aislar el problema, la disponibilidad ambiental se fija en uno. La frecuencia genética después de selección es entonces
Su valor es aproximadamente 0,2278 en la primera población y 0,2032 en la segunda. Con las mismas condiciones marginales iniciales, la respuesta selectiva difiere. El cálculo suma las contribuciones de los dos grupos portadores y normaliza por el éxito promedio, sin que intervenga preferencia consciente alguna.
La asociación puede resumirse mediante . Para las poblaciones anteriores , de modo que vale 0,10 y −0,06, respectivamente. Un valor positivo indica concentración de la práctica entre los portadores respecto de una distribución independiente. El símbolo es útil siempre que se recuerde que relaciona variantes genéticas y culturales, una asociación que no es sin más el desequilibrio de ligamiento entre dos loci genéticos.
El paso siguiente depende de cómo se aprenda. Si todas las personas eligen modelos culturales al azar en la población, parte de la asociación puede diluirse. Si se aprende sobre todo dentro de la familia o de grupos con poca mezcla, puede conservarse. La migración selectiva y el apareamiento también pueden modificarla. Una descripción que siga solo y tiene que justificar por qué esa información adicional es prescindible en la escala de interés, ya que de otro modo su dinámica marginal arrastra la memoria de variables omitidas.
Este problema afecta a la interpretación de una correlación histórica. Es posible que la práctica y la variante se concentraran juntas por migración y que la selección actuara después sobre esa distribución. Preguntar si la asociación se debe «a migración o a selección» como alternativas excluyentes descarta una secuencia posible, aquella en que un proceso crea la asociación sobre la que actúa el otro. Para distinguir esa secuencia hacen falta, además de frecuencias alélicas, la historia de los movimientos y medidas conjuntas de exposición.
La persistencia ambiental añade otra memoria cuantificable. Si el uso se mantiene constante en un valor , la ecuación ambiental satisface y la infraestructura se aproxima gradualmente al nivel sostenido por los usuarios. Con la discrepancia inicial se reduce a la mitad en aproximadamente 3,11 generaciones, según el cociente . Un estudio demasiado breve podría tomar esa discrepancia transitoria por una propiedad permanente del grupo.
Las dos memorias tienen consecuencias distintas. La distribución conjunta conserva quién está expuesto y el estado ambiental conserva condiciones creadas previamente, dos informaciones que no se sustituyen entre sí. Al elegir variables para un estudio, estas diferencias ayudan a anticipar qué historias podrían quedar invisibles aun cuando las frecuencias actuales estén estimadas con precisión.
La producción lechera como problema histórico
La persistencia de lactasa es un caso poco frecuente en el que pueden combinarse un fenotipo fisiológico, variantes genéticas identificables y rastros arqueológicos de una práctica, fuentes cuya articulación revisaron Gerbault et al. (2011). Las variantes asociadas al fenotipo no son las mismas en todas las poblaciones. El trabajo de Tishkoff et al. (2007), publicado inicialmente en línea en 2006, documentó asociaciones y evidencia funcional para variantes africanas diferentes de la variante europea más estudiada. La convergencia del fenotipo permite examinar respuestas evolutivas bajo historias poblacionales distintas.
La arqueología da acceso a una secuencia que el genoma contemporáneo no puede reconstruir por sí solo. Los residuos de grasas en la cerámica informan sobre el procesamiento de productos animales, mientras el ADN antiguo sirve para estimar la presencia de variantes en individuos de diferentes períodos. Cada registro tiene una selección propia: sobreviven ciertos materiales, se muestrean determinados lugares y la conservación del ADN varía. Por ello la falta de detección de un alelo en una pequeña muestra antigua debe interpretarse atendiendo a su tamaño y composición.
El análisis de Itan et al. (2009) combinó datos modernos de frecuencia alélica y estimaciones de la llegada de la agricultura con un modelo espacial e infirió una región y un período plausibles para el aumento del alelo bajo selección. El inicio modelado se refería al crecimiento apreciable de la variante, no a la fecha exacta de su primera mutación. Antes de encontrar condiciones que favorezcan su expansión, una variante puede existir a baja frecuencia durante un tiempo.
El estudio de Evershed et al. (2022) examinó una explicación más específica de la intensidad de selección. La variación reconstruida en el uso de leche no mejoraba por sí sola el ajuste de la trayectoria genética frente a selección constante. Ajustaban mejor los modelos que incorporaban indicadores de fluctuaciones poblacionales o de concentración de asentamientos. Los autores propusieron que las crisis alimentarias y la exposición a patógenos podrían aumentar el costo de consumir leche en personas sin persistencia de lactasa. Como esos indicadores son aproximaciones históricas, los resultados respaldan hipótesis sobre las condiciones de selección sin identificar directamente cada episodio causal.
La interpretación histórica admite otra posibilidad, que las técnicas de procesamiento modifiquen la exposición que genera selección. Una cultura que transforma un alimento puede alterar las consecuencias de consumirlo y, con ello, la ventaja relativa de una variante biológica. Por eso la práctica cultural, que es heterogénea, debe descomponerse en producción, procesamiento y consumo, cuyas combinaciones diferentes pueden quedar bajo un mismo rótulo arqueológico general.
Plasticidad, aprendizaje y cambio evolutivo
Una población puede cambiar rápidamente su conducta frente a una nueva condición sin que cambien sus frecuencias genéticas. Un organismo plástico puede producir respuestas distintas según su desarrollo o su experiencia. A ello el aprendizaje social añade una vía por la que la experiencia de unos modifica la conducta de otros. Estas respuestas pueden cambiar las presiones selectivas futuras, aunque su existencia es compatible con que todavía no se haya producido evolución genética alguna.
La adopción de un nuevo horario de trabajo por una comunidad muestra el riesgo de usar un lenguaje evolutivo amplio como sustituto de una explicación inmediata. En pocos años pueden variar las exposiciones a la luz y las oportunidades de sueño. Los individuos pueden ajustar sus hábitos o sufrir dificultades de adaptación. Para estudiar esos resultados bastan, en principio, variables de conducta, organización y fisiología. Una afirmación sobre selección genética exigiría datos sobre reproducción diferencial y transmisión a lo largo de generaciones.
El mismo cuidado se aplica al término «heredable». Un rasgo puede mostrar variación genética dentro de un entorno y cambiar intensamente cuando ese entorno se transforma. La heredabilidad estimada en una población concreta no especifica cuánto cambiaría el promedio del rasgo bajo una intervención cultural ni reparte la trayectoria de una persona entre causas separables. Para discutir coevolución es más informativo describir qué relaciones se mantienen al cambiar de contexto y cuáles dependen de exposiciones particulares.
En el ejemplo matemático la ventaja alélica depende del producto , así que basta que uno de sus factores sea pequeño para que el efecto de la variante también lo sea. Una comparación realizada en dos ambientes puede, por tanto, encontrar efectos distintos sin contradicción alguna. El modelo obliga a registrar la exposición pertinente, con la cual puede formularse una interacción precisa. Afirmar simplemente que «los genes interactúan con el ambiente» deja sin determinar la forma funcional que produce la diferencia.
Otra fuente de confusión es que las escalas temporales pueden solaparse. El ambiente construido cambia a veces con lentitud, ciertas prácticas se difunden deprisa y otras tradiciones se mantienen durante muchas generaciones. La rapidez del aprendizaje dice poco sobre lo adecuada que sea la respuesta cultural. Si la transmisión favorece prácticas prestigiosas, o si los costos recaen en personas diferentes de quienes deciden, puede conservarse una práctica perjudicial para algunos resultados. Por eso la selección cultural necesita una medida explícita de lo que se propaga, separada de cualquier valoración de sus consecuencias.
Investigar el circuito sin rellenar sus huecos
Un diseño útil empieza por dividir la explicación en relaciones observables. El efecto de una práctica sobre una exposición podría estudiarse comparando personas o lugares con distintos niveles de adopción y documentando los cambios ambientales. Para el efecto de esa exposición sobre un rasgo se necesita un mecanismo fisiológico o ecológico y medidas apropiadas. La hipótesis de selección añade el vínculo con la reproducción diferencial. Cada tramo puede exigir su propio método y una calidad de evidencia diferente.
La historia de la población tiene que entrar en el análisis, porque la migración puede cambiar a la vez genes, conocimientos y recursos. Atribuir todo cambio de frecuencia a selección local confundiría el reemplazo o la mezcla poblacional con adaptación. En una simulación, la comparación debe incluir escenarios con flujo migratorio y con distintas estructuras de apareamiento. Con datos antiguos, ampliar la distribución geográfica y temporal del muestreo puede distinguir hipótesis que una única serie regional deja empatadas.
La cronología puede descartar algunas explicaciones, aunque rara vez deja en pie una sola. Que una práctica preceda al aumento de una variante es compatible con una selección generada por esa práctica y puede coexistir también con otros cambios contemporáneos. Más útiles son las predicciones que difieren entre mecanismos. Una ventaja que dependa de crisis alimentarias debería producir patrones distintos de los de una ventaja constante ligada al consumo habitual. Para detectar esa diferencia, los indicadores elegidos deben medir esas condiciones con suficiente independencia del resultado que se intenta explicar.
En los modelos computacionales, una comprobación sencilla consiste en generar datos artificiales bajo mecanismos conocidos y evaluar si el procedimiento recupera el mecanismo correcto. Si varias historias simuladas producen inferencias indistinguibles, difícilmente los datos reales resolverán la ambigüedad. El resultado orienta la búsqueda de observaciones nuevas, quizá medidas ambientales, una mejor cronología o información demográfica, ya que más precisión en una variable ya observada no siempre compensa la ausencia de otra.
La aplicación a la salud mental exige particular cuidado con las distancias entre niveles. Las prácticas de cuidado pueden modificar el entorno de desarrollo y las oportunidades de aprendizaje. También las instituciones pueden transmitir formas de identificar el malestar y de responder a él. Atribuir a selección genética las diferencias clínicas entre comunidades exigiría, más allá del estudio de esas dinámicas, una cadena de evidencia específica que una analogía con la producción lechera no contiene.
Un proyecto concreto podría seguir, con medidas repetidas y fuentes independientes, la transmisión de una práctica de crianza junto con los cambios en recursos familiares y en resultados de desarrollo. Su objetivo inmediato sería estimar procesos de aprendizaje y de modificación ambiental. Incorporar información genética plantearía preguntas adicionales sobre asociación, estructura poblacional y exposición, pero solo un diseño capaz de contestar una pregunta de coevolución convertiría el estudio en una demostración de ella.
El modelo predice, por ejemplo, que dos poblaciones con las mismas frecuencias genética y cultural responderán de forma distinta a una interrupción si conservan infraestructuras diferentes. Una vez restaurado el acceso, la trayectoria de recuperación dependerá de la memoria ambiental y de quién continúe usando la práctica. Seguir esas diferencias permite contrastar una explicación basada en la infraestructura heredada con otra que atribuya la continuidad exclusivamente a la transmisión entre personas. Un registro de la práctica limitado al comienzo y al final dejaría ambas historias casi indistinguibles.
Referencias
Evershed, R. P., Davey Smith, G., Roffet-Salque, M., et al. (2022). Dairying, diseases and the evolution of lactase persistence in Europe. Nature, 608, 336–345. https://doi.org/10.1038/s41586-022-05010-7
Evershed, R. P., Davey Smith, G., Roffet-Salque, M., et al. (2022). Author Correction: Dairying, diseases and the evolution of lactase persistence in Europe. Nature, 609, E9. https://doi.org/10.1038/s41586-022-05227-6
Gerbault, P., Liebert, A., Itan, Y., et al. (2011). Evolution of lactase persistence: an example of human niche construction. Philosophical Transactions of the Royal Society B, 366, 863–877. https://doi.org/10.1098/rstb.2010.0268
Itan, Y., Powell, A., Beaumont, M. A., Burger, J., & Thomas, M. G. (2009). The origins of lactase persistence in Europe. PLoS Computational Biology, 5(8), e1000491. https://doi.org/10.1371/journal.pcbi.1000491
Laland, K. N., Odling-Smee, J., & Feldman, M. W. (2000). Niche construction, biological evolution, and cultural change. Behavioral and Brain Sciences, 23(1), 131–146. https://doi.org/10.1017/S0140525X00002417
Laland, K. N., Odling-Smee, J., & Myles, S. (2010). How culture shaped the human genome: bringing genetics and the human sciences together. Nature Reviews Genetics, 11, 137–148. https://doi.org/10.1038/nrg2734
Tishkoff, S. A., Reed, F. A., Ranciaro, A., et al. (2007). Convergent adaptation of human lactase persistence in Africa and Europe. Nature Genetics, 39, 31–40. Publicación electrónica inicial: 10 de diciembre de 2006. https://doi.org/10.1038/ng1946