Una leguminosa puede obtener nitrógeno de bacterias que viven en nódulos de sus raíces y que, a cambio, reciben del hospedador recursos y un ambiente donde desarrollarse. La asociación reúne capacidades distintas, aunque la complementariedad deja sin resolver cómo se mantiene. Como fijar nitrógeno tiene un costo para las bacterias, una variante que redujera ese gasto podría multiplicarse mientras otras siguen sosteniendo el aporte al hospedador. La planta, por su parte, puede beneficiarse de la asociación y tener a la vez alternativas que cambian lo que le reporta invertir en ella.
El mismo problema aparece en muchas formas de vida asociada, porque producir un recurso y recibirlo son procesos separados por una vía de transferencia, por una demora y a menudo por otros consumidores. La división del trabajo puede aumentar el rendimiento conjunto a la vez que crea dependencias que vuelven vulnerable a cada participante. Analizarla requiere seguir cantidades concretas (qué se produce, quién lo recibe y cómo afecta ese intercambio a la reproducción de los linajes implicados).
Simbiosis y beneficio son preguntas diferentes
Se empleará simbiosis para designar una asociación estrecha y persistente entre organismos de especies distintas, sea cual sea su efecto sobre cada participante. Mutualismo designa las interacciones que aumentan la aptitud de ambos socios en unas condiciones especificadas. Una misma asociación puede tener efectos distintos según la disponibilidad de recursos, el estado de los organismos o el horizonte temporal considerado.
Afirmar que un socio obtiene un beneficio supone una comparación. El rendimiento de una planta asociada con un hongo puede contrastarse con el de plantas equivalentes sin el hongo, dentro del mismo régimen de nutrientes, o puede compararse una cepa del hongo con otra. Las dos comparaciones responden a preguntas distintas, ya que un socio puede ser beneficioso frente a la ausencia completa de simbiosis y menos favorable que otra alternativa disponible.
El resultado depende además de la variable con que se mida la aptitud. Medir el tamaño al final de un cultivo no siempre informa sobre la reproducción, pues un hospedador puede crecer más y dejar menos descendencia si el costo de mantener al simbionte recae en otra fase del ciclo. Un microorganismo puede aumentar su concentración durante unas horas y perder después capacidad de dispersión. Como la ventana de observación tiene que abarcar los componentes de aptitud en que se apoya la interpretación, cuando solo se dispone de un indicador fisiológico el informe se limita a ese indicador y la conclusión evolutiva queda pendiente de pruebas adicionales.
La interacción tampoco tiene que ser simétrica. Si un socio depende por completo de la asociación y el otro dispone de varias fuentes del mismo recurso, el costo de perder a la contraparte difiere entre ambos. Eso influye en la selección sobre los mecanismos de búsqueda, retención o reemplazo. Una asociación estable puede conservar además un reparto desigual de beneficios, puesto que la estabilidad evolutiva describe la dinámica de variantes y poblaciones y es ajena a cualquier criterio de justicia.
Nguyen y van Baalen (2020) estudian con un modelo la transición desde la vida libre hacia la dependencia obligada y encuentran que la capacidad de vivir fuera de la asociación puede persistir en amplias regiones del espacio de parámetros. Que esa capacidad se pierda depende, entre otras condiciones del modelo, de los beneficios de asociarse y de los costos de encontrar hospedadores. La persistencia de una fase libre necesita por tanto una explicación, igual que la dependencia extrema.
Cuándo la especialización aumenta el rendimiento
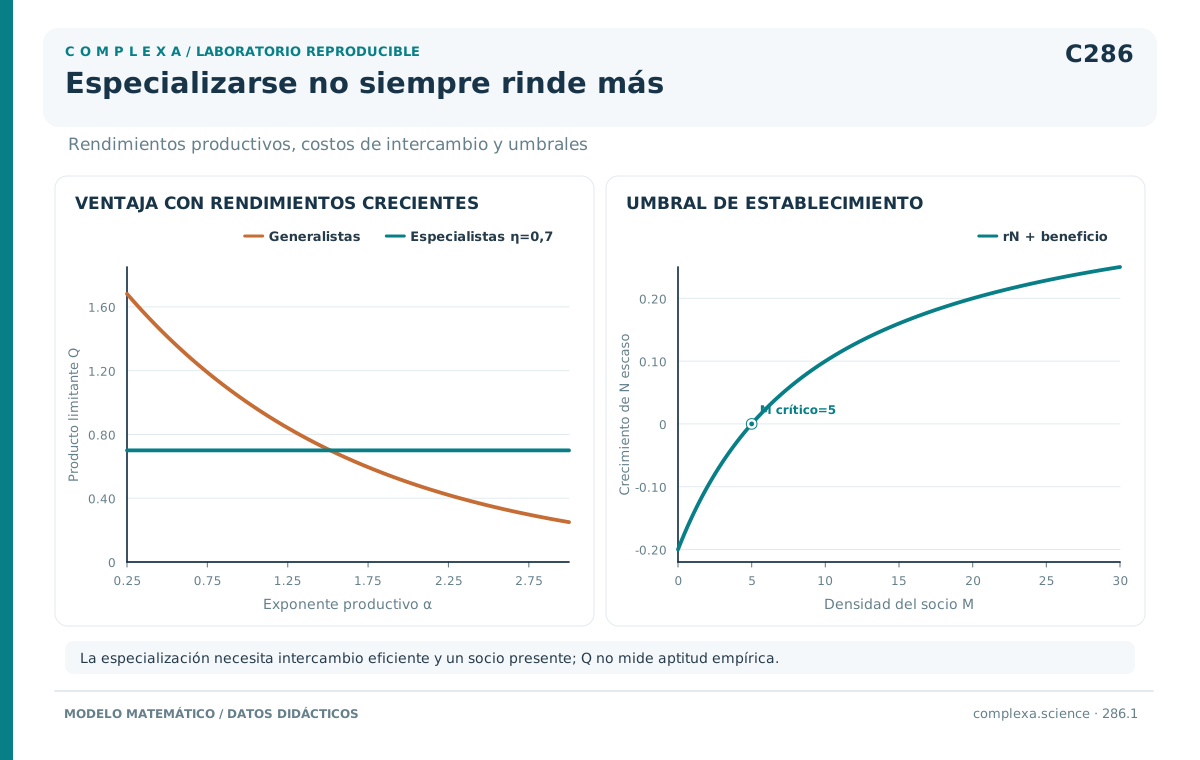
Que la división del trabajo (el reparto de tareas entre componentes) sea ventajosa depende de la relación entre inversión y producción, de las incompatibilidades entre tareas y del costo de compartir los resultados. Cuando producir dos metabolitos requiere procesos que interfieren entre sí, separar las tareas puede reducir esa interferencia. Si ambas rutas comparten equipamiento sin inconvenientes, repartirlas entre socios puede añadir costos sin una mejora equivalente.
Consideremos un modelo didáctico con dos células y dos productos esenciales, A y B, en el que cada célula dispone de una unidad de recurso para invertir. Si una célula dedica una fracción a A y a B, sus producciones son y , con . Como rendimiento conjunto se usará la cantidad del producto limitante, , una simplificación pensada para estudiar la asignación y que, para describir el crecimiento de una especie concreta, requeriría supuestos adicionales.
Cuando ambas células son generalistas y asignan la mitad del recurso a cada tarea, el total de cada producto es . Si una se especializa por completo en A y la otra en B, se obtiene una unidad de cada producto. Con , los generalistas alcanzan y los especialistas , porque la producción tiene rendimientos crecientes y concentrar la inversión eleva lo producido por unidad de recurso.
En este modelo la ventaja de dividir el trabajo depende de la forma de la función productiva. Con la relación se invierte. Los generalistas producen , aproximadamente 1,414 unidades de cada metabolito, frente a la unidad que siguen obteniendo los especialistas, ya que con rendimientos decrecientes distribuir la inversión rinde más que concentrarla. Para las dos asignaciones producen lo mismo antes de incluir costos de transferencia.
Añadamos un factor , entre cero y uno, que represente la fracción utilizable del rendimiento de los especialistas una vez descontadas las pérdidas del intercambio. Definimos entonces , con el rendimiento generalista anterior como referencia. Con la especialización supera a los generalistas cuando . Si , los especialistas rinden 0,7 frente a 0,5. Con , en cambio, la ventaja productiva inicial se pierde y los generalistas pasan a rendir más. Es un factor agregado, que un modelo fisiológico tendría que descomponer en difusión, captación y consumo.
Uchiumi y Sasaki (2020) analizan un modelo evolutivo más detallado, en el que las especies reparten recursos entre metabolitos esenciales y la obtención de socios es incierta. Con determinadas funciones de producción aparecen estados alternativos que van desde estrategias generalistas hasta la especialización completa. Algunos estados especializados pueden persistir cuando empeoran las oportunidades de encontrar socios. Es una predicción de multistabilidad e histéresis derivada de los supuestos del modelo. Examinarla en un sistema real exigiría medir las curvas de producción y el proceso de adquisición de socios.
El modelo elemental plantea además una cuestión distinta de la producción conjunta, la de si una variante especializada puede invadir una población de generalistas. Un especialista que llega solo podría carecer del metabolito complementario y desaparecer. Su establecimiento depende de la frecuencia de socios compatibles y de cómo se agrupan, de modo que una configuración que funciona bien una vez formada puede ser difícil de alcanzar desde otro estado inicial.
La dependencia introduce umbrales de establecimiento
La cantidad de recurso que recibe cada organismo depende de la abundancia de sus socios. Para representar esa dependencia consideremos dos poblaciones de densidades y , la primera de las cuales sigue la ecuación didáctica
En ella, es la tasa neta de crecimiento sin el socio en el ambiente considerado y es el beneficio máximo que puede obtenerse de la presencia de M. El parámetro fija la densidad de M que produce la mitad de ese beneficio y mide una limitación que depende de la propia densidad. Una ecuación equivalente, con sus propios parámetros y un beneficio saturante que depende de N, describe la dinámica de M.
La saturación evita atribuir un beneficio ilimitado a cada aumento de socios, en coherencia con la capacidad finita de una célula para captar recursos y con el número limitado de sitios de interacción de que puede disponer el hospedador. El término de limitación propia mantiene acotado el crecimiento dentro de esta representación. Las ecuaciones omiten, aun así, las reservas de nutrientes, la heterogeneidad espacial y los cambios evolutivos. Sirven para estudiar el establecimiento demográfico de socios con rasgos fijos.
Si , N disminuye en ausencia del socio y, cuando todavía es poco abundante, solo crece si el beneficio supera esa pérdida. Cuando , la densidad umbral de M es
Con por día, por día y unidades de densidad, el umbral es cinco. En M=5 la tasa per cápita de una población N muy pequeña es cero y, por debajo de ese valor, N sigue disminuyendo pese a recibir algún beneficio. Cuando N alcanza una densidad apreciable, la limitación eleva el beneficio que necesita para crecer.
Como cada socio tiene su propia ecuación, superar el umbral de N deja abierta la persistencia de M. Ambos pueden disminuir juntos si parten por debajo de las densidades necesarias. Si una perturbación elimina a uno, el otro puede perder su fuente de crecimiento. El desenlace depende de la posición inicial respecto de las regiones de atracción del sistema, por lo que un ensayo realizado siempre con inóculos abundantes puede ocultar problemas de establecimiento a bajas densidades.
De ahí que, al evaluar un consorcio microbiano, la densidad total y la proporción entre socios se varíen y se registren por separado. Dos cultivos con la misma proporción pueden tener destinos distintos si uno de ellos está por debajo de los umbrales de intercambio, igual que dos cultivos con la misma biomasa total pueden diferir si en uno escasea el socio que produce el recurso limitante.
La estructura espacial agrega otro nivel. La proximidad y la retención local pueden aumentar el acceso al producto de un socio compatible, mientras que una mezcla intensa lo reparte entre más consumidores, aunque la transferencia a distancia también puede facilitar encuentros entre socios raros. El efecto de mezclar un cultivo depende así de la física del recurso y de quién puede captarlo. Lo concluido con un metabolito de difusión rápida tiene que comprobarse de nuevo para sustancias retenidas en una matriz o intercambiadas por contacto.
Sanciones y consecuencias reproductivas de un bajo aporte
Una sanción del hospedador es una respuesta que reduce el rendimiento de los simbiontes cuyo aporte al intercambio es menor. Establecer que el proceso ocurre exige manipular ese aporte y observar sus consecuencias con las demás diferencias controladas. La simple comparación de dos cepas puede ser ambigua, porque quizá difieran a la vez en reconocimiento, crecimiento basal y capacidad de producir el recurso.
Kiers et al. (2003) redujeron experimentalmente la fijación de nitrógeno en asociaciones de soja con rizobios mediante una atmósfera que conservaba el oxígeno y sustituía casi todo el nitrógeno por argón. Con ello alteraron la función de bacterias normalmente fijadoras y evitaron que la comparación se convirtiera en un contraste entre genotipos distintos. Los nódulos con menor fijación presentaron menor rendimiento bacteriano, junto con cambios en la disponibilidad de oxígeno compatibles con una restricción del aporte del hospedador.
El resultado vincula un servicio que recibe la planta con consecuencias para la reproducción de su socio. La palabra sanción nombra esa relación funcional sin suponer que la planta atribuya intenciones a su socio ni que juzgue moralmente su conducta. El mecanismo puede ser una regulación fisiológica local que asigna recursos según señales que dependen del funcionamiento del nódulo. Su explicación requiere identificar esas señales y la secuencia causal que lleva del aporte reducido al descenso del rendimiento bacteriano.
Las consecuencias de la respuesta dependen del nivel en que actúa. Si un nódulo contiene una mezcla de variantes, restringir recursos a todo el nódulo puede afectar también a las bacterias que contribuían a la fijación. Una sanción eficaz a esa escala recae sobre el nódulo en su conjunto, sin distinguir entre las células que contiene. La estructura de la asociación condiciona así qué variantes sufren las consecuencias y, con ello, cómo cambia la selección en su interior.
Otra distinción necesaria separa la respuesta regulada del deterioro inevitable de un hospedador que recibe menos recursos. Si la planta entera crece menos por falta de nitrógeno, todos sus simbiontes podrían recibir menos carbono y quienes redujeron su aporte sufrirían una realimentación negativa sin que exista una asignación específica en su contra. Los experimentos que manipulan una parte del sistema y comparan nódulos dentro de un mismo hospedador ayudan a distinguir los efectos locales de los globales.
Una sanción puede ser costosa. Mantener mecanismos de detección, sustituir socios o restringir un nódulo resta recursos a otras funciones, por lo que la eficacia se evalúa según los beneficios que esos mecanismos producen en el ciclo completo. Un sistema puede tolerar aportes imperfectos cuando corregirlos cuesta más que convivir con ellos, de modo que una asociación duradera puede albergar intercambios subóptimos y variantes de bajo aporte que persisten.
Asignación preferencial cuando existen varios socios
En redes de asociación con varias contrapartes, un organismo puede repartir sus recursos de manera desigual según lo que recibe. Kiers et al. (2011) manipularon el intercambio entre plantas y hongos micorrícicos y observaron una asignación preferencial en ambos sentidos. Las plantas entregaban más carbohidratos a los socios fúngicos de mejor aporte y los hongos transferían más nutrientes a las raíces que les suministraban más carbohidratos. El estudio apunta a un control bidireccional del intercambio en las condiciones evaluadas.
La interpretación depende de las alternativas disponibles. Una planta que solo tiene un socio compatible puede perjudicar, al reducirle recursos, el suministro que todavía recibe. Con varios socios, una modificación de la asignación puede favorecer a quienes mantienen un mejor intercambio. El rendimiento de una variante pasa entonces a depender de las demás opciones presentes, con lo cual el entorno social de la interacción cambia el valor de una misma capacidad fisiológica.
Un esquema sencillo ayuda a precisar qué habría que medir. Una planta dispone de una cantidad C de carbono para repartir entre dos socios, cada uno de los cuales devuelve un recurso limitante según una función , donde es el carbono que recibe y . Si la planta pudiera ajustar la asignación de forma continua y sin costo, una solución interior que maximice el retorno total cumpliría , con los rendimientos marginales igualados. Esa igualdad es una predicción del modelo de optimización, cuya correspondencia con la fisiología vegetal tendría que establecerse empíricamente.
La respuesta real puede estar sujeta a demoras, señales ruidosas o restricciones anatómicas. Como el socio puede modificar a su vez su asignación cuando cambian los recursos que recibe, el problema se convierte en una interacción dinámica. Medir solo el flujo final deja abiertas varias explicaciones (diferencias de demanda, de capacidad de transporte o una respuesta preferencial). Algunas de ellas pueden discriminarse manipulando el recurso que entrega una contraparte y siguiendo la redistribución en el tiempo.
Una única respuesta favorable dice poco sobre la estabilidad de un intercambio, que se examina introduciendo variantes de bajo aporte, cambiando la disponibilidad de recursos externos y observando si la asignación mantiene la asociación. Una regulación eficaz en un ambiente pobre en nutrientes puede tener consecuencias distintas cuando el hospedador obtiene por otra vía el recurso que antes limitaba su crecimiento.
Transmitir socios y conservar asociaciones
En la transmisión vertical los simbiontes pasan del hospedador a su descendencia, con lo que parte de su éxito reproductivo puede quedar ligado al del hospedador. En la adquisición horizontal, en cambio, los socios se obtienen de un reservorio ambiental o de otros hospedadores. La oportunidad de explotar una asociación y pasar después a otra difiere entre ambos procesos, pero la transmisión es solo una parte de la estructura evolutiva.
Leeks et al. (2019) separan mediante modelos el efecto de la transmisión del que tiene el parentesco entre simbiontes que comparten hospedador y muestran que el parentesco puede explicar buena parte del efecto atribuido al modo de transmisión. Cuando un hospedador contiene variantes estrechamente emparentadas, los beneficios de una contribución pueden llegar sobre todo a copias de la misma variante. Si contiene muchos linajes distintos, la competencia interna puede favorecer estrategias que aumentan su representación aunque reduzcan el rendimiento del conjunto.
Para interpretar ese parentesco debe especificarse la escala. Se trata de la semejanza genética relevante entre los simbiontes, comparada con una población de referencia. La relación entre el hongo y la planta queda fuera de esa medida. La complementariedad entre especies y la distribución de variantes dentro de cada especie son problemas diferentes que pueden afectar, uno y otro, la persistencia de una simbiosis.
Una transmisión vertical imperfecta puede conservar una competencia intensa dentro del hospedador. Puede haber también infecciones posteriores por linajes ambientales o transmisión por más de una vía. Una asociación adquirida del ambiente, por su parte, puede mantenerse mediante selección de socios, reconocimiento o compartimentación. Cuando todas esas posibilidades se reducen a la etiqueta vertical u horizontal, el mecanismo que realmente explica la cooperación observada queda sin identificar.
Los conflictos pueden persistir incluso con herencia conjunta, porque un simbionte puede reproducirse dentro del hospedador más rápido que otros aunque su proliferación reduzca la descendencia de este. El balance dependerá del número de simbiontes transmitidos y de cómo la transmisión liga la abundancia interna con la representación futura. Un cuello de botella estrecho puede reducir la variación entre los simbiontes de una nueva asociación, pero también aumenta el muestreo aleatorio de variantes.
Un diseño comparativo informativo registra por separado la fidelidad de transmisión, el número de linajes que coexisten en cada hospedador y sus contribuciones, además del éxito del hospedador y de la salida de simbiontes hacia nuevas asociaciones. Sin esas observaciones, un aumento de la carga simbiótica que solo refleje una ventaja de proliferación interna puede tomarse por una mejora del mutualismo.
La estabilidad demográfica y la invasión evolutiva
Un equilibrio de abundancias puede resistir pequeñas perturbaciones y ser, al mismo tiempo, vulnerable a una variante nueva. El primer problema mantiene fijos los rasgos de los socios y modifica su cantidad. En el segundo cambia alguna propiedad heredable, como la inversión en un metabolito. Cada pregunta requiere su propia comparación. Que un cultivo recupere su proporción inicial después de una dilución informa sobre su estabilidad demográfica y deja abierta su respuesta ante una variante que entrega menos recursos.
Con el modelo demográfico anterior puede precisarse esta diferencia. Tomemos socios simétricos con , , y , en días y con una misma unidad de densidad. En la diagonal, donde , un equilibrio positivo satisface , ecuación que al multiplicarse por se convierte en , cuyas soluciones son aproximadamente 6,28 y 63,72 unidades de densidad para cada socio.
Sobre la diagonal, la solución pequeña es un umbral. Si ambas poblaciones parten ligeramente por debajo de ella disminuyen, mientras que si parten ligeramente por encima crecen hacia el equilibrio mayor. Como el equilibrio de extinción también es estable, un mismo conjunto de parámetros admite la persistencia o la pérdida de la asociación según las condiciones iniciales. Este cálculo corresponde a un sistema simétrico concreto y, fuera de la diagonal, el límite entre ambos destinos depende conjuntamente de las dos abundancias.
La estabilidad local se comprueba examinando cómo cambia la tasa de cada población ante pequeñas variaciones de ambas. En un equilibrio positivo del sistema simétrico, los elementos diagonales del jacobiano son y los cruzados . Sus valores propios son la suma y la diferencia de esos dos términos. En el equilibrio pequeño uno de ellos es positivo y el otro negativo. Es un punto silla. En el mayor, ambos son negativos. El análisis lineal justifica así la diferencia entre los dos equilibrios sin depender solo de una curva simulada.
Supongamos ahora que el cultivo está en el equilibrio grande y que en una de las poblaciones aparece una variante que reduce su producción para la otra. Su capacidad de crecer cuando es rara depende de los recursos presentes en el ambiente que crean los residentes y del costo que deja de pagar. Si en ese ambiente su tasa de crecimiento per cápita es positiva, puede aumentar al principio aunque el equilibrio demográfico previo fuera estable. Al alcanzar una frecuencia mayor, su efecto sobre el otro socio modifica el ambiente y puede alterar la ventaja inicial. La dinámica completa tiene que incluir, entonces, la variante y el recurso que cambió.
También puede ocurrir que la variante no invada porque la producción y el acceso al beneficio estén vinculados físicamente. Las dos situaciones se distinguen midiendo su crecimiento desde baja frecuencia y siguiendo después el consorcio. La separación entre respuesta demográfica y evolución de los rasgos ayuda a interpretar los modelos de transmisión y especialización. Las conclusiones de estabilidad de Leeks et al. (2019) y de Uchiumi y Sasaki (2020) dependen de qué variantes admiten sus modelos y de cómo afectan estas al intercambio, es decir, de las perturbaciones frente a las cuales se evaluó cada equilibrio.
Pérdida de funciones y dependencia obligada
Cuando otro organismo suministra un metabolito de manera fiable, conservar la ruta propia puede dejar de reportar el mismo beneficio. En ese ambiente una pérdida genética puede reducir costos y ser favorecida por la selección, aunque también puede persistir por relajación de la selección o por deriva. El resultado observable, un genoma más pequeño y una dependencia mayor, es compatible con cualquiera de esas historias.
McCutcheon y Moran (2012) describen reducciones extremas del genoma en bacterias simbióticas, en las que la conservación de funciones útiles para el hospedador coexiste con pérdidas extensas y rasgos de deterioro genómico. Presentar cada pérdida como una mejora eficiente de la división del trabajo sería, por tanto, engañoso, puesto que la dependencia puede aumentar mientras disminuye la capacidad del linaje para responder a cambios en su ambiente. Determinar qué proceso predominó exige evidencia comparativa y poblacional, además de conocer la función de los genes retenidos.
Pande et al. (2014) construyeron cepas de Escherichia coli con necesidades de aminoácidos y liberación de metabolitos para investigar la alimentación cruzada. En las condiciones ensayadas, algunas combinaciones crecían juntas mejor que la cepa de referencia. Con ese sistema midieron los costos de producción y los beneficios de recibir el compuesto requerido. La pérdida de autonomía podía acompañarse de una ventaja cuando el recurso complementario estaba disponible.
El establecimiento de un consorcio de este tipo depende de lo que recibe cada socio cuando es raro. Si el socio A es escaso y B abundante, A puede disponer de mucho recurso proporcionado por B, pero al aumentar A cambia la relación entre oferta y demanda, una dependencia de frecuencia que puede favorecer la coexistencia. Los ensayos de Pande et al., que estudiaron invasiones desde baja frecuencia y la competencia con tipos no cooperadores concretos, delimitan la estabilidad frente a esas variantes dentro del sistema experimental.
La posibilidad de complementar una función perdida afecta también a la reversibilidad. Si el ambiente empieza a suministrar el aminoácido, el socio que antes lo proporcionaba puede dejar de ser necesario. Si la asociación se rompe sin una fuente alternativa, la pérdida de la ruta puede impedir la supervivencia. Recuperar la autonomía requeriría cambios adicionales cuya accesibilidad depende del estado genético, por lo que la dependencia actual puede persistir incluso después de que desaparezca la condición que favoreció su origen.
Las funciones pueden distribuirse entre más de dos participantes. Esto amplía las combinaciones posibles y puede producir rutas indirectas de intercambio, pero exige también que los componentes necesarios coincidan en espacio y tiempo. La existencia de varias especies capaces de cubrir una función puede amortiguar la pérdida de un socio, mientras que la dependencia de una única fuente hace de esta un punto sensible. Por eso la redundancia funcional se mide con independencia de la diversidad taxonómica.
Un consorcio sometido a pruebas de estabilidad
Se quiere mantener un cultivo con dos cepas complementarias en el que A produce un metabolito que B necesita y B suministra otro que A no sintetiza. El cultivo combinado alcanza más biomasa que cada cepa aislada. Antes de atribuir ese resultado a un mutualismo estable es preciso saber cómo se hizo la comparación, porque los cultivos individuales podrían carecer simplemente de un nutriente que el medio combinado contiene por arrastre del inóculo.
El primer paso sería repetir los ensayos con medios definidos, controlar los recursos transportados y medir las concentraciones de ambos metabolitos a lo largo del tiempo. El costo de la dependencia se evalúa en cultivos suplementados con los compuestos necesarios. Un medio condicionado, en el que una cepa creció y luego fue retirada, ayuda a determinar si el beneficio puede transmitirse mediante sustancias liberadas. Una barrera permeable a metabolitos que separe físicamente las cepas muestra si el contacto es necesario.
Después se variarían las proporciones iniciales sin cambiar la densidad total y se repetiría la comparación a varias densidades. Que cada cepa aumente en frecuencia cuando empieza rara es evidencia compatible con la coexistencia en esas condiciones. Esa observación local necesita, sin embargo, un seguimiento prolongado, porque una demora en el intercambio o una acumulación de productos podría generar oscilaciones y una proporción estable durante pocos ciclos puede ser un transitorio.
Un ensayo de invasión introduce una variante que recibe el metabolito pero reduce su aporte, tras comprobar que esa modificación deja intactas las demás propiedades relevantes. Si el invasor desaparece, interesa saber si no capta el recurso, queda lejos del productor o pierde una interacción favorable. Si se mantiene, el resultado puede ser una coexistencia con menor productividad. Si desplaza a un socio y provoca el colapso, se ha identificado una vulnerabilidad del régimen ensayado.
La comparación debe incluir transferencias sucesivas. Un cultivo puede rendir bien en el primer ciclo gracias a las reservas iniciales y perder estabilidad tras varias diluciones. Una dependencia que tolera transferencias suaves puede fallar con cuellos de botella intensos, cuando algunos inóculos quedan sin uno de los socios. La variación entre réplicas forma entonces parte del fenómeno. Una media de biomasa informada sin más ocultaría cultivos colapsados junto a otros que mantuvieron ambos linajes.
Un análisis adicional intercambia el ambiente de los linajes evolucionados. Si A y B aumentan su dependencia durante una serie de transferencias, se cultivan luego por separado con suplementos y se recombinan con los antecesores para formar parejas cruzadas que ayudan a distinguir una mejora general de la producción de una adaptación específica a la contraparte. La secuenciación de los linajes puede identificar cambios candidatos, cuyo papel causal requiere, cuando sea posible, reconstrucción o manipulación funcional.
Por último se modifica alguna condición que podía sostener la cooperación, como la mezcla, la distancia o la disponibilidad externa del metabolito, para localizar la propiedad del sistema que regula el conflicto. Si una variante de bajo aporte invade solo cuando aumenta la difusión, la retención local participaba en la estabilidad. Si la dependencia desaparece al suplementar el medio, era la limitación nutricional la que definía el beneficio del intercambio. De resultados así se derivan predicciones para condiciones posteriores y controles diseñados en función de los mecanismos identificados.
La evolución de una asociación puede evaluarse entonces con una descripción precisa de sus fallos. En el ejemplo, una medida útil de estabilidad sería la proporción de transferencias en que ambos socios dejan descendencia viable, acompañada de las distribuciones de abundancia y rendimiento.
Referencias
Kiers, E. T., Rousseau, R. A., West, S. A., y Denison, R. F. (2003). Host sanctions and the legume–rhizobium mutualism. Nature, 425, 78–81. https://doi.org/10.1038/nature01931
Kiers, E. T., Duhamel, M., Beesetty, Y., Mensah, J. A., Franken, O., Verbruggen, E., Fellbaum, C. R., Kowalchuk, G. A., Hart, M. M., Bago, A., Palmer, T. M., West, S. A., Vandenkoornhuyse, P., Jansa, J., y Bücking, H. (2011). Reciprocal rewards stabilize cooperation in the mycorrhizal symbiosis. Science, 333(6044), 880–882. https://doi.org/10.1126/science.1208473
Leeks, A., dos Santos, M., y West, S. A. (2019). Transmission, relatedness, and the evolution of cooperative symbionts. Journal of Evolutionary Biology, 32(10), 1036–1045. https://doi.org/10.1111/jeb.13505
McCutcheon, J. P., y Moran, N. A. (2012). Extreme genome reduction in symbiotic bacteria. Nature Reviews Microbiology, 10, 13–26. https://doi.org/10.1038/nrmicro2670
Nguyen, P. L., y van Baalen, M. (2020). On the difficult evolutionary transition from the free-living lifestyle to obligate symbiosis. PLOS ONE, 15(7), e0235811. https://doi.org/10.1371/journal.pone.0235811
Pande, S., Merker, H., Bohl, K., Reichelt, M., Schuster, S., de Figueiredo, L. F., Kaleta, C., y Kost, C. (2014). Fitness and stability of obligate cross-feeding interactions that emerge upon gene loss in bacteria. The ISME Journal, 8(5), 953–962. https://doi.org/10.1038/ismej.2013.211
Uchiumi, Y., y Sasaki, A. (2020). Evolution of division of labour in mutualistic symbiosis. Proceedings of the Royal Society B, 287, 20200669. https://doi.org/10.1098/rspb.2020.0669