Una mutación que mejora el crecimiento de una bacteria puede reducirlo cuando aparece en otro fondo genético. El cambio molecular es el mismo, pero han cambiado las condiciones internas que determinan sus consecuencias. Esta dependencia obliga a estudiar combinaciones, porque a partir del efecto de cada mutación medido por separado puede ser imposible anticipar el comportamiento de un organismo que reúne varias de ellas.
El paisaje adaptativo organiza ese problema mediante un espacio de configuraciones y una medida de aptitud. Su utilidad aparece cuando se especifica cómo puede cambiar una configuración y se pregunta qué recorridos conducen a resultados mejores. La imagen de una montaña ayuda a introducir la idea, aunque pronto necesita correcciones. Como los espacios genéticos tienen muchas dimensiones, las poblaciones ocupan varios estados simultáneamente y las mutaciones disponibles dependen de mecanismos concretos, se construye primero el objeto matemático y solo después se examina qué dinámica admite.
Configuraciones, vecindarios y aptitud
Consideremos un organismo haploide con tres posiciones genéticas de dos variantes cada una, cuya configuración se escribe como una secuencia de tres ceros y unos. Hay ocho genotipos posibles. Si las mutaciones cambian una posición cada vez, dos genotipos son vecinos cuando difieren en un solo símbolo. El conjunto de configuraciones forma entonces los vértices de un cubo cuyas aristas representan las mutaciones permitidas. Con veinte posiciones habría más de un millón de vértices y la representación tridimensional dejaría de servir para visualizar el conjunto, aunque la definición de vecindad seguiría siendo sencilla.
A cada genotipo se le asigna una aptitud bajo condiciones ambientales especificadas. En un modelo de generaciones discretas puede interpretarse como un factor esperado de contribución a la generación siguiente; en los experimentos microbiológicos suelen utilizarse medidas de crecimiento o resultados de competiciones. Debe conocerse la relación entre el indicador medido y la reproducción diferencial que se pretende representar. Una concentración inhibitoria de un antibiótico y una tasa de crecimiento describen propiedades diferentes, aunque ambas puedan ser relevantes para la adaptación bacteriana.
Un paisaje queda definido por el conjunto de genotipos, las conexiones admisibles y sus valores de aptitud. La misma tabla de valores puede originar recorridos distintos si cambia la vecindad. Las duplicaciones, la recombinación o la transferencia de segmentos introducen movimientos que el cubo de mutaciones puntuales omite, con lo que cualquier conclusión sobre accesibilidad vale para una clase de cambios posibles.
La aptitud absoluta y la relativa cumplen funciones distintas. Si todos los tipos se reproducen por un factor inferior a uno, la población puede disminuir aunque uno de ellos aumente su frecuencia, impulsado por una selección relativa que favorece al mejor competidor entre los presentes sin garantizar la persistencia demográfica. Para comparar dos genotipos suele usarse el coeficiente , cuya interpretación presupone que ambos valores se obtuvieron bajo condiciones comparables. Cuando interesa describir la acumulación multiplicativa a lo largo de generaciones es más cómodo trabajar con .
Falta fijar el tiempo de evaluación. Un genotipo puede crecer rápidamente durante las primeras horas y agotarse antes que otro; si el experimento transfiere cultivos cada día, la ventaja relevante depende del ciclo completo y una medición puntual puede ordenar las variantes de otra manera. El paisaje incorpora estas decisiones experimentales, dado que ninguna altura genérica resume todas las circunstancias en que vive un organismo.
La interacción cambia el efecto de una modificación
Con dos posiciones binarias se miden cuatro valores, , , y . Sobre una escala aditiva, la interacción entre ambas posiciones se expresa mediante
Si , el efecto conjunto coincide con la suma de los efectos individuales en esa escala. Si los valores son 1,00; 1,10; 1,20 y 1,35, la interacción vale 0,05 y mide cuánto supera el doble cambio a la predicción aditiva de 1,30. Hay interacción de magnitud, pero ambas modificaciones siguen siendo favorables en los dos fondos genéticos y este pequeño paisaje conserva un recorrido ascendente desde cualquiera de sus vértices hasta 11.
La magnitud de esa desviación depende de la escala elegida. Si se espera que los factores reproductivos se multipliquen, la referencia natural es , una condición que se vuelve aditiva al aplicar logaritmos. De ahí que una interacción definida en aptitud absoluta pueda desaparecer o cambiar de magnitud al adoptar otra escala. Antes de interpretar un coeficiente como un mecanismo biológico debe justificarse el modelo de ausencia de interacción contra el cual se calcula.
La epistasis de signo, que aparece cuando una modificación aumenta la aptitud en un fondo y la reduce en otro, tiene una relación más directa con los recorridos. Con , , y , por ejemplo, el cambio de la segunda posición es perjudicial desde 00 y favorable desde 10, así que para llegar a 11 mediante mejoras sucesivas el cambio de la primera posición tiene que incorporarse antes que el de la segunda. Una transformación estrictamente creciente de la escala preserva ese cambio de signo, porque conserva las comparaciones entre vecinos.
Cuando ambas modificaciones cambian el signo de su efecto se habla de epistasis recíproca de signo. Los valores 1,00; 0,80; 0,90 y 1,20 producen ese patrón, con 00 y 11 como máximos locales separados por intermediarios de menor aptitud. Poelwijk et al. (2011) demostraron que, en un espacio bialélico conectado por cambios de una posición, la presencia de varios máximos exige algún motivo de este tipo como condición necesaria. El motivo puede aparecer, sin embargo, en una pequeña sección del espacio sin que esos vértices sigan siendo máximos cuando se consideran todas las posiciones restantes.
El efecto de una mutación depende, por tanto, del contexto genético desde el cual se evalúa. Una explicación molecular puede situar esa dependencia en el plegamiento de una proteína o en el equilibrio entre actividades enzimáticas, pero el coeficiente de interacción solo resume el patrón medido. Como dos mecanismos distintos pueden generar la misma tabla de cuatro valores, identificar el mecanismo requiere experimentos adicionales.
Un recorrido completo por ocho estados
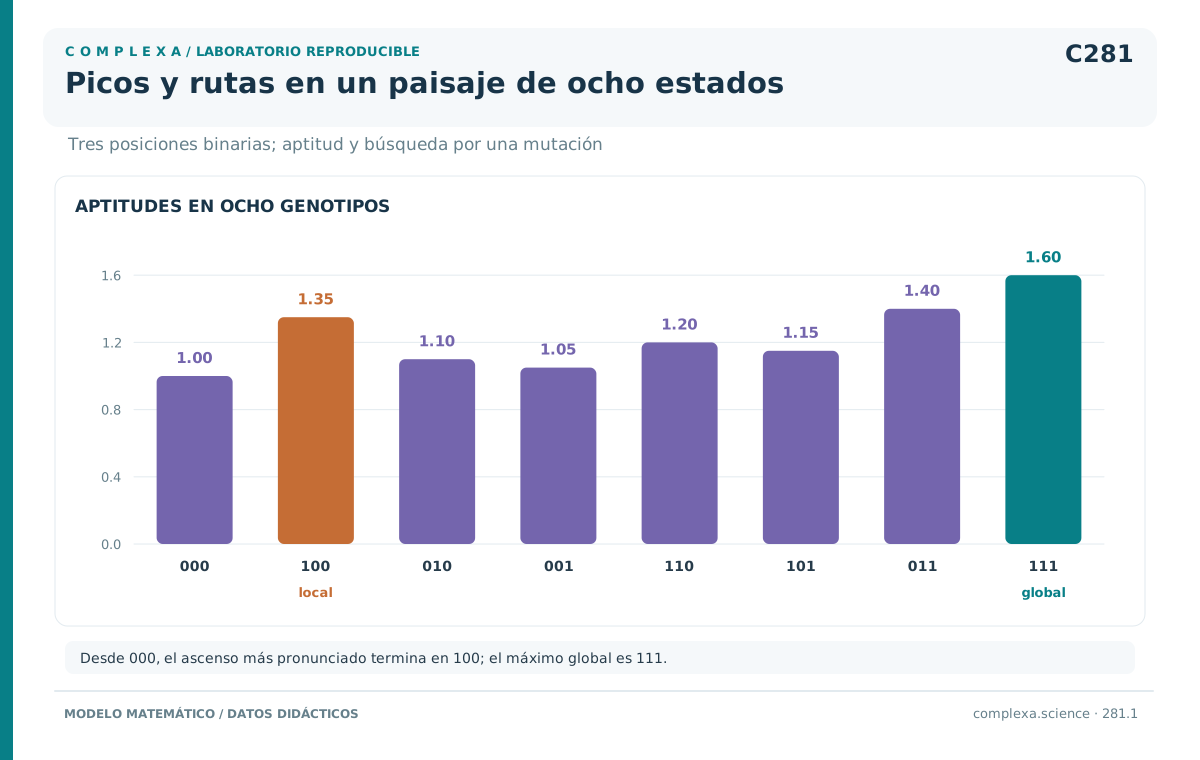
Construyamos un ejemplo didáctico de tres posiciones. Los valores de la tabla son inventados para examinar decisiones de búsqueda y no corresponden a ninguna proteína ni a ningún estudio clínico.
| Genotipo | Aptitud asignada |
|---|---|
| 000 | 1,00 |
| 100 | 1,35 |
| 010 | 1,10 |
| 001 | 1,05 |
| 110 | 1,20 |
| 101 | 1,15 |
| 011 | 1,40 |
| 111 | 1,60 |
Desde 000 puede cambiarse cualquiera de las tres posiciones y la mayor mejora inmediata conduce a 100. Sus vecinos, sin embargo, son 000, 110 y 101, todos con aptitud inferior a 1,35, de modo que una regla que solo acepta mejoras se detiene allí, en un máximo local, es decir, en un estado superior a todos sus vecinos. El máximo global del conjunto es 111, con aptitud 1,60.
La ruta que cambia primero la segunda posición alcanza 010 y desde allí puede pasar a 110 y luego a 111, con valores siempre crecientes (1,00; 1,10; 1,20 y 1,60). Otra ruta pasa por 011. Si se comienza por la tercera posición, también se llega a 111 mediante dos órdenes diferentes. De las seis permutaciones que incorporan una vez cada cambio, cuatro son ascendentes y solo quedan bloqueadas las dos que comienzan por la primera posición.
Con este recuento puede separarse la existencia de una ruta de su probabilidad. Si en cada paso se elige uniformemente entre todos los vecinos de aptitud superior, la primera elección lleva a 100 con probabilidad de un tercio. Las otras dos elecciones tampoco aseguran la llegada a 111, porque desde 110 y 101 existe un paso ascendente hacia 100 que revierte una modificación anterior. La probabilidad de terminar en 111 es un medio desde cada uno de esos estados y tres cuartos desde 010 o 001, desde los cuales se puede pasar por 011 o por uno de esos intermediarios. Al ponderar las tres primeras elecciones, la probabilidad de alcanzar 111 desde 000 es un medio. El recuento anterior de cuatro caminos ascendentes se limitaba a los seis órdenes mínimos sin reversiones. Esta caminata, en cambio, recorre el cubo completo y puede volver atrás.
Con una regla didáctica que pondera la primera elección por la ganancia inmediata, las ponderaciones son 0,35; 0,10 y 0,05. La probabilidad de llegar directamente a 100 en ese primer movimiento es entonces 0,70, sin contar algunos recorridos que comienzan por otra posición y también pueden acabar allí. Esta regla ilustra un sesgo de búsqueda y no pretende ser una fórmula exacta de fijación genética.
Una estrategia de ascenso más pronunciado elige siempre 100 y falla en todas las repeticiones iniciadas en 000. Como el fallo procede del criterio mismo, explorar con mayor intensidad las mejoras inmediatas tampoco lo corrige. Para escapar, el algoritmo tendría que aceptar descensos, cambiar simultáneamente varias posiciones o conservar alternativas mientras explora, opciones que introducen dinámicas diferentes, cada una con sus propios costes.
El mismo ejemplo sirve para estudiar la incertidumbre. Si la diferencia entre 100 y 110 fuese menor que el error de medición, no habría base suficiente para declarar descendente ese paso y las rutas clasificadas como accesibles podrían cambiar entre réplicas. Una descripción experimental razonable conservaría intervalos o distribuciones de incertidumbre para cada aptitud y calcularía con qué frecuencia aparece cada máximo al propagar esa incertidumbre.
El número de máximos, por último, describe solo en parte la dificultad de la búsqueda. Para una regla de movimiento dada, esa dificultad depende también de las regiones desde las cuales cada máximo es alcanzable y de la probabilidad con que la dinámica entra en ellas. Un pico modesto puede atraer muchas trayectorias y un pico elevado, en cambio, puede tener pocas rutas de acceso.
Neutralidad y regiones que permiten seguir explorando
Dos configuraciones pueden tener aptitudes indistinguibles a la resolución del experimento y, si están conectadas por mutaciones, forman parte de una red neutral. Una población que se desplaza dentro de esa región puede conservar aproximadamente su desempeño mientras cambia el conjunto de mutaciones accesibles desde sus integrantes. El desplazamiento modifica las oportunidades posteriores aunque el indicador observado no registre una mejora inmediata.
Imaginemos dos genotipos de aptitud 1,00 unidos por una mutación. Los demás vecinos del primero tienen aptitudes inferiores a 1,00 y uno de los vecinos del segundo alcanza 1,20. El primero es un máximo local no estricto, igualado por un vecino y no superado por ninguno. El segundo, que tiene una salida ascendente, no es un máximo local. Una caminata que exige mejoras queda detenida al llegar al primero. Otra que admite cambios neutrales puede alcanzar el segundo y mejorar después. Al tratar la meseta como una región conectada se distingue la inmovilidad impuesta por el algoritmo de la existencia de una ruta hacia mayor aptitud.
La neutralidad experimental puede ocultar diferencias pequeñas. Una ventaja reproductiva por generación quizá sea difícil de medir en un ensayo corto y tenga, sin embargo, consecuencias apreciables tras muchas generaciones. A la inversa, una diferencia estadísticamente detectable puede ser pequeña frente a la deriva de la población relevante. El significado dinámico de una diferencia exige comparar la magnitud del efecto con el tamaño efectivo y el plazo considerado, además de informar la precisión de la medición.
En esta situación se separan dos propiedades, la altura y la robustez mutacional. Dos genotipos de igual aptitud pueden diferir en los efectos de sus mutaciones vecinas. Si la descendencia del primero suele conservar buena reproducción y la del segundo suele perderla, una oferta mutacional elevada puede favorecer distribuciones poblacionales distintas. En la ecuación de reproducción y mutación, esa diferencia aparece en la combinación entre los valores de los vecinos y las entradas de la matriz de transición. El desempeño de la población depende tanto del genotipo más abundante como de la producción recurrente de variantes.
Supongamos que el 99 % de la descendencia conserva un genotipo de aptitud 1,10 y que el 1 % restante tiene aptitud cero. La aptitud media de esa descendencia es 1,089, valor que sube a 1,097 si el genotipo mutante tiene aptitud 0,80. Este promedio ponderado compara solo dos distribuciones didácticas de descendientes, por lo que seguir la competencia entre linajes a lo largo del tiempo exigiría representar también la reproducción posterior de esos tipos y sus nuevas mutaciones.
De una caminata a una población
La caminata que sustituye un genotipo por otro aproxima un régimen de mutación poco frecuente. En ese régimen una variante aparece y se pierde o se fija, con lo que la siguiente modificación relevante llega cuando la población ya ha vuelto a ser casi uniforme. Si la selección discrimina suficientemente los efectos, las sustituciones pueden aproximarse como una secuencia de mejoras. El régimen simplifica el cálculo de accesibilidad, aunque deja fuera la coexistencia prolongada y la competencia entre linajes.
Cuando aumenta la oferta de mutaciones, varias variantes beneficiosas pueden surgir antes de que se resuelva la competencia. La población ocupa entonces una distribución de genotipos cuya representación mediante un único punto oculta información sobre los posibles descendientes de los linajes minoritarios. Mientras la mayor parte de sus individuos permanece en un máximo local, una población puede explorar una región de aptitud menor y originar desde allí una combinación favorable.
Una formulación determinista sencilla combina reproducción y mutación en las ecuaciones
Aquí es la frecuencia del genotipo y la probabilidad de que su descendencia pertenezca a , de modo que las filas de suman uno. Los valores son constantes en este modelo. La ecuación supone una población suficientemente grande para representar frecuencias esperadas y coloca la mutación después de la reproducción, por lo que otra secuencia de eventos puede requerir otra formulación.
Si se elimina la mutación, la selección discreta con aptitudes constantes satisface la identidad
La identidad se obtiene sustituyendo en la media de la generación siguiente y muestra que la media aumenta mientras exista variación de aptitud entre los tipos presentes. Ese aumento está asegurado solo bajo los supuestos del cálculo, que mantienen constantes los valores y omiten los procesos que alteran las combinaciones o el entorno.
La deriva genética introduce otra diferencia. En poblaciones finitas, donde el tamaño efectivo determina la intensidad del azar reproductivo en relación con la selección, una variante desfavorable puede aumentar por muestreo y una favorable puede desaparecer. Un valle puede cruzarse mediante la fijación de intermediarios o mediante la aparición de una combinación favorable en un linaje intermedio que nunca llega a dominar. Ambas posibilidades tienen tiempos de espera distintos, algo que un diagrama de picos unidos por flechas deja fuera.
La recombinación modifica la distribución de combinaciones disponibles, ya que puede reunir cambios favorables originados en linajes distintos y también romper asociaciones de las que depende una aptitud elevada. Moradigaravand y Engelstädter (2012) mostraron, en paisajes con accesibilidad limitada, que sus efectos dependen de la estructura del paisaje, del tamaño poblacional y de la tasa de recombinación. Ampliar las formas de movimiento puede, por ello, acelerar la llegada al máximo con unos parámetros y no con otros.
Una comparación de estrategias de búsqueda requiere mantener constante el presupuesto de evaluación, porque probar todas las combinaciones y escoger la mejor utiliza más información que inspeccionar unos pocos vecinos. Si se compara únicamente la calidad final, la diferencia puede deberse por entero a ese presupuesto. En el ejemplo de ocho genotipos, la enumeración exhaustiva identifica 111 sin dificultad, pero deja de ser una alternativa práctica cuando crece el número de posiciones.
Puede fijarse un número de evaluaciones y repetirse la búsqueda desde estados iniciales conocidos, con un registro de cuántas veces se alcanza una configuración por encima de un umbral y de cuánto tarda cada trayectoria. El mejor resultado entre miles de intentos y el resultado típico de un intento responden a preguntas diferentes. En diseños experimentales costosos interesa además cuánto se aprende de las dependencias con cada evaluación, información que puede utilizarse en la decisión siguiente.
Las condiciones de partida modifican esos resultados de forma concreta. En la tabla didáctica, 100 es un destino absorbente para una búsqueda que solo acepta mejoras y 111 ya cumple el objetivo global. Promediar ambos sin declarar cómo se eligieron los estados iniciales da una medida arbitraria de dificultad. Para representar una población de partida se usa su distribución real o se especifica una distribución hipotética, cuya influencia sobre los resultados se estudia luego con un análisis de sensibilidad.
El tamaño de una cuenca puede definirse, por ejemplo, como el número de estados que terminan en un máximo bajo ascenso determinista. Con una regla estocástica es más útil sumar las probabilidades de llegada ponderadas por la distribución inicial. Las dos definiciones pueden ordenar los picos de manera distinta, de ahí que la palabra cuenca deba acompañarse de la dinámica que la genera, sobre todo cuando se transfieren resultados entre modelos biológicos y algoritmos de optimización.
El modelo NK y la organización de las dependencias
Para estudiar muchos paisajes sin asignar manualmente cada valor se necesita una familia de modelos. Kauffman y Weinberger (1989) desarrollaron una formulación en la que una configuración contiene componentes y la contribución de cada componente depende de otros . Una versión binaria escribe
El vector reúne las configuraciones de los componentes y cada tabla asigna un valor a las combinaciones posibles de su componente y de los otros que influyen sobre él. Con este modelo puede estudiarse cómo cambia la búsqueda al variar el número y la disposición de esas dependencias.
Con cada contribución depende exclusivamente de su componente y la mejora de un componente conserva su efecto cuando cambian los demás. Si las tablas no contienen empates, elegir por separado el mejor valor de cada posición produce entonces el óptimo global. Con , en cambio, una modificación altera varias contribuciones y su efecto puede depender de la configuración restante. En los conjuntos aleatorios habituales, aumentar suele reducir la correlación entre vecinos, si bien cada realización concreta requiere un examen propio.
Conviene declarar la convención empleada, porque algunas exposiciones llaman al número total de posiciones involucradas en una contribución y otras lo reservan para las posiciones adicionales. Confundir ambas convenciones desplaza los extremos de la comparación. Con la definición anterior, varía entre cero y . En el extremo superior, cuando todas las contribuciones dependen de toda la secuencia y sus entradas se asignan de manera independiente, se obtiene un límite sin correlación entre las aptitudes de genotipos distintos.
En ese límite, cada vértice y sus vecinos tienen valores independientes de una misma distribución continua. Como cada uno tiene la misma probabilidad de ser el mayor del grupo, la probabilidad de que un vértice sea máximo local es y, al existir vértices, el número esperado de máximos es . Para se esperan unos 93 máximos, un promedio sobre paisajes aleatorios que puede apartarse mucho del número presente en una red genética concreta.
La disposición de las dependencias puede influir tanto como su cantidad. Un modelo modular agrupa posiciones con interacciones intensas dentro de cada grupo y contribuciones independientes entre grupos, una estructura que modifica la distribución de caminos accesibles. Schmiegelt y Krug (2013) encontraron propiedades específicas de accesibilidad en paisajes por bloques, incluso cuando ciertos promedios se parecían a los de otras arquitecturas NK, un resultado según el cual un único indicador de conectividad deja fuera parte de la organización de las interacciones.
Para usar el modelo en una organización o un sistema técnico hay que identificar qué representa cada componente. Una decisión sobre horarios podría depender de la disponibilidad de personal y de la demanda; otra sobre equipamiento, del presupuesto. Las tablas de contribución tendrían que estimarse o justificarse. Asignar números aleatorios es válido para explorar mecanismos abstractos, pero una simulación así no mide la complejidad de una institución real.
Qué muestran los paisajes medidos
Los experimentos que construyen combinaciones de mutaciones sustituyen la metáfora por comparaciones observables. Weinreich et al. (2006) estudiaron cinco modificaciones en una betalactamasa que, reunidas, elevaban fuertemente la resistencia a un antibiótico. De los órdenes posibles de incorporación, solo un subconjunto restringido era compatible con aumentos sucesivos de resistencia, debido a la dependencia de los efectos respecto del fondo genético. El resultado vale para ese conjunto de modificaciones y para la medida utilizada, dentro de un repertorio de rutas evolutivas que en la bacteria es más amplio.
La distinción entre una sección y el espacio completo pesa especialmente en estos diseños, porque elegir las mutaciones por su presencia en una variante final de alta resistencia condiciona el conjunto que después se reconstruye. Otras posiciones pueden abrir caminos alternativos, producir compensación o cambiar la clasificación de un máximo. La enumeración exhaustiva dentro del conjunto seleccionado sigue siendo útil siempre que sus conclusiones se mantengan dentro de ese alcance.
Franke et al. (2011) examinaron la accesibilidad de caminos en diferentes familias de paisajes y los compararon con un conjunto experimental de ocho loci de Aspergillus niger. La abundancia de caminos posibles puede crecer con la dimensión mientras disminuye la proporción de caminos individualmente accesibles, de modo que una fracción baja de rutas ascendentes puede coexistir con muchas rutas disponibles en términos absolutos. El efecto depende de las correlaciones y de la definición de camino empleada.
Un estudio posterior sobre dihidrofolato reductasa es otro argumento contra la identificación de rugosidad con bloqueo. Papkou et al. (2023) mapearon más de 260.000 genotipos y encontraron numerosos máximos, muchos de aptitud baja, junto con una amplia accesibilidad de picos elevados. Un recuento de máximos habría dado una descripción incompleta de sus posibilidades evolutivas en el sistema estudiado, donde la distribución de las rutas y de las regiones que conducían a esos picos hacía eficiente la adaptación.
De estos resultados tampoco se sigue que una dimensión elevada vuelva siempre fácil la adaptación, ya que los espacios accesibles pueden contener regiones desconectadas, restricciones de viabilidad y mutaciones extremadamente improbables, además de rutas con tiempos de recorrido distintos. La pregunta empírica es cuánto pesa cada región bajo el proceso que realmente opera y durante el periodo de observación disponible.
Reconstruir un paisaje sin fabricar su geometría
La medición comienza definiendo qué genotipos se compararán y bajo qué protocolo, con réplicas que separen la variación experimental de las diferencias reproducibles. En una competición, las frecuencias iniciales, la densidad y la duración del ensayo pueden afectar la estimación. Cuando la aptitud depende de la frecuencia del competidor, cada genotipo requiere la medición de una función de las condiciones poblacionales.
La cobertura del espacio determina las preguntas identificables. Con tres posiciones binarias se pueden construir todas las combinaciones. Con treinta aparecen más de mil millones. Un muestreo parcial puede estimar efectos locales o ajustar un modelo predictivo, pero la existencia de un máximo global deja de ser directamente observable. Presentar como global al mejor genotipo medido confunde una propiedad del conjunto muestreado con una propiedad del espacio completo.
Los modelos estadísticos de interacción son una aproximación posible. Con variables binarias codificadas de manera explícita se puede ajustar una respuesta con efectos individuales y términos por pares. Cuando se añaden interacciones de orden superior, el número de parámetros crece rápidamente y la regularización puede estabilizar la estimación a costa de introducir supuestos sobre qué términos son pequeños o prescindibles. La calidad predictiva ha de evaluarse en combinaciones que no se utilizaron para ajustar el modelo.
Un modelo que predice bien las aptitudes promedio todavía puede ordenar mal dos vecinos casi iguales, un error grave cuando se pretende reconstruir caminos ascendentes. Por eso conviene evaluar, además del error global, la capacidad para anticipar las diferencias entre vecinos y su signo, dado que predecir una respuesta y reconstruir una topología de accesibilidad exigen diagnósticos relacionados pero distintos.
Una transformación no lineal entre una propiedad molecular y la respuesta medida también puede producir interacciones estadísticas. Cambios aditivos en la energía de plegamiento, por ejemplo, pueden traducirse en efectos no aditivos sobre el crecimiento. En tal caso, la interacción estimada sobre el crecimiento describe correctamente ese nivel, aunque su explicación pueda estar en una función común de conversión. Antes de atribuir a un coeficiente de epistasis un contacto molecular directo es preciso, por tanto, situar el nivel de la variable.
Búsqueda y decisión fuera de la genética
Un paisaje de decisiones puede definirse para configuraciones de un servicio, combinaciones de parámetros o diseños de una intervención. La transferencia más útil consiste en hacer explícitas las dependencias. En un ejemplo organizacional didáctico, cambiar un procedimiento de derivación funciona solo cuando existe capacidad para absorber las consultas adicionales, por lo que evaluar cada modificación por separado puede dar resultados diferentes de los que se obtienen al introducirlas conjuntamente. El vecindario tendría que reflejar, además, qué modificaciones pueden implementarse de manera viable en cada periodo.
En estas aplicaciones rara vez existe un objetivo único aceptado por todos, porque reducir la espera, aumentar la continuidad y distribuir las cargas afectan a personas distintas. Una función ponderada puede resumir esos criterios, pero sus pesos expresan decisiones normativas y cambiarlos modifica la altura asignada a cada configuración. A veces es más informativo conservar varias medidas y trabajar con el orden parcial que se obtiene al estudiar qué configuraciones quedan dominadas por otras.
La comparación con un máximo local ayuda a formular una pregunta concreta, la de si el procedimiento actual supera a todas las modificaciones pequeñas ensayadas o si se ha demostrado que ninguna reorganización mayor podría mejorar sus resultados. La segunda afirmación requiere un conocimiento mucho más amplio. Un historial de cambios fallidos puede revelar restricciones reales y puede indicar igualmente que se exploró un vecindario estrecho o que las modificaciones se evaluaron antes de completar su implementación.
Al diseñar una búsqueda puede reservarse capacidad para ensayar combinaciones coordinadas, observar el desempeño durante un plazo suficiente y conservar alternativas prometedoras, decisiones que deben justificarse por sus costes y consecuencias. En salud, que un algoritmo de optimización pueda atravesar valles es una razón insuficiente para aceptar un descenso transitorio de un indicador, porque el significado del indicador, la reversibilidad de la decisión y el riesgo para las personas requieren una evaluación propia.
Referencias
Franke, J., Klözer, A., de Visser, J. A. G. M., y Krug, J. (2011). Evolutionary accessibility of mutational pathways. PLOS Computational Biology, 7(8), e1002134. https://doi.org/10.1371/journal.pcbi.1002134
Kauffman, S. A., y Weinberger, E. D. (1989). The NK model of rugged fitness landscapes and its application to maturation of the immune response. Journal of Theoretical Biology, 141(2), 211–245. https://doi.org/10.1016/S0022-5193(89)80019-0
Moradigaravand, D., y Engelstädter, J. (2012). The effect of bacterial recombination on adaptation on fitness landscapes with limited peak accessibility. PLOS Computational Biology, 8(10), e1002735. https://doi.org/10.1371/journal.pcbi.1002735
Papkou, A., García-Pastor, L., Escudero, J. A., y Wagner, A. (2023). A rugged yet easily navigable fitness landscape. Science, 382(6673). https://doi.org/10.1126/science.adh3860
Poelwijk, F. J., Tănase-Nicola, S., Kiviet, D. J., y Tans, S. J. (2011). Reciprocal sign epistasis is a necessary condition for multi-peaked fitness landscapes. Journal of Theoretical Biology, 272(1), 141–144. https://doi.org/10.1016/j.jtbi.2010.12.015
Schmiegelt, B., y Krug, J. (2013). Evolutionary accessibility of modular fitness landscapes. Journal of Statistical Physics. https://doi.org/10.1007/s10955-013-0868-8
Weinreich, D. M., Delaney, N. F., DePristo, M. A., y Hartl, D. L. (2006). Darwinian evolution can follow only very few mutational paths to fitter proteins. Science, 312(5770), 111–114. https://doi.org/10.1126/science.1123539