La construcción de nicho estudia cómo la actividad de los organismos modifica las condiciones ambientales que los afectan a ellos mismos y a otras poblaciones. La expresión abarca las modificaciones físicas del entorno y, en algunas formulaciones, las decisiones que alteran la exposición a determinadas condiciones, como la elección de hábitat. Sus ejemplos van desde actividades ostensibles como excavar una madriguera hasta procesos menos visibles como la alteración de la disponibilidad de nutrientes. La pregunta evolutiva aparece cuando una modificación afecta las presiones de selección que experimenta una población, relación causal que puede establecerse sin considerar si la modificación es deliberada (Laland et al., 2016).
Una población de microorganismos consume nutrientes y libera sustancias al medio. Durante las primeras horas una variante puede crecer más deprisa que otra. Después cambia la acidez, disminuye un recurso y se acumulan productos del metabolismo hasta que la comparación inicial deja de describir el ambiente que las propias poblaciones han producido. Si las variantes difieren en su tolerancia a esas condiciones, también cambia su éxito relativo. El ambiente participa entonces en la selección y, a la vez, conserva una parte de la actividad de los organismos.
Las consecuencias de una modificación pueden beneficiar al constructor, perjudicarlo o afectar principalmente a otra especie. El rasgo responsable tampoco necesita haber evolucionado por ese efecto ambiental. Un producto metabólico puede transformar el entorno aunque su producción se explique por otra función. La selección puede modificar posteriormente la cantidad producida o la tolerancia a sus efectos. Reconstruir la secuencia exige separar el origen del rasgo, su efecto actual y las respuestas evolutivas posteriores.
La primera dificultad es práctica. La observación de organismos y ambientes modificados produce abundantes asociaciones, pero pocas de ellas establecen por sí mismas un circuito de retroalimentación. Los organismos pueden haber ocupado de antemano el lugar más favorable, la diferencia ambiental puede proceder de un factor externo que también determina su abundancia y la respuesta fenotípica puede ser reversible. Cada una de estas posibilidades exige una comparación distinta, que el solo vocabulario de la teoría deja sin resolver.
Del cambio ambiental a una explicación evolutiva
El concepto de ingeniería de ecosistemas dirige la atención hacia organismos que alteran condiciones físicas y, con ello, la disponibilidad de recursos. La construcción de nicho, en cambio, coloca en primer plano el problema de la selección, si bien ambos enfoques pueden estudiar el mismo sistema con variables de respuesta que suelen diferir. Medir la retención de agua producida por una estructura informa sobre un efecto ecológico. Averiguar cómo esa retención cambia el éxito reproductivo relativo de distintas variantes añade una pregunta evolutiva, a la que puede seguir la de si las frecuencias o los rasgos heredables cambian a consecuencia de esa selección.
Matthews et al. (2014) propusieron una distinción operacional en tres etapas. Primero se establece que un organismo modifica el ambiente y después se determina si esa modificación cambia las presiones de selección sobre un receptor, que puede pertenecer a la población constructora o a otra población. Para demostrar evolución por construcción de nicho se necesita, además, una respuesta evolutiva atribuible a la modificación. Con estas etapas puede localizarse qué parte de una explicación ha sido contrastada y cuál sigue siendo una hipótesis.
Si unas plantas modifican el suelo y las plántulas crecen mejor en el suelo previamente ocupado, la comparación confirma un efecto sobre el crecimiento en las condiciones del ensayo. Para estudiar selección habría que comparar variantes o valores de un rasgo y determinar si cambia su éxito relativo. Cuando todas las variantes mejoran en la misma proporción, el suelo puede aumentar la productividad sin alterar la selección sobre el rasgo considerado. El resultado depende también de la variable elegida, porque una misma modificación podría dejar intacta la selección sobre el tamaño de la semilla y alterar la que actúa sobre la tolerancia a la acidez.
La respuesta evolutiva plantea una exigencia adicional. Una descendencia de mayor tamaño puede reflejar mejores condiciones de desarrollo o diferencias en los recursos recibidos de sus progenitores. Un ensayo en ambiente común examina si persisten diferencias entre linajes cuando se igualan ciertas condiciones. Su interpretación depende de cuánto dure el ensayo y de qué formas de transmisión se hayan controlado, ya que algunos efectos parentales pueden sobrevivir a una generación criada en condiciones uniformes.
Los experimentos con moscas y levaduras ilustran una parte de este recorrido. Stamps et al. (2012) manipularon la presencia de adultos y larvas de Drosophila melanogaster en un sustrato de banana y estudiaron la densidad y la composición de las comunidades de levaduras. Su diseño permitió atribuir a las actividades de las moscas los cambios del sustrato. El resultado concierne a la modificación de condiciones y comunidades de levaduras, cuya respuesta genética solo podría demostrarse con observaciones y comparaciones adicionales.
En poblaciones microbianas experimentales, Callahan et al. (2014) estudiaron la evolución de modificaciones ambientales que aumentaban la aptitud competitiva del propio organismo modificador. Trabajos de este tipo acercan la pregunta al vínculo entre un rasgo heredable y sus efectos sobre la competencia, aunque el carácter adaptativo de una actividad modificadora ha de demostrarse en cada caso para el rasgo, el ambiente y la comparación competitiva utilizados.
El ambiente como variable de estado
En un modelo donde el ambiente aparece como una constante, el éxito de una variante depende de un valor que no cambia durante el análisis, aproximación que puede ser adecuada si el intercambio con el exterior mantiene las condiciones prácticamente fijas. Cuando la actividad de los organismos produce cambios duraderos es preferible introducir una ecuación ambiental, con la cual el sistema adquiere una memoria que no puede reconstruirse solamente a partir de las frecuencias actuales.
Consideremos un modelo didáctico con dos tipos, A y B, en una población de tamaño regulado. Sea la frecuencia de A, cuyo efecto ambiental es mayor que el del tipo B. La intensidad de una modificación del medio, medida en unidades relativas, se denota . Supondremos que A aumenta a una tasa proporcional a su frecuencia y que procesos externos eliminan esa modificación, de acuerdo con la ecuación
donde expresa la contribución ambiental de una población enteramente A y la tasa de desaparición del efecto, con el tiempo medido en una unidad elegida para el ejemplo. Como es una frecuencia, la ecuación supone que la densidad total permanece constante o que su efecto ya está incorporado en . Una densidad que variara considerablemente debería incluirse en el modelo.
Supongamos ahora que la ventaja relativa de A crece con pero que A soporta una desventaja basal , de manera que la diferencia entre su tasa de crecimiento y la de B es , con . La dinámica de la frecuencia queda entonces
Es una ecuación de selección en tiempo continuo para la diferencia de tasas especificada. El factor mantiene la frecuencia dentro del intervalo admisible y hace que, en ausencia de mutación o inmigración, un tipo ausente permanezca ausente. La modificación ambiental puede favorecer a A cuando , umbral por debajo del cual la ventaja es de B.
La interpretación biológica depende de una decisión incluida en la ecuación, la de suponer que el medio modificado cambia la ventaja relativa de A, como ocurriría con una sustancia que A tolera mejor y que perjudica a B. Si ambos tipos recibieran exactamente el mismo beneficio ambiental y A pagara todo el costo de producirlo, la diferencia sería simplemente y el ambiente podría mejorar el crecimiento total mientras A disminuye. La estructura de beneficios es, por tanto, un supuesto independiente de la existencia de construcción ambiental.
El modelo contiene una realimentación positiva, porque un aumento de eleva la producción de y un mayor favorece el crecimiento relativo de A. La pérdida ambiental introduce otra escala temporal. Una parte de lo producido desaparece antes de influir en generaciones posteriores y otra puede persistir. Las ecuaciones describen esos procesos sin atribuir intención a los organismos ni presuponer que la población alcance un resultado conveniente para todos sus integrantes.
Los modelos poblacionales de Laland et al. (1999) mostraron que incluir modificaciones de recursos y procesos independientes de renovación o agotamiento puede cambiar los equilibrios evolutivos esperados. El ejemplo anterior es una formulación mucho más reducida, cuyo propósito es examinar qué información se pierde cuando el ambiente se trata como un parámetro fijo.
Umbrales y dependencia de la historia
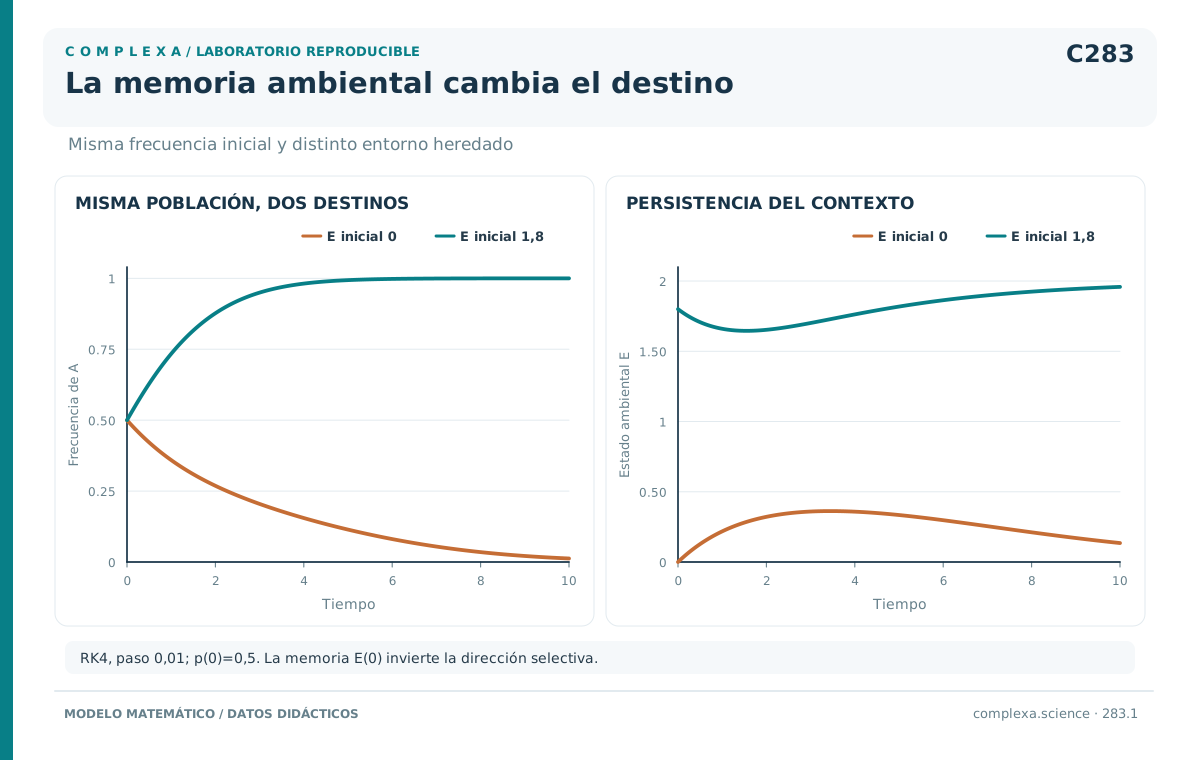
El sistema tiene un equilibrio sin A ni modificación, , cerca del cual A tiene una desventaja aproximadamente igual a y el efecto ambiental remanente disminuye a tasa . Es un equilibrio localmente estable. Hay otro con A fijado, , que resiste una pequeña introducción de B cuando
La desigualdad exige que el efecto ambiental sostenido por una población formada enteramente por A compense su desventaja basal. Es una condición de estabilidad frente a perturbaciones pequeñas, que puede cumplirse aunque A, cuando es raro en un ambiente sin modificar, no logre establecerse.
Si se cumple esa condición, existe también un equilibrio interior en
En ese punto la ventaja selectiva se anula y la producción ambiental compensa las pérdidas. El signo negativo del determinante de la matriz jacobiana, , indica que el equilibrio interior es una silla cuya curva estable separa las regiones de condiciones iniciales que se aproximan a cada uno de los dos equilibrios estables. Para decidir el destino de una población hacen falta, por tanto, su frecuencia y su ambiente iniciales.
Usar como umbral universal de establecimiento solo sería correcto bajo condiciones adicionales. Si el ambiente respondiera mucho más deprisa que las frecuencias, podría aproximarse y la frecuencia crítica de esa reducción sería . Con tiempos comparables, en cambio, el ambiente puede encontrarse muy alejado de su valor cuasiestacionario, de modo que la misma frecuencia puede crecer en un medio ya modificado y disminuir en uno recién renovado.
Tomemos , , y . El equilibrio interior está en , , mientras que la población enteramente A sostiene . Las ecuaciones se integraron con dos condiciones iniciales que comparten . Todos los números son simulados.
| Tiempo | A con ambiente inicial | A con ambiente inicial |
|---|---|---|
| 0 | 0,500 | 0,500 |
| 2 | 0,269 | 0,877 |
| 5 | 0,114 | 0,994 |
| 10 | 0,012 | 0,99998 |
En el medio inicialmente renovado, la frecuencia de A cae antes de acumular suficiente modificación ambiental. En el medio previamente condicionado, A crece y mantiene la modificación. Una predicción basada en la composición poblacional, que una comparación realizada únicamente al comienzo encontraría idéntica en ambos medios, asignaría el mismo destino a dos sistemas que evolucionan en direcciones opuestas.
La simulación muestra también por qué reemplazar la ecuación ambiental por su equilibrio puede producir un error cualitativo. Con , la aproximación rápida asignaría , valor superior al umbral selectivo, con lo cual predeciría crecimiento de A incluso en el sistema que comienza con . El error procede de eliminar una variable lenta que conserva información relevante. La reducción solo se justifica tras comparar los tiempos característicos de ambas variables.
Reconstruir la memoria y perturbar el sistema
La ecuación ambiental admite una solución que deja visible el papel del pasado,
Su primer término conserva una fracción de la condición inicial y el segundo suma la actividad constructora anterior con un peso menor para la más antigua. La frecuencia presente informa sobre la producción actual, pero la cantidad acumulada depende de la trayectoria anterior, de ahí que dos registros con el mismo valor final de puedan tener historias diferentes y, con ellas, distinto . Si se dispone de una serie suficientemente larga, esta expresión sirve para contrastar si un único tiempo de decaimiento describe los datos.
También una desviación sistemática del ajuste puede ser informativa. Si el efecto disminuye rápidamente al comienzo y después conserva un residuo duradero, quizá sea necesario distinguir dos componentes ambientales, ya que una sustancia soluble y una estructura persistente pueden responder a la misma actividad con tiempos diferentes. Esa diferencia podría representarse introduciendo y . El aumento de detalle tendría que justificarse con mediciones de ambos componentes o con una mejora predictiva que se mantenga al evaluar datos nuevos.
El modelo distingue también una perturbación transitoria de un cambio de mecanismo. Añadir una cantidad de sustancia modifica en un momento dado, a diferencia de un cambio en el régimen de renovación, que altera y, con ello, la producción ambiental necesaria para sostener A. Una adición breve puede trasladar la trayectoria a otra región de atracción si su intensidad y su duración son suficientes. Una renovación intensa y sostenida, en cambio, puede eliminar el equilibrio estable dominado por A aunque al principio exista mucho efecto acumulado.
Con los parámetros del ejemplo, el equilibrio de A pierde su ventaja frente a invasores si , aproximadamente 0,857. Ese umbral, propio de un modelo didáctico y sin valor predictivo directo para microorganismos reales, expresa la comparación entre pérdida ambiental y beneficio selectivo. Su interés experimental está en indicar qué relación estimar y qué variable manipular, siempre que la intervención sobre modifique la persistencia sin introducir, en lo posible, otras diferencias de recursos o mortalidad.
La sola observación temporal tiene menor capacidad de identificación. Que el aumento de A preceda al aumento de es compatible con producción ambiental y también con un factor externo que favoreciera primero a A y modificara después el medio. Para contrastar la relación causal puede alterarse la actividad constructora manteniendo una abundancia comparable o reproducirse artificialmente el cambio ambiental sin introducir constructores. La coincidencia de resultados en esas manipulaciones informa sobre la vía propuesta.
Otra intervención que suele revelar dependencias ocultas consiste en sustituir el ambiente conservando la población. En el ejemplo, trasladar una población a un medio renovado modifica su situación selectiva aun cuando conserve las mismas frecuencias. El resultado depende del momento del traslado. Una población que ya produce suficiente modificación puede reconstruirla; otra puede perder A durante el intervalo necesario para hacerlo. Si el traslado se repite a diferentes frecuencias, las condiciones de establecimiento y los tiempos de recuperación pueden estimarse con más información que la de una sola comparación final.
En los sistemas experimentales debe distinguirse la recuperación ambiental de la recuperación poblacional. El medio puede volver a su valor previo mientras cambia la diversidad de la población, o bien puede restaurarse una frecuencia aparente con genotipos diferentes. Un registro limitado a un indicador global oculta esas posibilidades. Con un diseño que combine composición poblacional y mediciones ambientales puede averiguarse qué parte del estado anterior se recuperó y qué parte fue reemplazada.
Qué se hereda cuando persiste una modificación
Al desaparecer los constructores, el modelo ambiental se reduce a , cuya solución es . Con el parámetro del ejemplo, la intensidad se reduce a la mitad en aproximadamente 2,31 unidades de tiempo. Esta duración adquiere significado biológico al compararla con el intervalo entre generaciones y con la movilidad de los descendientes, puesto que un efecto que dura horas puede conectar muchas generaciones microbianas y ninguna generación de un vertebrado.
La herencia ecológica designa la persistencia de condiciones modificadas que afectan a organismos posteriores, sin que el ambiente se copie como una secuencia de ADN. Un suelo puede conservar cambios químicos, una estructura puede sobrevivir a sus constructores y una comunidad puede mantener una composición alterada. Los receptores tampoco necesitan ser descendientes directos de quienes produjeron el efecto, porque la transmisión depende del acceso al lugar y de los procesos que mantienen o destruyen la modificación.
Esa diferencia cambia las predicciones. Si los descendientes se dispersan ampliamente, la modificación puede beneficiar sobre todo a individuos no emparentados o a otras especies. Cuando permanecen cerca de sus progenitores, aumenta la asociación entre linaje y ambiente construido. En ambos casos puede existir persistencia ecológica con consecuencias distintas para la selección sobre el rasgo constructor, de ahí que el modelo deba representar explícitamente quién produce un efecto y quién lo experimenta.
El ejemplo exponencial supone además una tasa proporcional de pérdida y una única variable ambiental. Un refugio puede deteriorarse abruptamente, un suelo puede recuperarse a velocidades distintas según su estado y una modificación puede activar organismos que continúan produciéndola. Esos casos requieren otras ecuaciones, ya que la forma del decaimiento determina cuánto pasado participa en las condiciones presentes y si ese pasado puede resumirse mediante una sola variable.
Fogarty y Wade (2022) estudiaron con modelos de genética cuantitativa cómo los recursos construidos y persistentes pueden afectar la expresión de rasgos y la respuesta a la selección. Su análisis incorpora efectos de generaciones anteriores y distingue las contribuciones genéticas directas de los efectos mediados por el ambiente. Los resultados, predicciones teóricas que dependen de supuestos sobre relaciones lineales, estructura de grupos y persistencia del recurso, dejan como cuestión empírica la magnitud del cambio de heredabilidad en poblaciones naturales.
En el plano metodológico, el trabajo muestra que la semejanza entre progenitores y descendientes puede reunir vías causales diferentes. Cuando un linaje produce condiciones que sus descendientes vuelven a encontrar, parte de su semejanza puede depender de esa continuidad ambiental, que quedaría oculta si toda semejanza se interpretara como transmisión genética directa. Separar las vías requiere diseños de intercambio de ambientes, trasplantes o manipulaciones de recursos, junto con información sobre parentesco y rasgos.
Stotz (2017) distingue además el ambiente que participa en el desarrollo de un fenotipo del ambiente que selecciona entre variantes, porque los recursos heredados pueden contribuir a producir diferencias antes de que se compare su éxito. Un refugio parental que cambia el desarrollo de una cría y un ambiente que favorece la reproducción de ciertos fenotipos plantean preguntas relacionadas que pueden identificarse por separado si la explicación señala en qué momento actúa la modificación.
Diseñar una prueba que conserve la cadena causal
Imaginemos que se sospecha que un microorganismo produce una sustancia que modifica la competencia en la generación siguiente. El primer paso experimental consiste en comparar medios condicionados con controles preparados bajo condiciones equivalentes y en controlar el consumo de nutrientes. Si un medio condicionado difiere simultáneamente en acidez y en disponibilidad de carbono, sería prematuro atribuir el efecto a una sola variable. Medir ambas indica qué intervenciones adicionales tienen sentido.
Una manipulación informativa consiste en retirar los organismos y conservar el medio, para preguntar si el efecto sobre los receptores requiere la presencia del constructor o puede transmitirse mediante condiciones persistentes. Como la filtración, la esterilización o la sustitución del sustrato pueden introducir cambios propios, se necesitan controles del procedimiento y mediciones del ambiente después de manipularlo. La técnica elegida ha de eliminar al constructor sin destruir su producto, cuya persistencia es precisamente lo que se quiere evaluar.
Después se introducen receptores con diferencias conocidas y se compara su desempeño relativo, que en el modelo anterior se resume en cómo cambia con la diferencia de tasas entre A y B. Medir únicamente la biomasa final sería insuficiente. Dos tipos podrían alcanzar la misma biomasa con tasas iniciales distintas o con mortalidad diferente. La frecuencia, el tamaño total y las mediciones temporales responden a partes distintas de la explicación.
Un diseño factorial puede cruzar el origen del receptor con el origen del ambiente, por ejemplo ensayando en ambos medios a descendientes de poblaciones expuestas a construcción intensa y débil. La interacción entre origen y ambiente puede revelar que las diferencias de desempeño dependen de las condiciones de prueba. Evaluar evolución exige seguir cambios heredables en réplicas poblacionales, ya que muchos individuos de una sola población comparten una única historia evolutiva y equivalen a una sola réplica.
Matthews et al. (2014) señalan la utilidad de medir cuánto dura una modificación después de retirar al constructor y de comparar la selección en ambientes modificados y en controles. El diseño puede extenderse a la evolución experimental. En ese caso, renovar por completo el medio en cada transferencia suprime parte de la herencia ecológica y transferir una fracción del medio conserva otra parte. La comparación de esos tratamientos informa sobre el papel de la persistencia, siempre que se controlen también las diferencias de densidad y de transferencia de organismos.
Un resultado negativo se interpreta en relación con el efecto que el experimento podía detectar. Una modificación puede ser demasiado breve para el intervalo de observación o afectar un rasgo no medido. Invocadas de manera genérica, esas posibilidades harían compatible con la teoría cualquier ausencia de efecto, por lo que deben formularse como hipótesis específicas y contrastarse con mediciones capaces de distinguirlas. Si el medio no cambia, si no cambia el desempeño relativo o si no aparece una respuesta heredable, la cadena propuesta queda interrumpida en puntos diferentes.
Conflictos, costos y escalas de observación
A pesar de que la palabra construcción puede sugerir un resultado ordenado o favorable, el proceso puede producir agotamiento, acumulación tóxica y condiciones que reduzcan la persistencia de la propia población. En un modelo con densidad variable, un rasgo podría aumentar el éxito relativo de sus portadores mientras reduce el tamaño total, pérdida demográfica que queda fuera del resultado observado si el análisis registra solamente frecuencias. La aptitud relativa y la viabilidad del conjunto requieren variables distintas.
También puede existir un conflicto entre escalas espaciales cuando una actividad mejora el ambiente inmediato de un organismo y desplaza costos hacia otros lugares. La dispersión de productos, el flujo del agua o la movilidad de los receptores modifican quién soporta esos costos, por lo que un modelo espacial debería incluir transporte y distancias además de la producción local. Promediar todo el territorio puede borrar las asociaciones entre constructor y beneficio que sostienen la selección sobre un rasgo.
La construcción ambiental puede crear oportunidades para tipos que no producen el efecto. Si un producto facilita el acceso a un recurso compartido, una variante que ahorre el costo de producirlo puede aumentar. La persistencia del ambiente construido dependerá entonces de cómo cambien las frecuencias y de cuánto dure el recurso. Puede haber períodos en que los receptores consumen una herencia que ya no se repone, de modo que el descenso ambiental aparece después, con un retardo cuya duración depende del mecanismo material.
Este razonamiento ayuda a entender por qué la teoría contiene una controversia conceptual. Scott-Phillips et al. (2014) reunieron posiciones favorables y escépticas acerca de si la construcción de nicho exige una reformulación de la teoría evolutiva o se incorpora mediante herramientas existentes. Hay acuerdo amplio sobre la existencia de modificaciones ambientales con consecuencias ecológicas y evolutivas. El desacuerdo, que incluye el estatus explicativo del proceso y el alcance de la innovación teórica, quedaría mal descrito como una disputa entre quienes aceptan y quienes niegan la actividad de los organismos.
El enfoque puede usarse en investigación sin resolver previamente toda esa controversia, siempre que se formule una predicción que dependa de la modificación ambiental y se compare con una alternativa. Una variable nueva tiene valor cuando cambia una explicación contrastable o una predicción relevante. Si dos modelos difieren en la persistencia del medio, puede diseñarse una renovación experimental del sustrato; si difieren en el papel de la dispersión, puede alterarse la conexión entre parcelas.
Trasladar la pregunta a entornos humanos
Los seres humanos modifican ambientes materiales y condiciones sociales que después influyen sobre su conducta. Kendal et al. (2011) examinan estas relaciones desde la construcción de nicho humana y la interacción entre transmisión cultural y herencia ecológica. Una aplicación concreta tiene que indicar qué mecanismo de transmisión estudia, porque la continuidad de una regla institucional, el mantenimiento de un edificio y un cambio de frecuencias genéticas tienen tiempos y procesos distintos, aunque puedan interactuar.
En un ejemplo hipotético de organización asistencial, que reúne la modificación del entorno y la continuidad institucional, un equipo crea una agenda de seguimiento que facilita el contacto después del alta. La existencia de esa agenda cambia las oportunidades de trabajo del equipo siguiente y, si además se transmiten habilidades para utilizarla y se asignan recursos para mantenerla, la práctica puede persistir después de la salida de sus iniciadores.
La formulación puede precisarse preguntando qué parte de la práctica permanece cuando cambian las personas, qué conductas vuelve más fáciles y qué costo exige mantenerla. Una comparación entre servicios debería atender a los recursos previos y a la composición de pacientes, porque ambos factores pueden explicar la adopción y sus resultados. Para identificar el efecto de la modificación ambiental podría compararse una intervención sobre la agenda con otra limitada a la formación, con las diferencias de implementación declaradas de forma explícita.
El paralelismo con la ecuación ambiental, cuyos parámetros tienen aquí valores todavía por determinar, sirve para formular preguntas sobre persistencia y mantenimiento. La intensidad de una práctica institucional rara vez se resume sin pérdida en una variable continua y su deterioro puede depender de decisiones discretas. Corresponde al investigador decidir si esa simplificación conserva lo necesario para el problema o si es preferible representar procedimientos, recursos o vínculos específicos.
En el ejemplo de la agenda, una prueba de persistencia comenzaría después del recambio de quienes la crearon. Se registraría durante cuánto tiempo siguen realizándose los contactos previstos y qué ocurre cuando deja de asignarse tiempo para esa tarea. La agenda puede continuar visible en el sistema mientras las llamadas cesan, diferencia que separa la conservación del soporte de la continuidad de la práctica. Si el equipo siguiente necesita reconstruir el procedimiento desde el comienzo, el seguimiento de esa interrupción indica qué conocimiento quedó sin transmitir y sirve para estudiar el mecanismo de mantenimiento propuesto.
Referencias
Callahan, B. J., Fukami, T., & Fisher, D. S. (2014). Rapid evolution of adaptive niche construction in experimental microbial populations. Evolution, 68(11), 3307–3316. https://doi.org/10.1111/evo.12512
Fogarty, L., & Wade, M. J. (2022). Niche construction in quantitative traits: Heritability and response to selection. Proceedings of the Royal Society B, 289, 20220401. https://doi.org/10.1098/rspb.2022.0401
Kendal, J., Tehrani, J. J., & Odling-Smee, J. (2011). Human niche construction in interdisciplinary focus. Philosophical Transactions of the Royal Society B, 366(1566), 785–792. https://doi.org/10.1098/rstb.2010.0306
Laland, K. N., Matthews, B., & Feldman, M. W. (2016). An introduction to niche construction theory. Evolutionary Ecology, 30, 191–202. https://doi.org/10.1007/s10682-016-9821-z
Laland, K. N., Odling-Smee, F. J., & Feldman, M. W. (1999). Evolutionary consequences of niche construction and their implications for ecology. Proceedings of the National Academy of Sciences, 96(18), 10242–10247. https://doi.org/10.1073/pnas.96.18.10242
Matthews, B., De Meester, L., Jones, C. G., Ibelings, B. W., Bouma, T. J., Nuutinen, V., van de Koppel, J., & Odling-Smee, J. (2014). Under niche construction: An operational bridge between ecology, evolution, and ecosystem science. Ecological Monographs, 84(2), 245–263. https://doi.org/10.1890/13-0953.1
Scott-Phillips, T. C., Laland, K. N., Shuker, D. M., Dickins, T. E., & West, S. A. (2014). The niche construction perspective: A critical appraisal. Evolution, 68, 1231–1243. https://doi.org/10.1111/evo.12332
Stamps, J. A., Yang, L. H., Morales, V. M., & Boundy-Mills, K. L. (2012). Drosophila regulate yeast density and increase yeast community similarity in a natural substrate. PLOS ONE, 7(7), e42238. https://doi.org/10.1371/journal.pone.0042238
Stotz, K. (2017). Why developmental niche construction is not selective niche construction: And why it matters. Interface Focus, 7(5), 20160157. https://doi.org/10.1098/rsfs.2016.0157