Una célula de levadura se divide y produce otra célula. Si ambas permanecen adheridas, sus descendientes pueden formar un racimo. Para ello basta con que la separación posterior a la división haya fallado o se haya modificado, un cambio en apariencia pequeño. El racimo, sin embargo, puede adquirir propiedades que ninguna célula aislada posee. Se hunde a otra velocidad, retiene recursos de manera diferente y se fragmenta bajo tensiones que dependen de su geometría. El problema de la individualidad evolutiva empieza con la pregunta de qué ocurre con esas propiedades cuando el racimo produce nuevos racimos.
El origen de una asociación y la formación de un individuo colectivo son procesos que pueden separarse en el tiempo. Hay asociaciones persistentes cuyos integrantes siguen reproduciéndose por cuenta propia y hay colectivos que, tras atravesar una fase dispersa, vuelven a formarse mediante un ciclo reproducible. Entender su evolución obliga a seguir generaciones completas, porque una fotografía de muchas células juntas dice poco sobre la relación entre antecesores y descendientes.
A lo largo de la historia de la vida han cambiado las unidades que participan en la evolución. Las células eucarióticas contienen componentes de distinto origen evolutivo, los organismos multicelulares reúnen células descendientes de antecesores unicelulares y algunos linajes de insectos presentan una organización colonial con especialización reproductiva. Estos procesos comparten problemas de transmisión y coordinación, aunque difieren en mecanismos y grado de integración. West et al. (2015) proponen analizar por separado la formación de grupos cooperativos y su integración posterior, distinción útil para estudiar trayectorias que se detienen, se revierten o permanecen mucho tiempo en formas intermedias.
Qué se está contando como individuo
En el uso cotidiano, un individuo suele coincidir con un cuerpo delimitado. La biología necesita criterios adicionales. Una colonia tiene un borde observable que puede desplazarse por la inmigración de componentes sin que la colonia se haya reproducido. Una célula cultivada se reproduce, aunque fuera del organismo original solo pueda hacerlo en condiciones artificiales. La unidad anatómica, la fisiológica y la que deja descendencia pueden coincidir en un mismo sistema o responder a preguntas diferentes.
Un individuo darwiniano forma parte de una población en la que existen diferencias heredables que afectan la contribución a generaciones posteriores. Aplicar esta idea a un colectivo requiere identificar sus descendientes y comprobar que alguna propiedad relevante se transmite entre generaciones colectivas. Si una agrupación se deshace y sus miembros se mezclan por completo con una población enorme, la composición de los grupos siguientes puede guardar poca relación con la de sus presuntos progenitores. En cambio, una fragmentación que conserva una organización capaz de reconstruirse puede producir una relación reconocible entre colectivos parentales y descendientes (Libby y Rainey, 2013).
Por eso el término aptitud debe acompañarse de una unidad y un intervalo. En una bacteria puede medirse como la contribución de células descendientes bajo un régimen definido. En una agrupación bacteriana puede interesar la cantidad de agrupaciones viables que produce. Pasar de una medida a la otra exige algo más que cambiar el denominador. El crecimiento de la biomasa del grupo, su supervivencia durante una perturbación y la producción de grupos descendientes son componentes distintos del ciclo.
Tampoco existe un único umbral universal de individualidad. Carmel y Shavit (2020) examinan dimensiones como la conexión entre componentes, su especialización y su capacidad para vivir separadamente. Como un sistema puede avanzar en una de ellas antes que en otra, describir la combinación alcanzada informa más que una etiqueta asignada por una sola característica. Dos tipos celulares, por ejemplo, pueden depender metabólicamente entre sí sin que se haya establecido todavía una transmisión conjunta estable. Una población clonal, por su parte, puede reproducirse como agregado sin presentar una diferenciación celular marcada.
La dependencia tiene además una historia. Una función puede perderse porque otro miembro de la asociación la desempeña y, con el tiempo, la separación se vuelve costosa o inviable. Proyectar sobre los antecesores la integración compleja actual, que puede ser producto de cambios posteriores al origen de la asociación, haría desaparecer el proceso que se pretende explicar. La reconstrucción evolutiva tiene que distinguir, en consecuencia, condiciones iniciales, modificaciones posteriores y rasgos que hoy mantienen el sistema.
Permanecer juntos, reunirse y transmitir la asociación
Una vía hacia la multicelularidad comienza cuando las células hijas permanecen unidas después de dividirse. El grupo se forma entonces por crecimiento de un linaje y sus integrantes comparten el genotipo, salvo por mutaciones y otras fuentes de variación. La otra vía es la agregación. Reúne células que ya vivían separadas, puede responder a condiciones ambientales y producir grupos con más de un linaje. Ambas vías pueden generar beneficios colectivos, aunque distribuyen de manera diferente la variación heredable.
Con formación clonal es probable que una variante que modifica la arquitectura del grupo esté acompañada por copias de sí misma, de modo que, si esa arquitectura facilita la reproducción colectiva, el beneficio puede quedar asociado con la variante. En una agrupación donde se mezclan muchos linajes, en cambio, una célula puede recibir el beneficio de una estructura que otras contribuyeron a producir. La relación entre aporte y descendencia depende de cómo se mezclan las células y de qué componentes fundan los grupos siguientes.
La comparación de Fisher et al. (2013) encontró una asociación entre formación clonal y multicelularidad obligada. Sus análisis tuvieron en cuenta la historia filogenética compartida, para no tratar especies emparentadas como réplicas completamente independientes. El resultado favorece la hipótesis de que la clonalidad facilita la integración, sin que un estudio comparativo pueda convertir esa condición en una causa suficiente. La ecología y las restricciones del desarrollo también influyen. Además, los orígenes independientes disponibles para comparar son mucho menos numerosos que las especies registradas.
Hay un cuello de botella unicelular cuando una generación colectiva comienza a partir de una célula. Sus efectos sobre la cooperación y sobre la deriva genética tienen que estudiarse conjuntamente. Por una parte, la descendencia vuelve a concentrarse en un linaje y se facilita la asociación entre una variante genética y el fenotipo colectivo que produce. Por otra, la población queda expuesta a un muestreo intenso en el que una variante favorable puede desaparecer porque la célula o el grupo que la porta no atraviesa el cuello de botella.
La reproducción por fragmentos plantea otro compromiso. Un fragmento grande puede sobrevivir mejor y disponer de funciones de las que carece una célula aislada, pero transmite al mismo tiempo parte de la heterogeneidad acumulada en el progenitor. El tamaño del propágulo afecta cuántos descendientes se producen, qué recursos recibe cada uno y cuánta variación interna conserva. La solución favorecida depende del ambiente y del modo de competencia, sin que haya razón para esperar que todos los linajes converjan hacia un único tamaño de fundador.
En las asociaciones entre especies se añade la dificultad de que los participantes pueden tener genealogías diferentes. Aunque un hospedador siempre necesite un simbionte, sus descendientes podrían adquirirlo del ambiente sin heredarlo del progenitor. En ese caso la recurrencia de la asociación depende de un proceso de encuentro o de selección de socios. Investigar una transición en individualidad supone seguir también esa reconstrucción, en la que la similitud funcional entre asociaciones sucesivas puede coexistir con un recambio amplio de sus componentes.
Dos escalas de selección en un ejemplo calculable
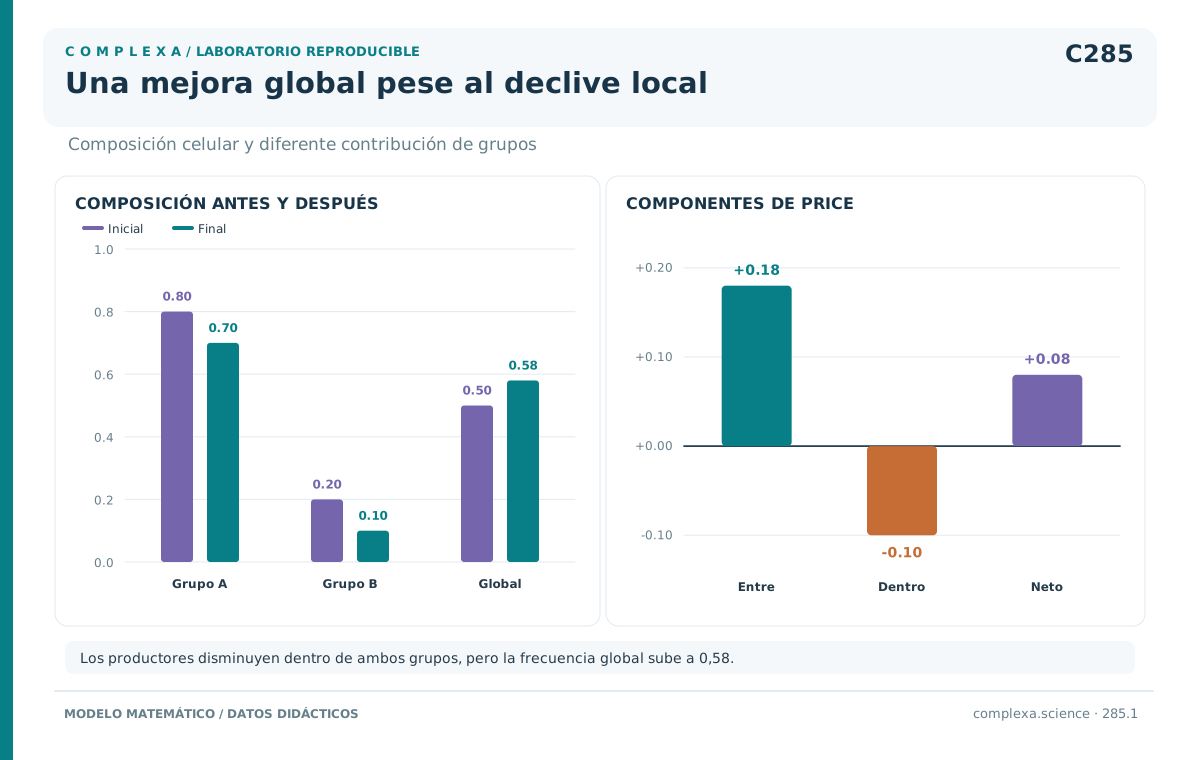
Consideremos un ejemplo didáctico, sin datos empíricos. Hay dos clases de grupos, inicialmente igual de numerosas y con la misma cantidad de células. La fracción de células productoras de una sustancia compartida es 0,8 en la clase A y 0,2 en la clase B. Durante el crecimiento dentro de cada grupo obtienen una ventaja las células que no producen la sustancia, de modo que al final de esa fase las fracciones productoras bajan a 0,7 y 0,1, respectivamente.
Después, cada grupo A contribuye con cuatro unidades de descendencia celular al conjunto que fundará la generación siguiente, mientras que cada grupo B contribuye con una. Como las unidades tienen el mismo tamaño, pueden ponderarse directamente. La fracción global de productores era inicialmente 0,5 y, tras ambos procesos, vale
La fracción de productores ha disminuido dentro de cada clase y, sin embargo, su frecuencia global ha aumentado, porque los grupos inicialmente ricos en productores contribuyeron más a la población descendiente. El cálculo separa así dos procesos que se superponen cuando solo se compara la frecuencia total al principio y al final. Si todos los grupos dejaran la misma cantidad de descendencia, la frecuencia final sería 0,4 y prevalecería la disminución observada dentro de ellos.
Esta partición puede expresarse mediante una identidad de tipo Price. Sean la fracción inicial de productores del grupo , su contribución relativa en unidades comparables y el cambio de composición dentro del grupo. Para grupos inicialmente del mismo tamaño se cumple
Las medias y la covarianza se calculan aquí sobre los grupos parentales con igual peso. En el ejemplo, y la covarianza es 0,45. El primer término vale 0,18. Como ambas composiciones disminuyen en 0,1, el segundo término vale −0,10 y el cambio global es 0,08, consistente con el paso de 0,50 a 0,58. Con tamaños parentales diferentes, mantener esta fórmula con medias sin ponderar produciría otra contabilidad y habría que introducir las ponderaciones correspondientes.
La identidad describe de dónde procede el cambio observado. Para explicar su causa falta especificar cómo alteran los productores la contribución de su grupo. Podrían mejorar el acceso a un recurso, sostener una matriz o modificar la resistencia a una perturbación. Como mecanismos distintos generan la misma covarianza, un experimento causal tendría que manipular la producción o su efecto y comprobar qué componente de la descendencia cambia.
En el ejemplo se contaron la descendencia celular y los grupos de origen, sin exigir grupos hijos que reproduzcan una organización heredable. Una población espacialmente estructurada puede satisfacer esta partición y seguir formada por células con ciclos individuales, de modo que el cálculo es compatible con que no haya transición en individualidad. Estudiar la individualidad colectiva requiere añadir una genealogía de grupos y determinar qué rasgos de estos reaparecen en sus descendientes.
La diferencia se vuelve visible si al final del experimento se mezclan por completo todas las células. La ventaja de proceder de A puede aumentar la frecuencia de productores en la población, aunque el grupo A desaparece como unidad identificable. Si, en cambio, cada grupo se fragmenta y los fragmentos reconstruyen su arquitectura, puede medirse la semejanza entre generaciones colectivas, aun cuando la frecuencia global sea la misma en los dos escenarios.
Lo que permiten observar las levaduras experimentales
Ratcliff et al. (2012) sometieron levaduras a un régimen que favorecía la sedimentación rápida y observaron la evolución de agrupaciones multicelulares. Las células permanecían adheridas después de dividirse y formaban racimos que podían producir descendientes por fragmentación. El experimento hizo observables pasos concretos de los cambios iniciales, sin pretender reproducir la historia completa de la multicelularidad animal, en un sistema donde podían conservarse antecesores, repetirse líneas y medirse las consecuencias de las variantes.
Un racimo tiene una arquitectura. El patrón de conexiones entre sus células condiciona su forma, la distribución de esfuerzos y los puntos de rotura, de manera que modificar una propiedad celular puede cambiar la reproducción del grupo por efectos mecánicos. Para determinar ese efecto interesa observar cuánto tarda en formarse un propágulo viable, qué tamaño tiene y con qué probabilidad reconstruye la organización parental. Un grupo que crece continuamente pero rara vez deja descendencia puede tener una ventaja durante una fase del cultivo y perderla a lo largo del ciclo completo.
Pentz et al. (2023) compararon levaduras con formación clonal de racimos y levaduras que forman flóculos por agregación, sometidas ambas a fases de crecimiento y de selección por sedimentación. Con ese contraste examinaron si la mejora evolutiva se expresaba principalmente durante el crecimiento celular o durante la fase que depende de las propiedades del grupo. Las levaduras clonales mostraron una mejora más marcada en esta última, mientras que las agregativas obtuvieron buena parte de su ventaja durante el crecimiento.
Separar las fases da información que se pierde al medir solo la velocidad de sedimentación. Un flóculo puede hundirse rápido y, aun así, no conservar entre generaciones una asociación estable entre sus propiedades y los genotipos que se beneficiaron. En el estudio, la formación y fusión dinámica de los flóculos dificultó una partición completa de la selección. Las mediciones por fase son indicadores de componentes del rendimiento y su interpretación depende de cómo se forman los grupos en cada ensayo.
El problema puede reconstruirse con un diseño hipotético sencillo. Se guardan muestras del antecesor y del linaje evolucionado, que luego se comparan en un cultivo común durante la fase de crecimiento. Después se iguala la biomasa y se mide la contribución que atraviesa la selección por sedimentación. Por último se observa la producción de nuevos grupos a lo largo de varios ciclos. Si solo se realizara el segundo ensayo, un cambio en la densidad o en la adhesión podría confundirse con una transformación general del ciclo de vida.
La evaluación tiene que incluir además el comportamiento fuera del régimen utilizado para seleccionar. Una variante favorecida por transferencias periódicas en el laboratorio puede perder su ventaja si cambia el intervalo entre transferencias o si la dispersión requiere movilidad, condiciones que delimitan el dominio de la adaptación obtenida. La selección experimental especifica qué propiedades tuvieron consecuencias reproductivas en un ambiente concreto, que después puede modificarse para investigar hasta dónde llega esa adaptación.
Cuando cambia el ciclo de vida
En muchas representaciones del origen de la multicelularidad se dibuja primero un conjunto de células y después un cuerpo diferenciado. Entre ambos dibujos suele faltar la reproducción. Un colectivo temprano necesita una manera de producir otro colectivo, para lo cual puede valerse de procesos que inicialmente tenían una función diferente. La separación de una célula, la rotura de una rama o la alternancia entre formas celulares pueden convertirse así en partes de un ciclo recurrente.
Hammerschmidt et al. (2014) estudiaron ciclos de vida bacterianos en los que tipos celulares con efectos perjudiciales sobre una estructura colectiva podían participar en su reproducción. La interpretación depende del ciclo, en el que una variante que reduce el rendimiento de la fase adherida puede contribuir a la dispersión y a la formación de grupos posteriores. El efecto de un tipo celular sobre un componente de aptitud puede diferir del efecto acumulado sobre una generación completa, por lo que clasificarlo como cooperador o explotador obliga a especificar la interacción y el momento.
De aquí surge un problema de asignación. Un colectivo puede dedicar recursos a mantener su estructura o a producir propágulos. Si produce propágulos demasiado pronto, quizá ninguno disponga de recursos suficientes para establecerse. Si demora indefinidamente la reproducción, la población de colectivos puede extinguirse aunque los grupos existentes crezcan durante mucho tiempo. Una estrategia reproductiva se evalúa, entonces, mediante el número esperado de descendientes viables y el tiempo necesario para producirlos.
En una aproximación didáctica sin solapamiento de generaciones ni limitación de recursos, si cada colectivo deja en promedio colectivos viables después de un tiempo fijo , la tasa exponencial de aumento es . En este modelo, un linaje que deja cuatro descendientes cada dos días y otro que deja dos cada día alcanzan la misma tasa, por día. Cuando los tiempos reproductivos varían o la mortalidad actúa durante el desarrollo, el modelo tiene que incorporar, además del promedio de descendientes, la distribución de esos tiempos y la supervivencia.
La especialización celular puede modificar todo este balance. Células que no forman propágulos pueden contribuir a una estructura que eleva la supervivencia de las que sí se reproducen. Su presencia se transmite porque el desarrollo de la generación siguiente vuelve a producirlas, de modo que la continuidad heredable reside en reglas de desarrollo capaces de reconstruir una distribución de funciones. El número de células especializadas se valora entonces por sus consecuencias sobre el ciclo, sin tratarlo como una puntuación independiente de progreso evolutivo.
La pérdida de autonomía puede aparecer gradualmente. Una célula que antes completaba por sí sola un ciclo puede conservar la capacidad de dividirse y depender, sin embargo, de otras células para llegar a una fase de dispersión viable. Un componente puede proliferar sin ser ya autónomo, de ahí que juzgar la autonomía en el sentido evolutivo investigado exija separar la división celular de la reproducción independiente a lo largo del ciclo pertinente.
El ambiente puede sostener los primeros colectivos
Black et al. (2020) desarrollan la idea de andamiaje ecológico, según la cual ciertas condiciones del entorno pueden suministrar inicialmente parte de la organización necesaria para que los colectivos participen en la evolución. Un ambiente dividido en parches, con oportunidades recurrentes de colonización y extinción, establece unidades de competencia y limita la mezcla. En esas condiciones los conjuntos pueden diferir en su contribución a parches futuros antes de poseer todos los mecanismos internos de integración que observamos en los organismos actuales.
Pensemos en microhábitats colonizados por pocos fundadores. Cada parche persiste durante un período y luego algunos descendientes pasan a nuevos parches. La separación espacial conserva diferencias entre linajes, el régimen de renovación determina cuándo cuenta la reproducción y el mecanismo de dispersión decide qué se transmite. Como el entorno participa de este modo en la estructura de la población evolutiva, cambiar cualquiera de esas condiciones puede alterar la selección sobre propiedades colectivas.
Que una restricción tenga origen externo es compatible con la aparición de adaptaciones a ella. En una población pueden evolucionar mecanismos que hagan más fiable la colonización de nuevos parches o que coordinen la producción de dispersores. La cuestión empírica es cuánto depende la continuidad del colectivo del régimen ambiental y qué partes del ciclo llegan a estabilizarse mediante propiedades propias. Para responderla deben compararse sistemas sometidos a andamiajes diferentes y ensayarse cambios controlados del régimen.
Retirar de golpe todas las condiciones de formación puede ser poco informativo, puesto que también un organismo integrado necesita un ambiente compatible con su ciclo. Una comparación más precisa modifica una sola restricción cada vez, como la intensidad de mezcla, el número de fundadores o la sincronización de la renovación. Si la heredabilidad colectiva desaparece al aumentar ligeramente la mezcla, se ha identificado una dependencia específica; si se mantiene bajo varias condiciones, se obtiene evidencia de un ciclo menos dependiente de ese componente ambiental.
Un experimento de este tipo necesita separar la evolución de la selección inmediata. Para ello se comparan en un ambiente común linajes evolucionados en distintos regímenes, se conservan controles y se observan varias generaciones para evaluar si las diferencias persisten una vez retirados los efectos transitorios del cultivo. Conviene también intercambiar los ambientes. Un mismo linaje puede tener resultados distintos según las condiciones de dispersión y un mismo ambiente puede revelar diferencias que permanecían ocultas durante la fase de crecimiento.
Heredar una organización que debe reconstruirse
La reproducción colectiva plantea una dificultad aparente. El descendiente suele empezar con muchos menos componentes que el progenitor y un propágulo pequeño no conserva el cuerpo entero. Para que exista continuidad, alguna información presente en ese propágulo y en su ambiente tiene que guiar la reaparición de propiedades del sistema adulto. El problema recuerda al desarrollo de un organismo a partir de una célula, aunque los colectivos incipientes pueden tener ciclos mucho menos canalizados y resultados más variables.
Supongamos que dos linajes de racimos difieren en la distribución de ángulos entre células y que la geometría adulta procede de una regla local de crecimiento heredable. Cada propágulo contiene pocas conexiones, pero sus células vuelven a aplicar esa regla durante el desarrollo. La organización se reconstruye por iteración. La cantidad de información relevante que se conserva guarda entonces una relación indirecta con el número de células transmitidas. Un fragmento grande puede perder una regla reguladora mientras un fundador pequeño puede generar de nuevo una estructura característica.
Esto sugiere medir en un ambiente común la semejanza entre progenitores y descendientes, por ejemplo en el tamaño a una edad fija, la probabilidad de fragmentación y la distribución del número de propágulos viables. Parte de la semejanza observada puede deberse a condiciones ambientales compartidas por padres e hijos. Si todos los racimos grandes proceden del mismo recipiente rico en nutrientes, su descendencia podría parecerse porque continúa allí. Transferir los linajes a condiciones comunes ayuda a separar ese efecto de las diferencias persistentes entre ellos.
La heredabilidad estadística depende también de la población y del ambiente usados para estimarla. Cuando todos los linajes son genéticamente iguales, la ausencia de variación entre ellos limita lo que puede inferirse sobre la transmisión de diferencias genéticas. Al comparar ambientes muy distintos, por otra parte, la dispersión fenotípica puede aumentar sin que haya cambiado la fidelidad del desarrollo. En los estudios de colectivos estas cuestiones se suman a la dificultad de identificar progenitores cuando ocurren fusiones o aportes de varios fundadores. Libby y Rainey (2013) sitúan precisamente las rutas de transmisión entre células y grupos en el centro del problema.
Una prueba informativa consiste en reconstruir grupos a partir de componentes intercambiados. Si la propiedad colectiva depende de una variante celular, reemplazar esa variante debería modificar de manera predecible el fenotipo del grupo; si depende de una combinación de variantes, podría perderse al separar los componentes y reaparecer al recombinarlos. Con este diseño se distingue una propiedad codificada en cada linaje de otra que exige conservar una asociación específica. Los efectos de interacción pueden hacer, además, que la suma de los rendimientos de las células aisladas prediga mal el resultado del colectivo.
También puede transmitirse parte del ambiente construido. Un propágulo podría heredar una matriz o una disposición espacial que afecte sus primeras divisiones. Un modelo de ese proceso tendría que representar por separado el estado celular y el material acompañante. El experimento correspondiente compara descendientes con y sin ese material, con los demás factores constantes. Si el efecto desaparece después de una generación, se trata de una persistencia limitada; si el desarrollo vuelve a producirlo y transmitirlo, puede participar en una continuidad colectiva más duradera.
Con estas observaciones puede evaluarse una transición sin exigir una copia exacta del adulto, dado que la reproducción puede generar descendientes variables y conservar aun así suficiente información para que la selección modifique propiedades colectivas. Lo que debe establecerse es qué variación se transmite, con qué fidelidad y cómo afecta a la descendencia posterior. Una organización muy precisa pero incapaz de producir variantes heredables tendría un papel evolutivo diferente del de otra menos regular que sí responde a la selección entre generaciones.
La integración conserva posibilidades de conflicto
La individualidad colectiva es compatible con la persistencia de variación interna. Durante el desarrollo surgen mutaciones y algunos cambios pueden aumentar la proliferación de un componente a costa de la reproducción del colectivo. La estabilidad depende de cómo se generan esas variantes, de las oportunidades que tienen para expandirse y de los mecanismos que limitan sus consecuencias. West et al. (2015) discuten este problema al distinguir grupos cooperativos de asociaciones suficientemente integradas para analizarse como organismos.
El cáncer ilustra una discordancia entre expansión celular y funcionamiento del organismo, aunque usarlo como ejemplo exige conservar la escala de análisis. El crecimiento de un clon somático se estudia dentro de un cuerpo cuya reproducción y supervivencia tienen otra dinámica. La selección entre células coexiste allí con la individualidad del organismo. Muestra que la organización multicelular mantiene mecanismos de regulación cuya eficacia puede ser limitada o alterarse, de modo que una transición evolutiva puede ser estable durante muchas generaciones y seguir expuesta a conflictos internos.
El conflicto también puede desplazarse. Un cuello de botella reduce la heterogeneidad entre las células fundadoras de un mismo grupo, mientras que el desarrollo posterior genera nuevas oportunidades de competencia somática. La segregación de la línea germinal modifica qué variantes contribuyen a la generación siguiente y la arquitectura de un tejido puede restringir la expansión de un linaje. Como cada mecanismo actúa sobre una fase y tiene costos propios, explicar la integración requiere relacionarlos con los conflictos que realmente pueden ocurrir.
Al comparar sistemas es preferible evitar una escala única en la que más células o mayor dependencia equivalgan siempre a más individualidad, porque una asociación pequeña puede transmitir su organización con mucha fidelidad mientras otra de gran tamaño se reconstruye de manera variable. El marco multidimensional de Carmel y Shavit (2020) ayuda a formular esa comparación mediante propiedades observables. Las dimensiones se eligen según la pregunta concreta, sea esta la reproducción colectiva, la especialización, la coordinación fisiológica o la persistencia de fronteras.
La analogía con instituciones humanas merece una precaución adicional. Un hospital coordina componentes y puede conservar prácticas a través del recambio de sus miembros. En él pueden estudiarse la transmisión organizacional o la regulación. Afirmar que es un nuevo individuo darwiniano requeriría especificar una población de unidades comparables, su reproducción y la herencia de rasgos que afecten esa reproducción, elementos que van más allá de la coordinación funcional, por extensa que sea.
Reconocer una transición con observaciones suficientes
Imaginemos que un laboratorio descubre agrupaciones microbianas con dos tipos celulares y gran resistencia a una perturbación. Con ese resultado puede investigarse una ventaja del estado agrupado, aunque para evaluar una transición en individualidad habría que seguir los grupos durante su crecimiento y dispersión, identificar qué estructuras originan descendientes y medir la semejanza entre generaciones. El criterio de descendencia debe fijarse antes de interpretar los resultados, especialmente si los grupos pueden fusionarse.
El paso siguiente sería comparar, bajo condiciones comunes, variantes que difieren en su organización. Una asociación entre un rasgo colectivo y el número de descendientes viables es evidencia de selección sobre ese rasgo cuando la transmisión y las unidades están bien definidas. La manipulación del rasgo puede aclarar si produce el efecto o acompaña a otro cambio. Los ensayos con componentes aislados son útiles para investigar la autonomía siempre que sus condiciones sean ecológicamente interpretables, ya que suministrar artificialmente todo lo que proveía el grupo cambia la pregunta.
El muestreo debe abarcar ciclos completos y varias generaciones. Un agregado puede sobrevivir muy bien a la perturbación inicial y fracasar al recolonizar. Otro puede producir numerosos fragmentos que rara vez establecen linajes duraderos. Medir solo la supervivencia inmediata favorecería al primero y contar fragmentos sin evaluar su viabilidad favorecería al segundo. La descendencia efectiva se determina observando lo que ocurre después, en una escala temporal compatible con el ciclo.
También deben registrarse resultados que distingan explicaciones rivales. Si aumentar la mezcla destruye la semejanza entre grupos parentales e hijos, la conservación de linajes formaba parte del mecanismo. Una adaptación que persiste aun cuando los grupos se reconstruyen con nuevos componentes obliga a investigar qué información se conserva y cómo se transmite. Si el supuesto rasgo colectivo se explica por una diferencia de crecimiento celular, cambiará la unidad a la que puede atribuirse la mejora.
Referencias
Black, A. J., Bourrat, P., y Rainey, P. B. (2020). Ecological scaffolding and the evolution of individuality. Nature Ecology & Evolution, 4, 426–436. https://doi.org/10.1038/s41559-019-1086-9
Carmel, Y., y Shavit, A. (2020). Operationalizing evolutionary transitions in individuality. Proceedings of the Royal Society B, 287, 20192805. https://doi.org/10.1098/rspb.2019.2805
Fisher, R. M., Cornwallis, C. K., y West, S. A. (2013). Group formation, relatedness, and the evolution of multicellularity. Current Biology, 23(12), 1120–1125. https://doi.org/10.1016/j.cub.2013.05.004
Hammerschmidt, K., Rose, C. J., Kerr, B., y Rainey, P. B. (2014). Life cycles, fitness decoupling and the evolution of multicellularity. Nature, 515, 75–79. https://doi.org/10.1038/nature13884
Libby, E., y Rainey, P. B. (2013). A conceptual framework for the evolutionary origins of multicellularity. Physical Biology, 10(3), 035001. https://doi.org/10.1088/1478-3975/10/3/035001
Pentz, J. T., MacGillivray, K. A., DuBose, J. G., Conlin, P. L., Reinhardt, E. M., Libby, E., y Ratcliff, W. C. (2023). Evolutionary consequences of nascent multicellular life cycles. eLife, 12, e84336. https://doi.org/10.7554/eLife.84336
Ratcliff, W. C., Denison, R. F., Borrello, M. E., y Travisano, M. (2012). Experimental evolution of multicellularity. Proceedings of the National Academy of Sciences, 109(5), 1595–1600. https://doi.org/10.1073/pnas.1115323109
West, S. A., Fisher, R. M., Gardner, A., y Kiers, E. T. (2015). Major evolutionary transitions in individuality. Proceedings of the National Academy of Sciences, 112(33), 10112–10119. https://doi.org/10.1073/pnas.1421402112