Una variante puede expandirse gracias a un recurso que las demás utilizan poco y, a medida que se vuelve abundante, consumir ese recurso hasta perder parte de su ventaja. Su expansión modifica así las condiciones que la hicieron posible. En un registro temporal se observará entonces un cambio de dirección de la selección, aunque ninguna mutación adicional haya alterado a los organismos.
El paisaje fijo asigna una aptitud a cada genotipo bajo condiciones constantes. Si la población transforma esas condiciones, o si el ambiente cambia por causas externas o una segunda especie responde a la expansión de la primera, hace falta representar cómo cambian los valores durante la evolución. Cada mecanismo mueve la superficie por una razón distinta. Identificar cuál opera permite predecir qué ocurrirá al cambiar las frecuencias, interrumpir una interacción o modificar la velocidad de una perturbación.
Qué información falta cuando la aptitud se escribe como una constante
Una representación general es , donde identifica un genotipo, reúne las frecuencias de los tipos presentes y describe condiciones ambientales relevantes. El tiempo explícito recoge cambios que todavía no se han representado mediante variables de estado, por lo que, si la temperatura o la disponibilidad de recursos están medidas, suele ser más informativo incorporarlas a que atribuirlo todo a una función del calendario.
Hay dependencia de frecuencia cuando el desempeño de un tipo cambia según la composición de la población, algo que puede surgir de la competencia por recursos, la producción de sustancias compartidas o las interacciones con enemigos. La dependencia de densidad es, en cambio, el efecto del número de individuos por unidad de espacio. Ambas pueden coexistir. Dos poblaciones con la misma proporción de variantes y densidades diferentes pueden experimentar interacciones de intensidad distinta.
En términos experimentales, la ventaja medida cuando una variante es el uno por ciento de la población puede diferir de la que tiene cuando llega a la mitad. Un valor obtenido contra una cepa de referencia sitúa a cada variante frente a esa cepa, aunque puede dejar sin ordenar parte de las competiciones entre pares. Si las interacciones son intransitivas, A puede superar a B, B a C y C a A, tres relaciones que ninguna lista única de alturas reproduce a la vez.
La definición pertinente de independencia de frecuencia depende del proceso que se intenta describir. Metz y Geritz (2016) examinaron cómo precisarla en modelos ecológicos con historias de vida más complejas que las generaciones discretas, a partir de relaciones de invasión que indican qué fenotipo puede aumentar cuando es raro en el entorno establecido por otro. Con esa formulación se distingue una clasificación competitiva consistente de los sistemas con coexistencia protegida, efectos de prioridad o relaciones cíclicas.
El efecto de una mutación puede depender también del fondo genético del mismo organismo. Esa epistasis compara combinaciones internas y debe distinguirse de la dependencia de frecuencia, que compara composiciones poblacionales. Una mutación puede carecer de interacción genética detectable en un ensayo y, aun así, tener efectos diferentes cuando cambia la abundancia de productores de un recurso. A la inversa, puede haber epistasis en un ambiente donde las aptitudes son aproximadamente independientes de la frecuencia.
Las mediciones deberían separar esos niveles. Para estudiar la epistasis se construyen combinaciones genéticas que se comparan en condiciones comunes. La dependencia de frecuencia se estudia alterando las proporciones iniciales de los competidores. Si ambas cosas se modifican a la vez, el cambio observado admite explicaciones que el diseño no distingue. Llamar dinámico al paisaje es solo un comienzo descriptivo, al que debe seguir la identificación de la variable que transforma sus valores.
Una población que elimina su propia ventaja
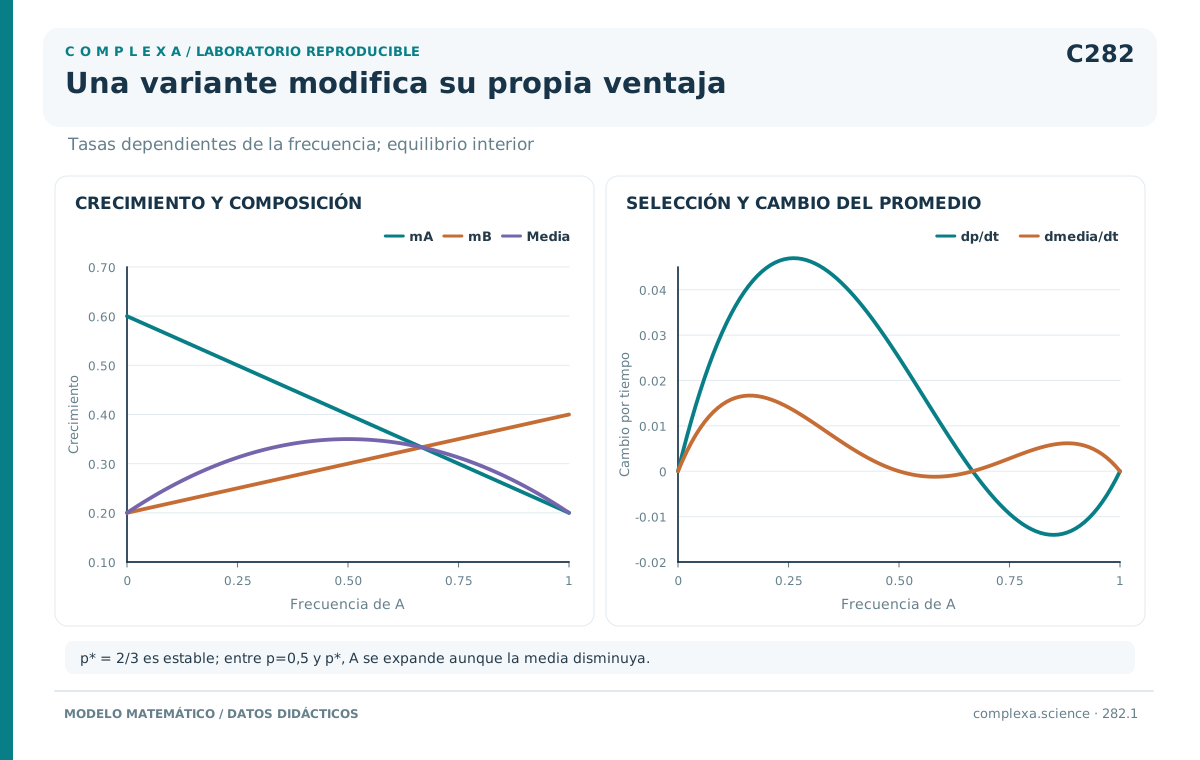
En un ejemplo matemático didáctico con dos tipos, A y B, sea la frecuencia de A. Las tasas de crecimiento per cápita de ambos, expresadas en una unidad de tiempo arbitraria, son
La tasa de A disminuye a medida que aumenta su frecuencia, mientras que la de B mejora con el mismo cambio de composición. Podría interpretarse que A consume un recurso del que depende y genera condiciones favorables para B, un mecanismo que las ecuaciones recogen solo como hipótesis simplificada.
Si ambos tipos comparten el mismo espacio y no hay mutación ni migración, sus frecuencias obedecen
La ecuación se obtiene a partir de las abundancias, usando y . El factor expresa que las proporciones solo cambian cuando ambos tipos están presentes, de modo que una variante ausente no reaparece en este modelo.
Además de los extremos cero y uno, hay un equilibrio en . Por debajo de ese valor la tasa de A supera a la de B y su frecuencia aumenta. Por encima ocurre lo contrario. Si , la diferencia de tasas es 0,34 y . Con la diferencia es −0,14 y , así que el mismo tipo pasa de la ventaja a la desventaja al volverse común.
La coexistencia interna es localmente estable. En la derivada del lado derecho vale , aproximadamente, por lo que cerca del equilibrio una pequeña desviación disminuye de manera exponencial con esa tasa y el tiempo característico de recuperación es cercano a 7,5 unidades. La estimación vale para perturbaciones pequeñas, porque lejos del equilibrio el factor modifica la rapidez del retorno.
La coexistencia exige algo más preciso que una ventaja ocasional del tipo raro. En este ejemplo el equilibrio se sostiene gracias a la invasión mutua (A invade cuando B domina y B invade cuando A domina). En otros modelos la ventaja de rareza puede desaparecer a una densidad distinta o depender de un recurso que no se mantiene. Demostrar una coexistencia estable requiere, por ello, competiciones que partan de varias proporciones iniciales.
La frecuencia de equilibrio describe la composición y deja sin determinar el tamaño de la población. Restar una constante común a ambas tasas conserva la ecuación de pero cambia el crecimiento total. Si se resta 0,5, las tasas de los dos tipos en la coexistencia pasan de un tercio a aproximadamente −0,167 y la composición seguiría acercándose al mismo equilibrio mientras la población disminuye. Para estudiar la persistencia hace falta conservar las abundancias y sus condiciones demográficas.
La media puede bajar mientras actúa la selección
En el ejemplo anterior, la tasa media es
Esta función alcanza su máximo en , donde vale 0,35, pero la selección sigue aumentando la frecuencia de A hasta , donde la tasa media es un tercio. Entre esos dos puntos, A se expande porque supera a B mientras la tasa media de la población disminuye. Su expansión modifica las tasas de ambos tipos y desplaza el balance colectivo.
El resultado puede comprobarse sin integrar la ecuación. Para , la diferencia de tasas vale 0,04 y , la pendiente de la media es y, por la regla de la cadena, . El signo negativo surge en una dinámica determinista con selección explícita, sin que haga falta atribuir el cambio a un error de muestreo.
En un sistema de varios tipos con dinámica replicadora, , se puede derivar la identidad
El primer término expresa el cambio de composición evaluado con las tasas del instante. El segundo recoge cómo cambian esas tasas a lo largo de la trayectoria y, cuando dependen de las frecuencias o del ambiente, puede ser negativo y superar al primero. La derivada de es total e incluye la modificación de , el cambio de y cualquier dependencia temporal explícita.
Esta separación precisa en qué sentido puede decirse que la selección eleva la aptitud. La sustitución relativa favorece a los tipos mejor situados bajo las condiciones presentes, que pueden deteriorarse a la vez. Mustonen y Lässig (2010) estudiaron el flujo de aptitud en procesos evolutivos estocásticos y fuera del equilibrio, un marco que formaliza aspectos de la adaptación que una comparación simple entre la aptitud media inicial y la final puede ocultar. Su teorema descansa en hipótesis propias y tiene un contenido distinto del de la identidad determinista anterior.
La medición empírica admite una separación semejante. Las poblaciones inicial y final pueden compararse primero en un ambiente común para estimar el cambio heredable bajo condiciones controladas y medirse después en sus ambientes históricos. Si una población mejora en el ensayo común pero empeora en su entorno contemporáneo, el deterioro ambiental puede estar compensando su respuesta adaptativa. Los dos experimentos responden a preguntas diferentes y ayudan, juntos, a evitar una interpretación basada únicamente en el resultado final.
Cambios externos y rutas que se abren en otro momento
Un paisaje también cambia por causas ajenas a la actividad de los organismos, como la alternancia de estaciones, una modificación de temperatura o el ingreso de un recurso, capaces de invertir el orden de los genotipos. Mustonen y Lässig (2009) utilizaron la expresión fitness seascapes para abordar la selección y la adaptación en condiciones variables. Su metáfora marítima recuerda que también se mueve la referencia contra la cual se evalúa el cambio.
Un ejemplo de dos posiciones muestra cómo esa movilidad altera los caminos. La tabla asigna aptitudes a tres genotipos, 00, 10 y 11, en los ambientes E1 y E2.
| Genotipo | Ambiente E1 | Ambiente E2 |
|---|---|---|
| 00 | 1,00 | 1,00 |
| 10 | 1,20 | 0,90 |
| 11 | 0,80 | 1,30 |
En E1 se favorece el paso de 00 a 10, pero pasar después a 11 reduce la aptitud. En E2 sucede lo inverso, con un primer paso desfavorable de 00 a 10 y un segundo paso en que 11 supera a 10. Si el ambiente comienza en E1 y cambia después a E2, ambos pasos pueden ser favorables en el momento en que ocurren, con lo cual la ruta depende del orden temporal de las condiciones.
El ejemplo deja abiertas cuestiones que una tabla estática no resuelve. Puede que el ambiente cambie antes de que la variante intermedia sea suficientemente abundante o que la población la pierda por deriva durante una fase desfavorable. Si E1 regresa, 11 vuelve a tener menor aptitud en esa comparación. Para predecir el resultado se necesitan el calendario de alternancia y una dinámica de abundancias o frecuencias, además de las dos columnas de la tabla.
De Vos et al. (2013) estudiaron cómo distintas condiciones ambientales modificaban las restricciones genéticas en la evolución de una función regulatoria. Reconstruyeron combinaciones de mutaciones, compararon sus efectos bajo condiciones diferentes y mostraron que una restricción inferida en un ambiente puede cambiar al modificarse el contexto de expresión. El ejemplo anterior ilustra la lógica temporal sin reproducir sus mediciones, que son específicas de ese sistema.
Sustituir un ambiente variable por su promedio también puede inducir a error. Si un genotipo se multiplica por 0,5 en una fase y por 2 en la siguiente, su factor acumulado en el ciclo es uno. Otro que se multiplica por 1,1 en cada fase alcanza 1,21. El primero tiene una media aritmética de factores igual a 1,25, superior a 1,1, pero crece menos a lo largo de un ciclo cuya acumulación temporal depende, bajo esas condiciones, del producto de factores o de la suma de sus logaritmos.
El cálculo supone que ambos genotipos experimentan el mismo calendario, sin interacciones que cambien sus factores ni restricciones demográficas adicionales. Con esos supuestos, el argumento explica por qué una buena respuesta en condiciones favorables puede quedar anulada por pérdidas en una fase adversa. Cuando el crecimiento depende de frecuencia o densidad, los factores ya no se fijan por anticipado y es necesario resolver la trayectoria conjunta.
La velocidad del cambio determina el retraso
Supongamos que el ambiente favorece un valor de rasgo y que la media poblacional responde aproximadamente según
La ecuación es una aproximación lineal de seguimiento en la que el parámetro resume la capacidad de respuesta dentro del régimen considerado. No se trata de una constante universal de adaptación, ya que en un modelo genético más detallado dependería, entre otros factores, de la variación disponible y de cómo se relaciona la selección con el rasgo.
Si el óptimo se desplaza a velocidad constante según y la población empieza ajustada en cero, el retraso satisface
El retraso tiende a . Una población puede, por tanto, cambiar continuamente en la dirección favorecida y conservar, aun así, un desfase persistente. En una ilustración numérica del modelo, con unidades de rasgo por día y por día, el desfase límite es de 0,05 unidades y al décimo día alcanza aproximadamente 0,0432.
Si la tasa de crecimiento disminuye con el cuadrado del desfase, una velocidad ambiental mayor puede generar un coste demográfico sostenido. La posibilidad de persistencia dependerá entonces del crecimiento basal y de la variación disponible, además del seguimiento del rasgo. El propio modelo lineal puede dejar de valer cuando desaparecen variantes, cambian las covarianzas genéticas o la población cae a tamaños en los que domina el azar.
Con un óptimo periódico el resultado toma otra forma. Una respuesta lenta reduce la amplitud del seguimiento y aumenta el retraso de fase, de ahí que unas oscilaciones desfasadas puedan ser la respuesta a una señal externa tanto como un ciclo autónomo del sistema. Chevin et al. (2022) mostraron que la dependencia de frecuencia y las fluctuaciones ambientales pueden interactuar de maneras distintas, desde amortiguar o desplazar respuestas hasta sostener fluctuaciones mediante ruido y, bajo regímenes particulares, producir dinámicas más complejas.
Las escalas temporales orientan la elección de una aproximación. Si el ambiente cambia mucho más lentamente que la composición, puede estudiarse una secuencia de equilibrios casi estáticos. Si cambia muy rápido, algunas formulaciones promedian sus efectos, aunque el promedio adecuado debe derivarse de la dinámica. Cuando ambas velocidades son semejantes, el estado actual depende con fuerza de la historia reciente y una medición limitada al ambiente presente pierde información necesaria para interpretar la selección observada.
La aproximación distingue también un desplazamiento continuo de un cambio súbito. Si el óptimo salta de cero a un valor fijo , la misma ecuación produce y el desfase decae hasta cero, porque el objetivo dejó de moverse. En un registro corto, una trayectoria lenta después de un salto y un retraso permanente ante un desplazamiento sostenido pueden parecer semejantes, aunque impliquen predicciones distintas a largo plazo.
Si, tras un cambio de óptimo conocido, el desfase se reduce a la mitad en cinco días, el modelo da , aproximadamente 0,139 por día. Con ese valor, al décimo día quedaría un cuarto del desfase inicial. Observar una reducción mucho menor obligaría a revisar la aproximación ante la posibilidad de que el óptimo siguiera cambiando, la variación disponible disminuyera o una variable omitida introdujera memoria. La predicción es contrastable precisamente porque el modelo conserva un parámetro de respuesta definido.
Estimar ese parámetro exige conocer o medir el cambio ambiental, ya que si solo se observan los valores de , muchas combinaciones de y pueden producir trayectorias similares. Una respuesta en apariencia rápida podría reflejar una perturbación pequeña; una en apariencia lenta, un óptimo que se aleja durante el registro. La estimación conjunta necesita información adicional o restricciones explícitas sobre el ambiente.
El horizonte de evaluación modifica lo que se considera éxito de seguimiento. Una población puede mejorar su ajuste durante la fase observada y seguir acumulando un desfase que comprometa su persistencia más adelante. A la inversa, una recuperación parcial temprana puede preceder a una convergencia completa si el ambiente se estabiliza. Por eso, en un estudio prospectivo conviene declarar qué trayectoria ambiental se supone después de la última observación y comparar escenarios cuando esa trayectoria se desconoce.
Retroalimentación ecológica y aptitud de invasión
Las condiciones ambientales pueden tener ecuaciones propias. Para una población que consume un recurso alimentado desde un suministro de concentración , una formulación didáctica es
La abundancia modifica el recurso y el recurso modifica, a su vez, el crecimiento de las abundancias. El parámetro controla el recambio del recurso, expresa el consumo por individuo, convierte consumo en reproducción y recoge las pérdidas. Las unidades deben elegirse de modo que cada término de la primera ecuación mida concentración por tiempo y cada término dentro del paréntesis de la segunda sea una tasa.
Una variante puede crecer al principio porque dispone de mucho recurso y desacelerarse después al agotarlo, sin que haga falta modificar su genotipo. Si un tipo altera el recurso de forma que favorece a otro, aparece una retroalimentación sobre la composición. Con recursos distintos y compromisos en su utilización puede haber coexistencia. Como una diversidad sostenida exige algo más que incluir varias variables ambientales, la existencia y la estabilidad del equilibrio deben comprobarse en las ecuaciones.
Con un solo recurso, la comparación puede hacerse de forma exacta en un régimen sencillo. Si un residente persistente alcanza un equilibrio con abundancia positiva, su crecimiento per cápita se anula y la concentración residual satisface . Un mutante raro encuentra al principio esa concentración y crece a tasa , de modo que podrá aumentar si la concentración mínima que necesita, , es menor que la establecida por el residente.
Bajo las hipótesis del ejemplo, este resultado construye una jerarquía competitiva en la que el tipo capaz de mantener crecimiento con menos recurso puede invadir al que deja una concentración residual mayor. Hay modificación ambiental por consumo, pero todavía puede resumirse mediante un orden consistente. Si dos tipos requieren exactamente la misma concentración residual, la igualdad por sí sola no produce un equilibrio de coexistencia resistente a todas las perturbaciones. También deben verificarse la forma del suministro y la viabilidad demográfica.
El cálculo muestra por qué conviene derivar la retroalimentación antes de asignarle consecuencias generales. Una variable ambiental añadida describe el mecanismo de selección sin obligar al sistema a generar ciclos o ramificación, resultados para los que pueden hacer falta varios recursos, diferencias en el uso de esos recursos o interacciones cuya intensidad cambie con la composición. Esas condiciones adicionales tienen que aparecer en las ecuaciones y en las mediciones que las sostienen.
El mismo cálculo sirve para diseñar una prueba en la que se mida la concentración que cada tipo mantiene por separado, se introduzca el otro a baja frecuencia y se compare el signo del crecimiento inicial con la predicción. Si la jerarquía observada contradice sistemáticamente las concentraciones residuales, el modelo de un solo recurso omite un proceso relevante. Podrían intervenir sustancias inhibidoras, otro recurso limitante o un estado ambiental que no había alcanzado el equilibrio, posibilidades que la propia discrepancia ayuda a acotar.
Amado y Bank (2024) construyeron, mediante competencia por recursos, paisajes dinámicos que conectan genotipo, rasgos y aptitud. Sus simulaciones mostraron condiciones de coexistencia prolongada que diferían de las obtenidas en la comparación sin esas interacciones ecológicas. El estudio examina cómo una arquitectura genética puede producir resultados distintos cuando la aptitud cambia con las abundancias, dentro de una familia de modelos cuya extensión a la diversidad de las poblaciones naturales requiere estimaciones propias.
La dinámica adaptativa utiliza la aptitud de invasión para estudiar modificaciones pequeñas de un rasgo residente. Si una población con rasgo establece un ambiente , se evalúa en él la tasa de crecimiento de un mutante raro con rasgo ,
El mutante es lo bastante raro para que, al comienzo, su contribución al ambiente sea despreciable. Un valor positivo indica que puede aumentar bajo esas condiciones. El signo basta para una comparación de invasibilidad, pero lo que ocurre después, cuando el mutante deja de ser raro y modifica el entorno, requiere seguir la dinámica completa.
Cuando se usa un ambiente de equilibrio del residente, la formulación supone una separación de tiempos. Si la ecología permanece oscilando, la invasión puede requerir una tasa de crecimiento a largo plazo sobre ese régimen. Si las mutaciones llegan con rapidez, varias variantes pueden coexistir antes de que el residente alcance su estado ecológico de referencia, con lo cual la reducción a sustituciones sucesivas debe justificarse o reemplazarse por un modelo poblacional más detallado.
La condición de invasión evalúa un crecimiento inicial esperado. En una población finita, un mutante con tasa positiva puede perderse por azar antes de producir suficiente descendencia, con una probabilidad de establecimiento que depende del proceso reproductivo y de la intensidad de la ventaja. Si se introducen muchos individuos a la vez, el ensayo puede dejar de representar la condición de rareza utilizada en el cálculo, porque los recién llegados ya modifican el recurso.
Por esa razón, medir la invasión y medir el reemplazo completo requieren seguimientos distintos. Un tipo puede aumentar al comienzo y estabilizarse cuando alcanza una abundancia suficiente para cambiar el entorno; otro puede establecerse y desaparecer después de una respuesta retardada del residente. Como el signo del cambio durante el primer intervalo describe solo ese intervalo, una predicción sobre el desenlace exige continuar la observación y contrastar la dinámica ambiental postulada.
Convergencia, coexistencia y ramificación
Un rasgo singular aparece cuando el gradiente de selección del mutante se anula en el residente, es decir, cuando
Hay dos preguntas diferentes. La primera es si la evolución desde rasgos cercanos se dirige hacia ese punto, para lo cual, en una aproximación unidimensional con factor de respuesta positivo, basta localmente con que . La segunda es si, una vez allí, un mutante cercano puede invadir. Bajo regularidad suficiente, una curvatura negativa respecto de favorece la estabilidad local frente a esas invasiones.
Ambas propiedades pueden separarse porque el residente transforma el ambiente y, al variar , cambia el contexto en que se evalúa al mutante. Un mismo punto puede atraer sustituciones desde lejos y, cuando la población se aproxima, favorecer variantes divergentes. Geritz et al. (1998) desarrollaron una clasificación de estrategias singulares que incluye la ramificación evolutiva. La formación de dos linajes persistentes exige, además de un gradiente nulo, condiciones sobre coexistencia e invasión.
Un ejemplo local aclara las derivadas. La función didáctica , con , cumple y tiene gradiente de selección , de modo que la evolución de un residente monomorfo se dirige hacia cero. Sin embargo, en cualquier mutante cercano distinto de cero tiene . El punto atrae el movimiento de los residentes y es, a la vez, invadible.
Para los rasgos simétricos e , la aptitud de invasión del segundo vale y es positiva, como lo es también la invasión recíproca. El ejemplo es, por tanto, localmente compatible con la invasión mutua. Saber si las ramas se separan indefinidamente exige salir de esta función y especificar la ecología completa de la población dimórfica, en particular cómo contribuyen ambos residentes conjuntamente al ambiente.
La posibilidad de invasión mutua explica también por qué optimizar una aptitud individual fija puede fallar como descripción de la evolución. Una variante favorable cuando es rara puede estabilizarse en una frecuencia intermedia y dejar como resultado persistente una distribución de tipos, la propiedad que el modelo intenta explicar y que se pierde si se busca un único genotipo vencedor.
Ciclos y predicciones que requieren una historia
Con tres tipos aparecen relaciones que un orden único no puede expresar. Un juego didáctico de interacciones cíclicas puede construirse con la matriz
Cada tipo obtiene una ventaja relativa frente a uno de los otros y una desventaja frente al restante. Las tasas pueden ser negativas. Si se desea añadir una tasa basal común, las frecuencias mantienen la misma dinámica replicadora. Como la matriz es antisimétrica, y la tasa relativa media se mantiene en cero para cualquier composición.
En el modelo continuo ideal, las trayectorias interiores distintas del equilibrio pueden recorrer órbitas cerradas sin que ello implique un ciclo atractor que recupere la misma órbita después de cualquier perturbación. Cambiar los pagos, introducir mortalidad diferencial o representar poblaciones finitas puede modificar el comportamiento. En poblaciones pequeñas, la pérdida de un tipo rompe el circuito de interacciones con una extinción discreta que la aproximación determinista ya no describe.
La observación de ciclos plantea un problema de identificación. Una oscilación puede deberse a interacciones internas, a un forzamiento ambiental periódico o a ruido que excita un sistema con retorno amortiguado, mecanismos que pueden confundirse si solo se comparan las formas de las series temporales. Las perturbaciones controladas, la medición del ambiente y las competiciones en diferentes composiciones ayudan a distinguirlos.
Un diseño experimental sobre aptitud variable podría mantener constantes las densidades totales mientras altera las frecuencias iniciales, para después repetir las competiciones a otras densidades, medir los recursos y contrastar el efecto de condiciones ambientales relevantes. El orden de los ensayos y las réplicas deberían organizarse para separar los cambios de composición de la variación entre lotes. Para evaluar la predicción, algunas combinaciones de frecuencia y ambiente deben quedar fuera del ajuste inicial.
Conviene observar también cuándo se mide la ventaja, porque dos variantes pueden cambiar de orden entre la fase inicial de crecimiento y el final del ciclo. Un resultado integrado sobre todo el ciclo resume esa secuencia sin identificar en qué etapa surgió la diferencia. Si el calendario experimental cambia, la aptitud estimada anteriormente puede dejar de anticipar el resultado, dado que la duración del ensayo forma parte del modelo de observación.
Estas ideas se trasladan a sistemas de decisiones cuando el rendimiento de una práctica depende de cuántos actores la adoptan. Un procedimiento que funciona con pocos usuarios puede saturar un recurso al generalizarse; una coordinación inicialmente costosa puede mejorar cuando aumenta la participación. Ambas son hipótesis sobre retroalimentación que requieren mediciones propias.
La predicción relevante debe especificar la composición y las condiciones en que fue estimada, porque en una población que transforma su entorno repetir una decisión puede cambiar la situación de la repetición siguiente. Un análisis que conserve esas variables puede comprobar si la pérdida de rendimiento proviene de un ambiente externo, de una respuesta de otros actores o de las consecuencias acumuladas de la propia expansión.
Referencias
Amado, A., y Bank, C. (2024). Ecological tradeoffs lead to complex evolutionary trajectories and sustained diversity on dynamic fitness landscapes. Journal of Physics A: Mathematical and Theoretical, 57(19), 195601. https://doi.org/10.1088/1751-8121/ad30d0
Chevin, L.-M., Gompert, Z., y Nosil, P. (2022). Frequency dependence and the predictability of evolution in a changing environment. Evolution Letters, 6(1), 21–33. https://doi.org/10.1002/evl3.266
de Vos, M. G. J., Poelwijk, F. J., Battich, N., Ndika, J., y Tans, S. J. (2013). Environmental dependence of genetic constraint. PLOS Genetics, 9(6), e1003580. https://doi.org/10.1371/journal.pgen.1003580
Geritz, S. A. H., Kisdi, É., Meszéna, G., y Metz, J. A. J. (1998). Evolutionarily singular strategies and the adaptive growth and branching of the evolutionary tree. Evolutionary Ecology, 12(1), 35–57. https://doi.org/10.1023/A:1006554906681
Metz, J. A. J., y Geritz, S. A. H. (2016). Frequency dependence 3.0: An attempt at codifying the evolutionary ecology perspective. Journal of Mathematical Biology, 72(4), 1011–1037. https://doi.org/10.1007/s00285-015-0956-2
Mustonen, V., y Lässig, M. (2009). From fitness landscapes to seascapes: Non-equilibrium dynamics of selection and adaptation. Trends in Genetics, 25(3), 111–119. https://doi.org/10.1016/j.tig.2009.01.002
Mustonen, V., y Lässig, M. (2010). Fitness flux and ubiquity of adaptive evolution. Proceedings of the National Academy of Sciences, 107(9), 4248–4253. https://doi.org/10.1073/pnas.0907953107