Módulo 27. Evolución, variación y restricciones
269.1. La utilidad presente no identifica una historia
Una característica puede resultar útil sin haberse originado por selección para esa utilidad. También puede persistir como consecuencia de otra característica, de restricciones del desarrollo o de procesos poblacionales que no favorecen directamente su efecto actual.
La distinción entre función presente y origen histórico es central para evaluar explicaciones evolutivas. Mostrar que un rasgo mejora cierto resultado hoy responde a una pregunta diferente de mostrar por qué aumentó su frecuencia en el pasado.
Una explicación adaptativa propone que variantes heredables que difieren en un efecto contribuyeron diferencialmente a la reproducción y que esa diferencia ayudó a moldear el rasgo. La afirmación requiere identificar el rasgo, el efecto, el contexto y el proceso histórico pertinente.
Un subproducto, en cambio, puede aparecer porque está conectado causalmente con otra característica favorecida. Su existencia no exige que su propio efecto haya sido la razón de su propagación. Eso no significa que carezca de consecuencias o que nunca pueda adquirir una función posterior.
Una restricción delimita qué variantes pueden producirse, mantenerse o combinarse. Puede proceder de desarrollo, física, arquitectura genética o historia. Las restricciones determinan parte del conjunto de opciones sobre el que actúa la selección, sin sustituirla necesariamente.
Gould y Lewontin criticaron la tendencia a aceptar relatos adaptativos plausibles sin compararlos suficientemente con alternativas [1]. La lección metodológica que usaremos es la necesidad de formular hipótesis competidoras y buscar observaciones que las distingan. No implica negar la selección natural ni asumir que todo rasgo es un subproducto.
Las categorías tampoco deben convertirse en etiquetas excluyentes para toda la historia de una característica. Un rasgo puede surgir por una razón, modificarse por otra y desempeñar funciones diferentes en ambientes sucesivos.
Construiremos un ejemplo de pigmentación ligada a una función metabólica para mostrar cómo pueden confundirse correlación y selección directa. Después examinaremos restricciones, reutilización funcional, comparación entre especies y evaluación de evidencia.
El objetivo es mejorar la calidad de las preguntas. Además de preguntar para qué sirve una característica, preguntaremos qué procesos podrían producirla, qué predice cada explicación y qué datos cambiarían nuestra confianza en ellas.
269.2. Cuatro preguntas que conviene mantener separadas
La tradición que procede de Tinbergen distingue preguntas sobre mecanismos, desarrollo individual, consecuencias funcionales e historia evolutiva [2]. Una respuesta en uno de esos planos puede ser correcta y seguir dejando abiertos los demás.
Preguntar cómo se produce una respuesta dirige la atención hacia componentes y relaciones causales inmediatas. Preguntar cómo se desarrolla examina cambios durante la vida y condiciones que organizan el sistema. Preguntar por consecuencias reproductivas evalúa efectos en un contexto.
La pregunta histórica reconstruye transformaciones entre antepasados y descendientes. Puede incluir cuándo apareció una característica, qué cambios la precedieron y cómo se modificó su función. No se resuelve únicamente identificando un mecanismo actual.
Imaginemos una respuesta de retirada ante un estímulo. Identificar circuitos que la producen no demuestra por qué esos circuitos evolucionaron. Mostrar que la retirada evita daño en un ensayo tampoco establece que todas sus manifestaciones actuales sean beneficiosas.
A la inversa, una hipótesis sobre historia adaptativa no explica necesariamente el mecanismo. Dos sistemas pueden resolver problemas similares mediante organizaciones diferentes.
Esta separación ayuda a evaluar afirmaciones amplias. Decir que una conducta existe porque activa cierta vía responde parcialmente al mecanismo. Decir que existe porque ayuda a sobrevivir propone una consecuencia y posiblemente una historia. Ninguna frase sustituye automáticamente a la otra.
Las preguntas también generan diseños distintos. Una intervención fisiológica puede estudiar mecanismo; un seguimiento del desarrollo puede estudiar cambios individuales; una comparación reproductiva puede evaluar consecuencias; una reconstrucción filogenética puede informar sobre historia.
La integración requiere conectar esas evidencias sin saltos. Si una intervención elimina una respuesta y reduce supervivencia en un ambiente, demuestra una contribución bajo esas condiciones. La explicación de su origen necesita además considerar alternativas históricas y posibles efectos conectados.
Un vocabulario preciso permite conservar conclusiones parciales. Podemos tener evidencia fuerte de mecanismo y evidencia limitada de origen. Reconocer esa asimetría evita atribuir al conocimiento disponible una cobertura que todavía no tiene.
269.3. Un ejemplo de selección indirecta
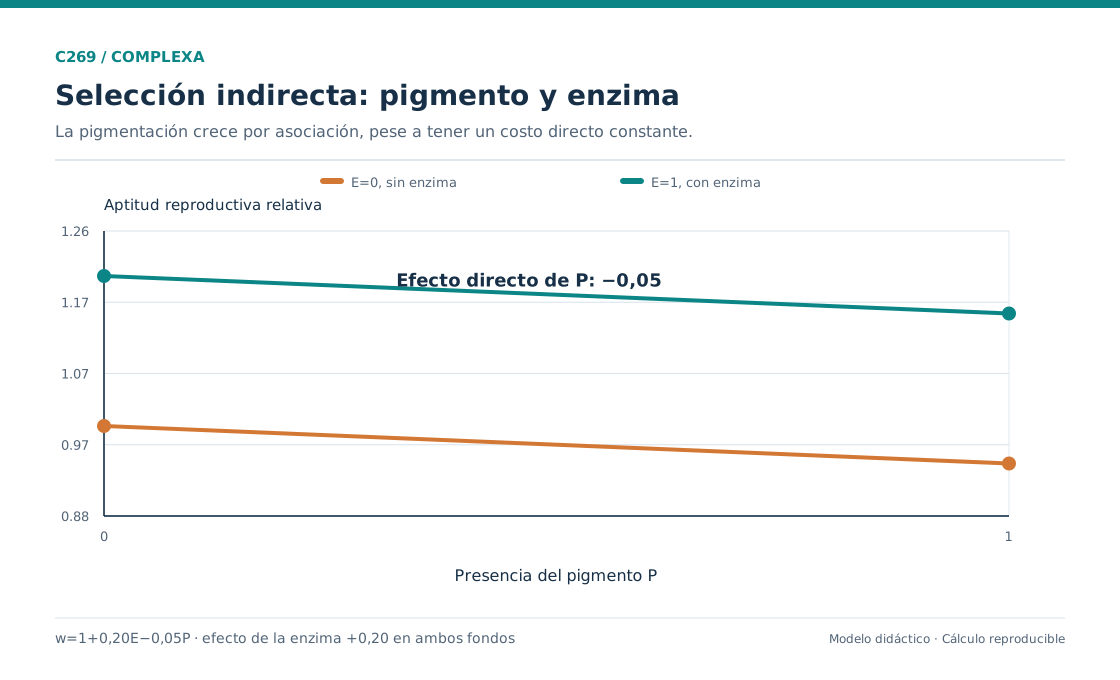
Consideremos organismos con dos características binarias, una enzima E y un pigmento P. Por una conexión del desarrollo, en la población inicialmente observada ambos aparecen juntos o ambos están ausentes.
Asignemos una aptitud didáctica
La enzima mejora reproducción en el ambiente considerado, mientras que producir pigmento tiene un costo. Los organismos sin ambos rasgos tienen aptitud uno. Los que poseen ambos tienen aptitud 1,15.
Si observamos solamente esos dos tipos, la pigmentación se asocia con mayor reproducción. Una interpretación apresurada podría afirmar que el pigmento es adaptativo porque los individuos pigmentados dejan más descendientes.
Sin embargo, la regla causal indica lo contrario para su efecto directo; manteniendo E constante, añadir P reduce la aptitud en 0,05. La asociación positiva procede de que el pigmento acompaña a la enzima beneficiosa.
Para distinguir mecanismos, imaginemos que podemos construir los cuatro estados. El tipo sin enzima y sin pigmento tiene aptitud uno; sin enzima y con pigmento, 0,95; con enzima y sin pigmento, 1,20; con ambos, 1,15.
La comparación factorial separa los efectos. La enzima suma 0,20 en ambos fondos y el pigmento resta 0,05. El tipo de mayor aptitud carece de pigmento, pero puede no haber estado disponible en la población original.
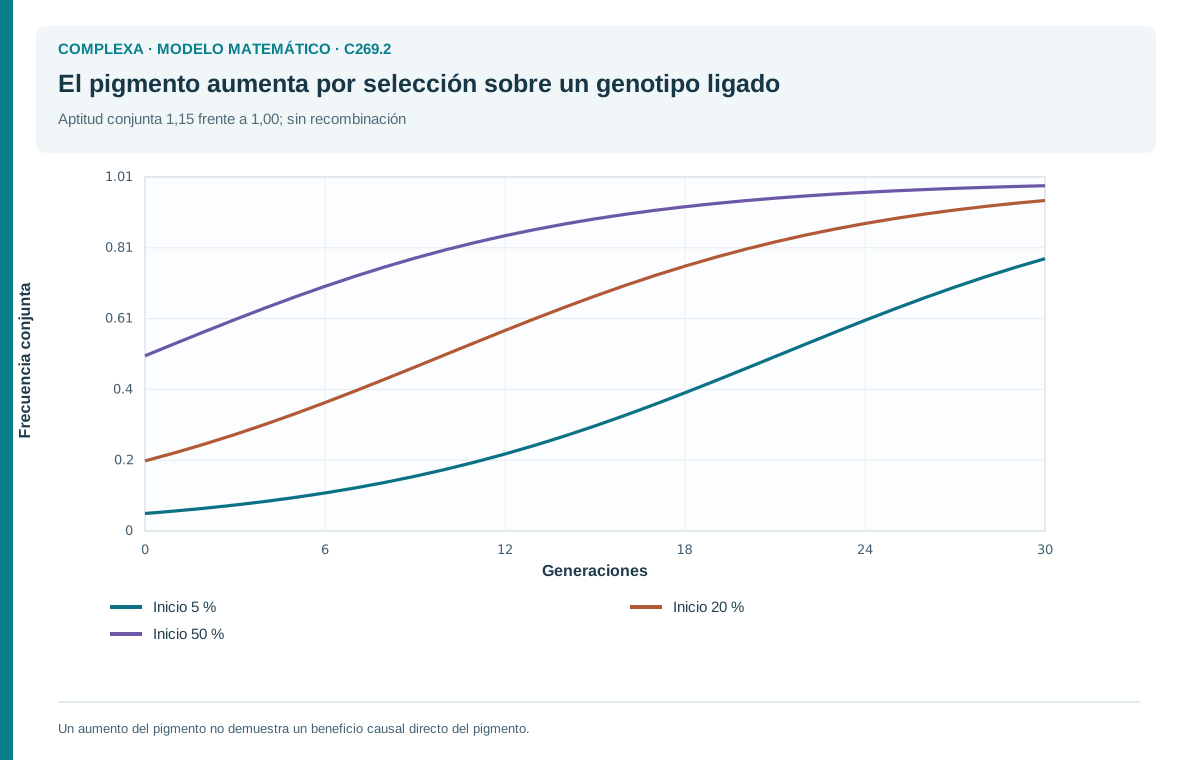
Este ejemplo contiene dos explicaciones complementarias. La selección favorece el conjunto que incluye la enzima. La conexión del desarrollo explica por qué el pigmento acompaña esa expansión. No hace falta atribuir una ventaja directa al pigmento para explicar su frecuencia creciente.
Si una mutación posterior rompe la conexión y conserva la enzima sin pigmento, puede ser favorecida. La aparición de esa variante cambia las alternativas disponibles. La trayectoria dependía tanto de los efectos como de las combinaciones que podían generarse.
El ejemplo es artificial y sus cifras no describen una especie. Su utilidad es mostrar que una covarianza positiva entre rasgo y reproducción no identifica necesariamente selección causal directa sobre ese rasgo. Para identificarla necesitamos comparaciones que separen las conexiones relevantes.
Podemos cuantificar el cambio de frecuencia en la población inicial. Si la mitad de los organismos tiene ambos rasgos y la otra mitad ninguno, la aptitud media es 1,075. La frecuencia del tipo pigmentado después de selección es 0,575 dividido por 1,075, aproximadamente 0,534884.
La pigmentación aumenta casi 0,034884 por generación en ese primer paso. Ese aumento es compatible con un costo directo del pigmento, porque el éxito del conjunto supera el costo de una de sus partes.
Si repetimos la comparación en un fondo sin enzima, con mitad pigmentada y mitad no pigmentada, la aptitud media es 0,975. La frecuencia del tipo pigmentado después de selección es 0,475 dividido por 0,975, aproximadamente 0,487179. Ahora disminuye porque desapareció la asociación con la enzima beneficiosa.
Las dos observaciones no se contradicen. Una mide el cambio de un conjunto de rasgos asociados; la otra separa el efecto del pigmento en un fondo definido. La diferencia entre ambas es precisamente la evidencia que una explicación causal debe conservar.
En datos reales, romper asociaciones puede ser difícil. Algunas combinaciones son inviables o requieren intervenciones que alteran otros procesos. Esa dificultad limita la identificación del efecto directo y la conclusión debe reflejarla, sin encubrirla con una historia plausible.
269.4. Restricciones que generan patrones
Una restricción puede impedir que aparezca la combinación de rasgos que maximizaría una función bajo un modelo simple. En el ejemplo anterior, la conexión entre enzima y pigmento limita las opciones disponibles antes de que exista una modificación que las separe.
Las restricciones pueden ser físicas. Una estructura debe cumplir condiciones de resistencia, transporte o geometría para funcionar. No todas las combinaciones de tamaño, forma y materiales son realizables, aunque una representación abstracta permita escribirlas.
También pueden ser del desarrollo. Dos características pueden depender de un mismo proceso, de modo que modificar una altera la otra. Una correlación persistente puede reflejar esa organización, aunque no sea imposible romperla mediante cambios adicionales.
Las restricciones históricas proceden de componentes heredados y secuencias previas de cambios. Una solución nueva se construye a partir de sistemas existentes. Por eso la comparación pertinente no siempre es con un óptimo global inventado por el observador.
Esto no significa que toda imperfección pruebe una restricción. Un rasgo aparentemente ineficiente puede estar respondiendo a objetivos no medidos, ambientes variables o compensaciones entre funciones. La hipótesis de restricción también necesita evidencia.
Una manera de estudiarla es medir qué variación se produce antes de la selección. Si ciertas combinaciones nunca aparecen pese a esfuerzos experimentales adecuados, podemos investigar mecanismos que limitan su generación. La ausencia observada debe interpretarse según la potencia del diseño.
Otra vía es intervenir sobre el proceso de desarrollo. Si una modificación rompe una covariación y permite nuevas combinaciones, informa sobre la causa de la restricción. La viabilidad y la reproducción de esas combinaciones siguen siendo, sin embargo, preguntas adicionales.
Una restricción puede ser local y modificable. Dentro de un fondo genético, una dirección puede resultar inaccesible; después de una duplicación o un cambio regulador, puede volverse disponible. Hablar de imposibilidad absoluta suele exceder la evidencia.
La selección y las restricciones actúan conjuntamente. La primera modifica frecuencias entre variantes; las segundas influyen en cuáles aparecen y con qué efectos. Separarlas analíticamente permite comprender su interacción, sin convertirlas en explicaciones rivales de todo el proceso.
El resultado observado puede ser la mejor opción entre alternativas accesibles, una solución transitoria o una consecuencia de deriva. La forma final no permite decidir entre esas posibilidades sin reconstruir parte de las condiciones que la produjeron.
Una restricción de recursos puede representarse con un ejemplo de optimización. Supongamos dos inversiones x e y, ambas no negativas, cuya suma no puede superar uno. El rendimiento inmediato es dos veces x más y. Bajo esas reglas, la mejor asignación disponible es x igual a uno e y igual a cero, con rendimiento dos.
Ahora añadamos una restricción del desarrollo que obliga a producir ambas inversiones en cantidades iguales. La mejor combinación permitida pasa a ser x e y iguales a un medio, con rendimiento 1,5. Si el proceso lleva realmente al sistema a un máximo, lo hace dentro de un conjunto restringido de combinaciones.
Una modificación que permita variar x e y por separado puede aumentar el rendimiento sin cambiar la función objetivo, porque amplía las opciones. Así se expresa con precisión cómo la evolución de la organización puede alterar el espacio de adaptación.
Sin embargo, observar el punto de rendimiento 1,5 no demuestra que exista esa restricción. También podría ser un estado transitorio, una respuesta a otro ambiente o el resultado de un costo omitido. El modelo propone una explicación posible y sus predicciones, que todavía hay que contrastar.
La prueba podría medir si variaciones independientes de x e y son producidas por el sistema y si conservan viabilidad. También debería evaluar si el rendimiento propuesto representa adecuadamente las consecuencias relevantes. Optimizar una función mal elegida puede crear una apariencia de ineficiencia que desaparece al medir otras dimensiones.
269.5. Reutilización y cambio de función
Una característica originada bajo una función puede adquirir otra posteriormente. Gould y Vrba propusieron el término exaptación para distinguir ciertos casos de uso de rasgos que no fueron moldeados originalmente por selección para su papel actual [3].
La distinción es histórica. Un rasgo puede contribuir a una función presente y, aun así, haber surgido por otra razón o como consecuencia de otro proceso. La utilidad actual no permite decidir cuál de esas historias ocurrió.
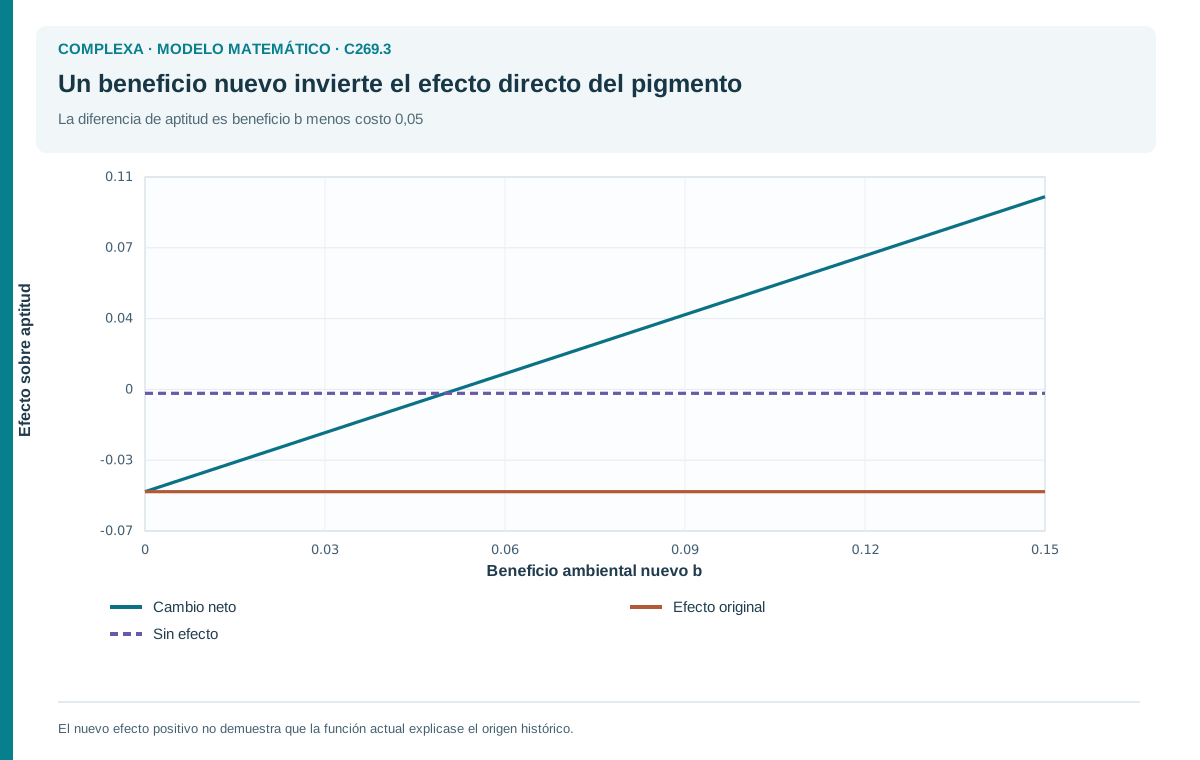
Volvamos al pigmento del ejemplo. En el ambiente inicial, producirlo tenía un costo de 0,05 y acompañaba a una enzima beneficiosa. Supongamos que un cambio ambiental añade al pigmento un beneficio de 0,10, manteniendo el costo.
Su efecto neto directo pasa a ser positivo, igual a 0,05. En el nuevo ambiente, conservar pigmento puede contribuir a la reproducción. Eso no transforma retrospectivamente su origen en una adaptación al ambiente nuevo.
Si después aparecen modificaciones que aumentan su eficacia protectora y son favorecidas por ese efecto, la historia incorpora una fase de adaptación para la nueva función. Un mismo rasgo puede reunir origen indirecto y modificación posterior por selección directa.
Para distinguir esas fases necesitamos información temporal o comparativa. Una intervención actual puede demostrar protección, pero no fechar cuándo apareció ni por qué aumentó inicialmente.
También debemos definir qué parte del rasgo se explica. Un material puede existir antes de adquirir una forma particular; la forma puede modificarse después para una función nueva. Clasificar el conjunto entero con una sola etiqueta puede ocultar etapas diferentes.
La reutilización tampoco implica que cualquier característica pueda adquirir cualquier función. Las propiedades previas delimitan posibilidades. El nuevo uso puede requerir cambios adicionales, un contexto ambiental específico o interacciones con otros componentes.
El concepto amplía el conjunto de hipótesis históricas. Permite preguntar qué condiciones previas hicieron posible la nueva función y qué modificaciones ocurrieron después, sin suponer que toda utilidad explica el origen.
La comparación será más informativa si describe secuencias de procesos (aparición, mantenimiento, cambio de contexto y modificación funcional). Ese relato puede contrastarse mediante evidencia; una etiqueta aislada no reemplaza la reconstrucción.
269.6. Deriva, demografía y alternativas poblacionales
Una variante puede aumentar por fluctuaciones de transmisión, especialmente cuando las diferencias reproductivas son pequeñas respecto de los efectos del tamaño poblacional. La deriva es una alternativa a atribuir cada cambio de frecuencia a una ventaja funcional.
Invocar la deriva tampoco explica automáticamente cualquier patrón. Debemos especificar tamaño, estructura, tasas de cambio y distribución esperada de resultados. Un modelo neutral produce predicciones que pueden compararse con datos.
La expansión demográfica, los cuellos de botella y la migración pueden modificar frecuencias sin que el rasgo observado sea la causa del cambio. Una característica puede volverse común porque sus portadores pertenecen a una población que crece o coloniza nuevos espacios.
La asociación con variantes seleccionadas también puede arrastrar otras diferencias. En regiones ligadas, una variante puede aumentar por su proximidad a otra que contribuye al éxito reproductivo. Separar efectos requiere considerar recombinación y estructura genética.
El balance mutación–selección es otra explicación de la persistencia. Una variante perjudicial puede mantenerse porque aparece recurrentemente. Su presencia no demuestra que tenga una ventaja compensatoria, aunque esa ventaja sea una hipótesis posible.
La selección dependiente del ambiente o de la frecuencia puede mantener variación por mecanismos diferentes. Una variante puede ser favorecida cuando es rara o bajo ciertas condiciones y desfavorecida en otras. Un promedio transversal puede ocultar esos cambios de signo.
Comparar estas alternativas exige datos distintos. Las series temporales informan sobre dinámica; la estructura espacial informa sobre migración; las mediciones reproductivas ayudan a estimar selección; los datos de transmisión permiten evaluar mutación y recombinación.
Ningún patrón aislado resuelve necesariamente la comparación. Una frecuencia intermedia puede surgir de varios mecanismos. Una distribución geográfica puede reflejar ambiente, historia o ambos. La explicación más plausible debe integrar predicciones diferenciales y limitaciones de observación.
También puede haber varios procesos simultáneos. En ese caso, la tarea suele ser estimar qué contribuciones son necesarias para explicar el patrón. La precisión conceptual ayuda a evitar una falsa elección entre selección y todo lo demás.
Una buena explicación poblacional conecta rasgo, transmisión y reproducción sin suponer que el rasgo medido es siempre el objeto directo de selección. Esa conexión permite evaluar hipótesis funcionales dentro de una dinámica evolutiva completa.
269.7. Comparación entre especies y dependencia compartida
Si una característica aparece repetidamente en ambientes similares, esa asociación puede apoyar una hipótesis funcional. Sin embargo, las especies comparten antepasados y rasgos heredados, de modo que no son observaciones históricamente independientes.
Imaginemos diez especies con un mismo rasgo que pertenecen a un único linaje, frente a diez sin él en otro linaje. El patrón puede reflejar una sola aparición ancestral y múltiples descendientes. Contarlo como diez orígenes independientes exageraría la evidencia.
La comparación filogenética intenta incorporar esa dependencia. Su utilidad depende de la calidad del árbol, de cómo se midan los rasgos y del modelo de cambio. No convierte automáticamente una correlación en causalidad.
La convergencia añade información cuando aparecen soluciones similares en linajes separados. Ahora bien, la similitud funcional puede producirse mediante mecanismos diferentes y una apariencia similar puede corresponder a funciones distintas. La definición del rasgo sigue siendo central.
También hay sesgos de muestreo. Las especies más estudiadas pueden no representar la diversidad pertinente. Una hipótesis formulada a partir de casos llamativos necesita contrastarse con ausencias, excepciones y condiciones donde predice que el rasgo no debería aparecer.
El registro fósil puede dar orden temporal y formas intermedias, aunque su resolución es desigual. Las inferencias deben reconocer qué características se conservan y cuáles no. La falta de un rasgo observable en fósiles no prueba necesariamente ausencia de su función.
La reconstrucción ancestral estima estados bajo modelos y datos disponibles. Es una inferencia con incertidumbre sobre un pasado que no se observa directamente. Diferentes supuestos pueden producir reconstrucciones distintas, especialmente cuando faltan linajes o hay cambios frecuentes.
Una comparación sólida busca coincidencia entre varias fuentes (distribución de rasgos, experimentos funcionales, desarrollo y evidencia histórica). Si todas apoyan una misma secuencia causal, la explicación gana fuerza. Si divergen, la discrepancia puede señalar una hipótesis incompleta.
El objetivo es ajustar la confianza al poder discriminativo de los datos, sin exigir evidencia imposible antes de proponer una explicación. Una hipótesis puede ser razonable y productiva sin presentarse como una historia definitivamente demostrada.
269.8. Formular predicciones que distingan hipótesis
Una hipótesis científica debe exponerse a resultados que podrían contar en su contra. Si cualquier observación puede reinterpretarse como prueba de la misma adaptación, la explicación deja de discriminar entre posibilidades.
En el ejemplo de pigmentación, una hipótesis de beneficio directo en el ambiente inicial predice que añadir pigmento, manteniendo la enzima constante, debería mejorar reproducción. La hipótesis de subproducto costoso predice el efecto contrario. La intervención factorial distingue ambas.
Una hipótesis de restricción predice que ciertas combinaciones serán difíciles de producir bajo el desarrollo habitual. Si una intervención las genera de manera estable, habrá que revisar el alcance de la restricción. Puede seguir siendo una restricción natural de acceso, pero queda descartada como imposibilidad física.
Una hipótesis de reutilización predice una secuencia temporal en la que la característica antecede a la función nueva o su organización inicial se explica mejor por otro proceso. La evidencia relevante debe informar sobre ese orden, que la utilidad actual no revela.
Las predicciones deben fijarse con suficiente precisión antes de examinar los resultados. Si el ambiente ancestral, el rasgo y la función cambian de definición cada vez que aparece una dificultad, la hipótesis puede volverse imposible de refutar.
Los modelos cuantitativos ayudan a explicitar compromisos. Podemos indicar qué magnitud de beneficio compensaría un costo, qué frecuencia se espera o qué cambio temporal debería observarse. La cuantificación no garantiza verdad, pero hace visibles las condiciones necesarias.
También conviene buscar controles negativos. Si una hipótesis propone una respuesta específica a una amenaza, debería distinguir esa amenaza de estímulos irrelevantes comparables. Una reacción general a cualquier perturbación puede apoyar otra explicación.
Una ausencia de efecto debe interpretarse según la precisión estadística y la calidad de la intervención. Un experimento incapaz de detectar una diferencia relevante no refuta la hipótesis. Del mismo modo, un efecto pequeño pero preciso puede ser insuficiente para sostener la magnitud funcional propuesta.
La comparación mejora cuando las alternativas se formulan con el mismo cuidado. Una explicación adaptativa detallada frente a una alternativa vaga produce una competencia desigual. Cada modelo debe declarar mecanismos, supuestos y predicciones observables.
Un modo práctico de organizar la comparación es escribir, para cada hipótesis, una observación esperada y otra que la debilitaría. En el caso del pigmento, el beneficio directo, la conexión metabólica y la reutilización posterior requieren patrones diferentes. Esta preparación reduce la tentación de cambiar la explicación después de conocer el resultado.
También conviene separar pruebas exploratorias de pruebas confirmatorias. Explorar muchos rasgos y ambientes puede descubrir relaciones interesantes, pero la selección posterior del caso más convincente aumenta el riesgo de sobreinterpretación. Una nueva muestra o una intervención diseñada específicamente permite evaluar la predicción con mayor independencia.
La magnitud del efecto debe corresponder a la explicación. Si se propone que un beneficio compensó un costo reproductivo importante, demostrar un efecto diminuto sobre una variable indirecta no basta. Hay que conectar la medida con el balance que requiere el mecanismo.
Las condiciones negativas son igualmente informativas. Si el pigmento protege solo bajo una exposición particular, el modelo debe predecir cuándo su costo dominará. Observar ese cambio de signo apoyaría una explicación contextual más precisa que afirmar una ventaja general.
Por último, debemos conservar los resultados que no encajan. Una excepción puede señalar un mecanismo adicional, una clasificación demasiado amplia o un supuesto falso. El progreso depende de convertir esas discrepancias en nuevas comparaciones.
269.9. Actualizar confianza sin convertir plausibilidad en prueba
La evaluación de evidencia puede expresarse mediante probabilidades, aunque no siempre sea posible asignar números confiables. La idea básica es comparar en qué medida sería esperable un resultado bajo cada hipótesis.
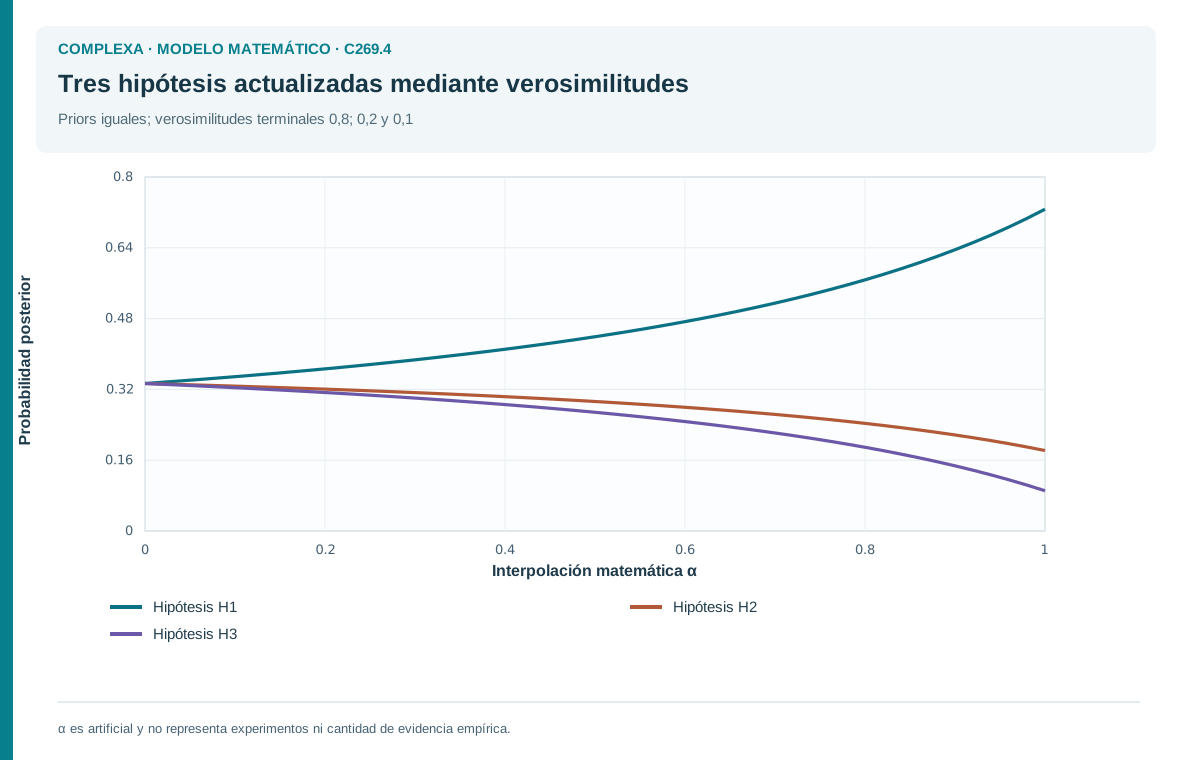
Consideremos tres hipótesis didácticas con igual probabilidad inicial. Supongamos que un resultado tiene probabilidades 0,8, 0,2 y 0,1 bajo ellas. Tras observarlo, las probabilidades relativas se normalizan dividiendo por la suma 1,1.
La primera recibe aproximadamente 0,7273; la segunda, 0,1818; y la tercera, 0,0909. El dato favorece a la primera, pero no la convierte en certeza. Estos números son inventados para ilustrar el cálculo y no corresponden a una evaluación de ningún rasgo real.
La comparación depende de las probabilidades iniciales y de la calidad de los modelos. Si falta una explicación importante, la mejor de las incluidas puede seguir siendo incorrecta.
Tampoco debemos multiplicar evidencias como si fueran independientes cuando proceden del mismo patrón. Una asociación geográfica, una correlación ambiental y una clasificación ecológica pueden compartir datos y supuestos. Contarlas tres veces exageraría su fuerza.
Una explicación atractiva puede generar muchas observaciones compatibles, pero compatibilidad no equivale a discriminación. Lo que cuenta es si esas observaciones serían menos esperables bajo alternativas. Una predicción compartida por todos los modelos apenas ayuda a elegir entre ellos.
La búsqueda de evidencia contraria es parte del proceso. Una hipótesis mejora cuando identifica condiciones donde debería fallar, cuantifica excepciones y revisa supuestos. Protegerla mediante relatos adicionales no contrastados puede aumentar complejidad sin aumentar conocimiento.
La comunicación debe reflejar el grado de apoyo. Podemos decir que una función se ha demostrado en un ensayo, que una historia es compatible con datos o que una explicación está mejor apoyada que sus alternativas actuales. Son afirmaciones diferentes. Explicitar qué observación adicional cambiaría esa valoración permite que otros investigadores evalúen el razonamiento y diseñen pruebas informativas sobre el mecanismo propuesto.
Esta disciplina hace más falta cuando una historia evolutiva parece intuitivamente convincente. La facilidad de narrarla no mide su probabilidad. Los mecanismos humanos de interpretación también pueden producir coherencia retrospectiva a partir de información limitada.
269.10. Explicar un rasgo exige comparar procesos
Adaptación, subproductos, restricciones y dinámica poblacional son herramientas complementarias para comprender características biológicas. Ninguna debe usarse como respuesta automática antes de definir el rasgo y examinar alternativas.
La utilidad presente informa sobre consecuencias bajo condiciones actuales. El origen histórico requiere evidencia sobre transmisión, reproducción y secuencia de cambios. Un mecanismo actual puede estar bien establecido mientras su explicación evolutiva sigue abierta.
Los ejemplos muestran que una asociación con éxito reproductivo no identifica necesariamente selección directa. Las conexiones entre rasgos pueden arrastrar características costosas y un cambio ambiental puede darles una función posterior.
Las restricciones delimitan opciones, pero también pueden modificarse. La deriva y la demografía alteran frecuencias, pero necesitan modelos propios. Comparar explicaciones exige dar a cada una predicciones suficientemente claras para que los datos puedan diferenciarlas.
La conclusión más útil suele ser específica y precisar qué mecanismo está apoyado, en qué contexto y con qué incertidumbre histórica. Esa precisión permite integrar nuevos resultados y corregir la explicación sin defender una etiqueta global.
El capítulo siguiente aplicará este enfoque a una explicación evolutiva en psiquiatría. Allí habrá que separar con especial cuidado respuestas humanas, categorías clínicas, consecuencias reproductivas y decisiones de atención. Una hipótesis sobre origen no puede sustituir la evaluación de lo que beneficia a una persona en el presente.
Referencias
[1] Gould, S. J., y Lewontin, R. C. (1979). The spandrels of San Marco and the Panglossian paradigm: A critique of the adaptationist programme. Proceedings of the Royal Society of London. Series B, 205(1161), 581–598. DOI.
[2] Tinbergen, N. (1963). On aims and methods of ethology. Zeitschrift für Tierpsychologie, 20, 410–433. DOI.
[3] Gould, S. J., y Vrba, E. S. (1982). Exaptation—a missing term in the science of form. Paleobiology, 8(1), 4–15. DOI.