Módulo 27. Evolución, variación y restricciones
267.1. Conservar una función y producir novedades
Una mutación puede cambiar una secuencia sin alterar una función medida. Esa tolerancia es una forma de robustez mutacional. A primera vista podría parecer incompatible con la capacidad de producir novedades; si las mutaciones no cambian el fenotipo, ¿cómo podría aparecer algo diferente?
La aparente contradicción depende de qué objeto y qué escala temporal consideremos. Un genotipo puede conservar su función frente a muchas modificaciones inmediatas, mientras que una población de genotipos equivalentes explora regiones desde las que resultan accesibles otros fenotipos.
La robustez y la capacidad de generar variación tampoco son cantidades únicas. Podemos medir la proporción de mutaciones que conserva una función, el número de fenotipos nuevos accesibles, su probabilidad de aparición o la velocidad de adaptación a una condición. Esas medidas responden a preguntas distintas.
En este capítulo, «evolvibilidad» designará una capacidad definida de generar variación heredable pertinente para un proceso evolutivo. Cada vez que la cuantifiquemos indicaremos el resultado, el mecanismo de variación y el horizonte considerado. La palabra no designará una propiedad global ilimitada.
También distinguiremos novedad de mejora. Una modificación puede producir un fenotipo diferente sin aumentar la reproducción. La diversidad accesible y la fracción de variantes beneficiosas son cantidades relacionadas solo después de especificar un ambiente y un criterio de desempeño.
La robustez depende del conjunto de perturbaciones. Tolerar sustituciones puntuales no equivale a tolerar cambios de temperatura, deleciones o modificaciones simultáneas en varios loci. Una afirmación de robustez necesita indicar frente a qué cambios se mantiene qué función.
Los modelos que construiremos compararán propiedades locales de un genotipo con las de una población distribuida. Después revisaremos cómo la estabilidad de proteínas y la variación críptica pueden conectar conservación funcional e innovación en sistemas experimentales concretos.
El objetivo es sustituir una oposición verbal por mecanismos comprobables. En ciertas condiciones, robustez y novedad inmediata pueden competir; en otras, la conservación de una función permite acumular diversidad que modifica posibilidades futuras. Ninguna de esas relaciones debe convertirse en una regla universal sin examinar el mapa y la dinámica.
267.2. Una definición operacional de robustez
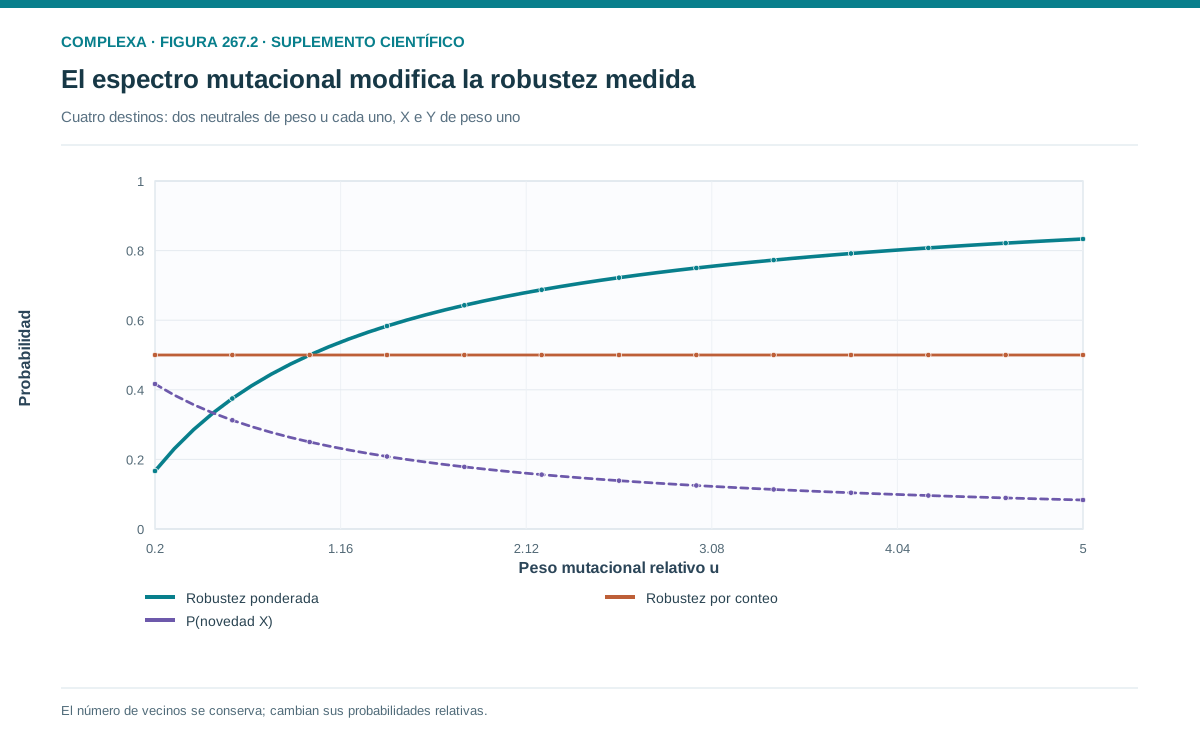
Supongamos que un genotipo g puede transformarse mediante un conjunto de mutaciones. Cada destino h tiene una probabilidad Q de ocurrir, condicionada a que se produzca una mutación del tipo estudiado. Definamos una función que vale uno si h conserva el fenotipo de referencia y cero en caso contrario.
La robustez mutacional de g puede escribirse como
La definición integra probabilidad y efecto. Si todas las mutaciones posibles son igualmente probables, se reduce a la fracción de vecinos que conserva el fenotipo. Si unas mutaciones son más frecuentes que otras, contar vecinos sin ponderarlos puede producir una estimación incorrecta.
Consideremos cuatro mutaciones posibles. Dos mantienen la función y dos la alteran. Con probabilidades iguales, la robustez es un medio. Si las mutaciones conservadoras tienen probabilidades 0,4 y 0,4, mientras que las otras tienen 0,1 y 0,1, la robustez aumenta a 0,8.
El mapa de efectos es el mismo; lo que cambió es el espectro de mutaciones. Por tanto, una medida de robustez combina propiedades del sistema con propiedades del proceso de perturbación. Para comparar experimentos hay que comprobar ambos componentes.
La conservación tampoco necesita ser una igualdad exacta. En un rasgo continuo podemos definir un intervalo de tolerancia alrededor de un valor funcional; la robustez será entonces la probabilidad de permanecer dentro de ese intervalo después de la perturbación.
Una tolerancia amplia produce valores mayores que una tolerancia estricta. Eso no invalida la medida, pero obliga a informar el criterio. Comparar dos estudios que usan límites distintos sin ajustar su definición puede generar diferencias puramente operacionales.
También podemos distinguir robustez condicionada a mutación y fidelidad total de transmisión. Si la probabilidad de no mutar es alta, la mayoría de los descendientes puede conservar la función incluso cuando las mutaciones que ocurren suelen ser perjudiciales. Esa conservación global no demuestra tolerancia intrínseca a mutaciones.
Para separar ambos aspectos, conviene medir la tasa de mutación y la distribución de efectos. Un sistema puede conservar función reduciendo errores, amortiguando sus consecuencias o combinando ambos mecanismos. Los resultados finales pueden parecer similares, pero las respuestas a nuevas perturbaciones serán diferentes.
La definición precisa permite diseñar una prueba que genere modificaciones de un conjunto declarado, mida su frecuencia y evalúe la función con el mismo criterio. Sin esas condiciones, llamar robusto a un sistema expresa una impresión general difícil de contrastar.
267.3. Destinos, tipos y probabilidades de la novedad local
La cantidad de mutaciones no neutrales no coincide necesariamente con el número de fenotipos nuevos, porque varias modificaciones pueden conducir al mismo resultado.
Supongamos que un genotipo tiene seis mutaciones equiprobables. Tres conservan la función y las otras tres producen el mismo fenotipo alternativo. Su robustez es un medio y tiene un solo fenotipo nuevo accesible mediante un paso.
Otro genotipo también tiene seis mutaciones equiprobables, pero solo una conserva la función. Las otras cinco producen cinco fenotipos diferentes. Su robustez es un sexto y su diversidad fenotípica local es cinco. En esta comparación, mayor conservación coincide con menor diversidad inmediata.
La relación no es inevitable. Podemos construir un tercer genotipo con tres mutaciones conservadoras y tres mutaciones que producen tres fenotipos distintos; tiene la misma robustez que el primero y triple diversidad local. La agrupación de destinos modifica la relación.
Si el interés es una función específica, ni siquiera el número de novedades basta. Una población puede generar muchas variantes que no resuelven el desafío considerado y otra generar pocas, pero con alta probabilidad de producir una variante útil.
Definamos B como el conjunto de resultados beneficiosos bajo un ambiente concreto. La probabilidad de obtener uno de ellos desde g es la suma de las probabilidades mutacionales hacia B. Esta cantidad puede ser pequeña aunque el número de fenotipos distintos sea grande.
Con cien oportunidades independientes y probabilidad de éxito 0,01 por oportunidad, la probabilidad de al menos un éxito es uno menos 0,99 elevado a cien, aproximadamente 0,6340. Si la probabilidad individual baja a 0,001, el resultado ronda 0,0952.
El número de oportunidades importa tanto como la probabilidad por oportunidad. Comparar poblaciones de tamaños distintos sin controlar ese factor puede atribuir a la arquitectura genética una diferencia causada por el suministro de variantes.
La independencia del ejemplo es una simplificación. Descendencia compartida, cambios de frecuencia y competencia entre variantes pueden modificar la distribución de oportunidades. La aparición tampoco garantiza establecimiento, porque una variante beneficiosa puede perderse por deriva.
Por tanto, una evaluación completa separa al menos tres etapas (generación, expresión funcional y persistencia poblacional). La robustez afecta algunas conexiones entre ellas, pero no permite deducir el resultado final sin especificar reproducción, transmisión y tamaño de población.
267.4. Un conjunto neutral puede ampliar lo accesible
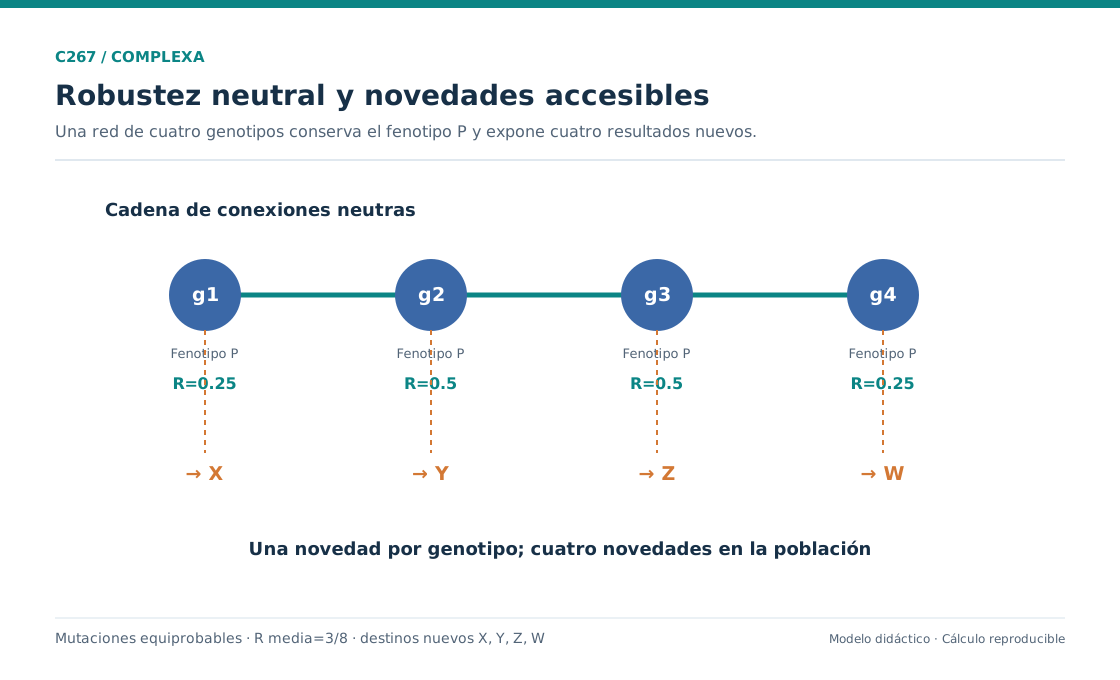
Construyamos cuatro genotipos, g uno a g cuatro, que producen el mismo fenotipo P. Forman una cadena en la que el primero puede mutar al segundo, el segundo al tercero y el tercero al cuarto, con conexiones en ambos sentidos.
Cada genotipo tiene cuatro destinos mutacionales equiprobables. En los extremos, uno de esos destinos pertenece a la cadena y los otros tres conducen a un fenotipo alternativo. En los dos genotipos centrales, dos destinos pertenecen a la cadena y los otros dos conducen a otro fenotipo.
Asignemos a cada posición un resultado alternativo distinto (X desde g uno, Y desde g dos, Z desde g tres y W desde g cuatro). Aunque un genotipo tenga varios destinos externos, todos producen el mismo resultado alternativo.
Cada genotipo tiene entonces un solo fenotipo nuevo accesible en un paso. Sin embargo, una población que contiene los cuatro puede generar cuatro resultados distintos, más que cualquiera de sus miembros.
La robustez local es un cuarto en los extremos y un medio en el centro. Si los cuatro genotipos tienen igual frecuencia, la robustez promedio es tres octavos, es decir, 0,375. Ese promedio resume la probabilidad de conservar P tras una mutación; cuántos resultados diferentes aparecen es otra cuestión.
Podemos compararlo con un genotipo aislado que tenga cuatro destinos externos, repartidos entre X, Y y Z. Ese genotipo tiene robustez cero y tres novedades locales. La población distribuida sobre la cadena tiene mayor robustez promedio y cuatro novedades accesibles.
Del ejemplo no se deduce una correlación universal. La conectividad neutral permite, como posibilidad lógica, distribuir una población entre genotipos con vecindarios distintos; la relación depende de cuánto se solapan esos vecindarios y de qué posiciones ocupa realmente la población.
Si todos los destinos externos de la cadena produjeran X, la población solo tendría una novedad accesible. El tamaño del conjunto neutral no asegura diversidad fenotípica, que depende de forma decisiva de la organización de sus fronteras.
Tampoco basta con que exista una ruta neutral. La población necesita tiempo y un proceso de mutación que permita recorrerla. Cuellos de botella, tasas bajas o selección sobre diferencias no medidas pueden impedir que explore el conjunto.
La distinción entre genotipo y población resuelve parte de la aparente paradoja. Conservar una función durante cambios internos puede permitir acceder a posiciones desde las que aparecen otras funciones. Aun así, la predicción exige describir tanto la red como la dinámica sobre ella.
267.5. Frecuencias, exploración y tiempo
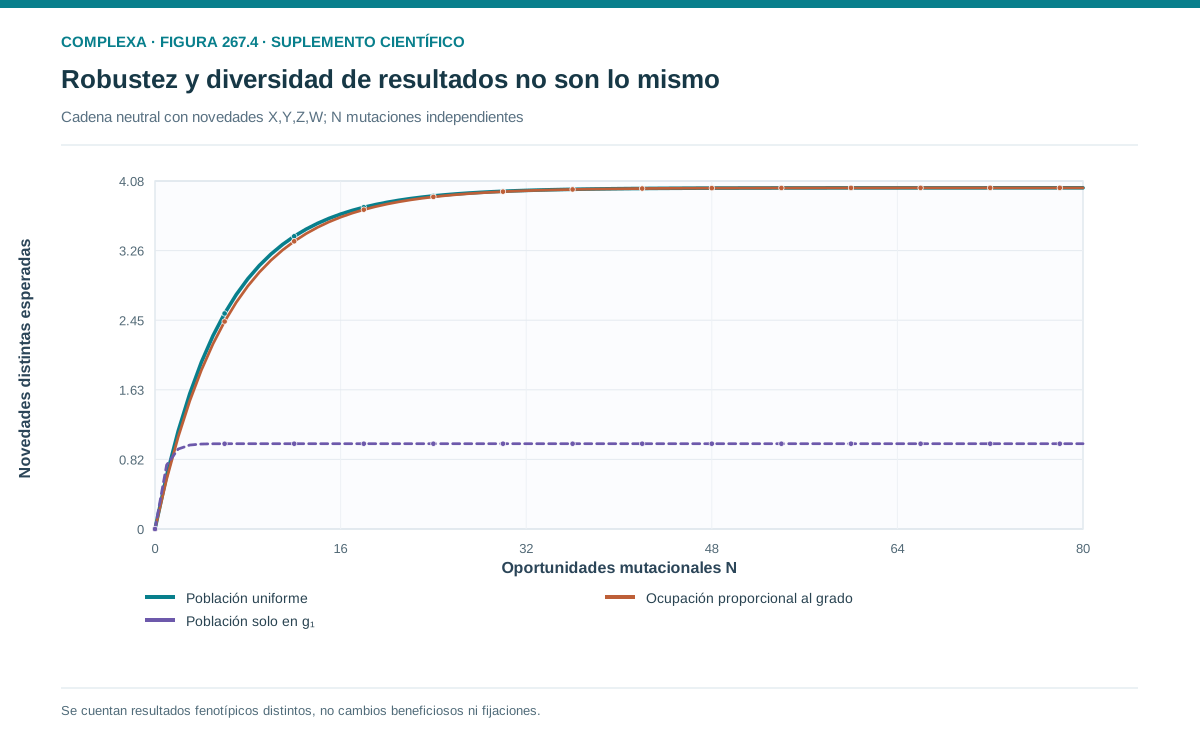
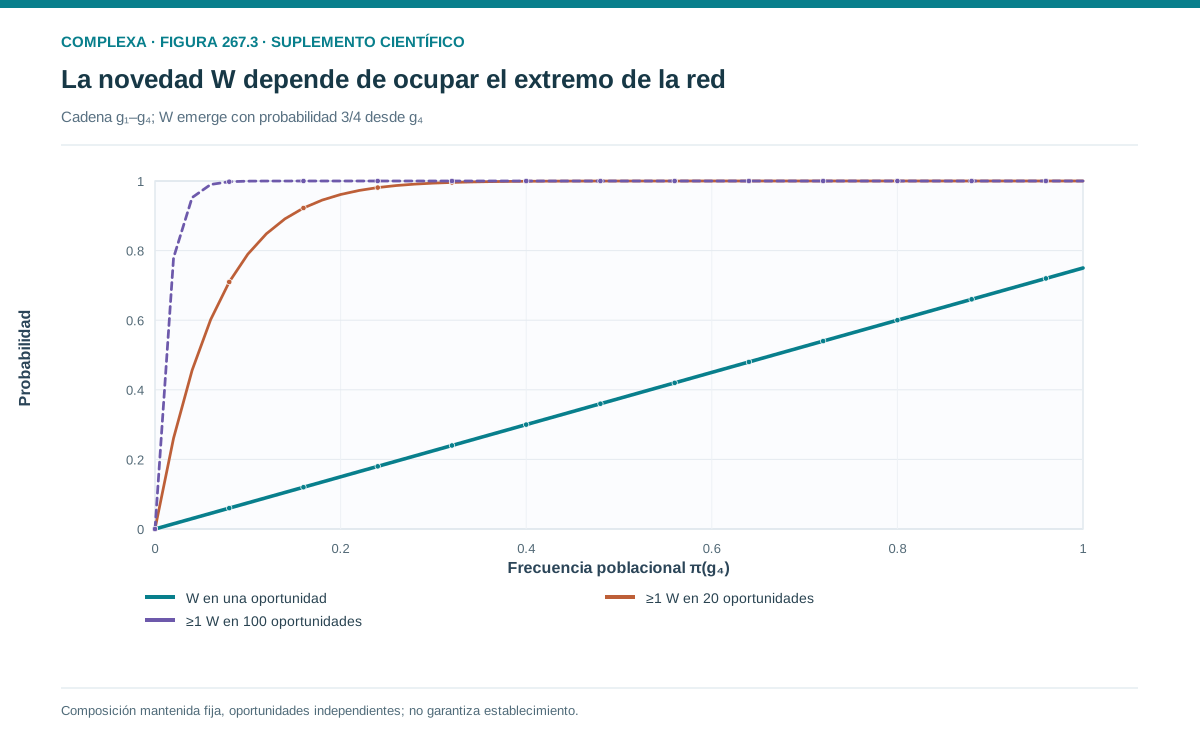
Una población no ocupa todos los genotipos posibles con igual frecuencia. La probabilidad de producir una variante depende de su distribución actual. Si pi de g es la frecuencia del genotipo g, la probabilidad poblacional de una novedad determinada es un promedio ponderado de sus probabilidades locales
En la cadena del apartado anterior, el resultado W solo aparece desde el último genotipo. Si ese genotipo está ausente, la probabilidad inmediata de W es cero aunque W sea accesible desde el conjunto neutral completo.
Con frecuencias uniformes, la probabilidad de W por mutación es un cuarto por tres cuartos, igual a tres dieciseisavos. Si la frecuencia del último genotipo es 0,01, la probabilidad baja a 0,0075. El mismo mapa admite capacidades inmediatas muy distintas según la ocupación.
La historia modifica esa ocupación. Una población recién llegada a g uno puede necesitar varios pasos antes de producir W, mientras que otra que ya se distribuyó por la cadena puede generarlo de inmediato. La diferencia entre ambas no requiere un cambio del mapa.
Debemos distinguir posibilidad geométrica de probabilidad dinámica. La primera pregunta si existe alguna ruta; la segunda calcula con qué frecuencia se recorre y cuánto tarda. Una ruta extremadamente improbable puede tener poca importancia durante el horizonte observado.
También importa cómo se implementa el movimiento. Si se proponen mutaciones uniformes y se rechazan las que abandonan P, los rechazos producen permanencias. Si registramos solo los cambios aceptados, desaparecen esas permanencias y cambia la distribución de visitas por paso registrado.
En un grafo no dirigido, una caminata que elige uniformemente entre vecinos neutrales tiende a visitar más los nodos con mayor grado, bajo condiciones habituales de conectividad. Ese resultado no puede trasladarse sin revisión a un proceso con propuestas sobre todos los destinos y rechazos explícitos.
La población real añade reproducción y competencia. Los genotipos centrales pueden producir más descendientes que conservan la función si tienen mayor robustez. En ciertos regímenes, esa diferencia puede modificar sus frecuencias aunque todos tengan igual rendimiento antes de mutación.
La exploración neutral tampoco anticipa necesidades futuras. Las posiciones alcanzadas pueden resultar útiles cuando cambia el ambiente, pero no fueron necesariamente favorecidas por esa utilidad futura.
Por ello, la evolvibilidad de una población es una propiedad situada, que depende de composición, tasas, restricciones y horizonte. Atribuirla únicamente a una arquitectura abstracta puede ocultar las condiciones que permiten convertir posibilidades en resultados.
Si mantenemos artificialmente fija la composición y generamos oportunidades independientes, el tiempo de espera hasta la primera aparición tiene una distribución geométrica. Con probabilidad tres dieciseisavos por oportunidad, la espera media es dieciséis tercios, aproximadamente 5,33 oportunidades. Con probabilidad 0,0075, aumenta a unas 133,33.
Estos tiempos no describen directamente una población que evoluciona durante la espera, cuyas frecuencias pueden cambiar y cuya probabilidad de éxito no permanece constante. El cálculo es una referencia para identificar qué diferencia produce la composición inicial antes de añadir otras dinámicas.
También ilustra por qué una espera media puede ser insuficiente. En el caso de probabilidad 0,0075, la probabilidad de al menos un éxito durante cien oportunidades es uno menos 0,9925 elevado a cien, aproximadamente 0,529. Una espera media cercana a ciento treinta no significa que todas las réplicas deban esperar tanto.
Para comparar historias conviene informar una distribución de tiempos o probabilidades de éxito dentro de intervalos relevantes. Esa información permite distinguir un proceso de éxito frecuente y gradual de otro dominado por acontecimientos raros, aunque ambos compartan un promedio parecido.
267.6. Estabilidad molecular y tolerancia a cambios
Una proteína necesita conservar propiedades físicas para cumplir determinadas funciones. Si una mutación mejora una actividad pero desestabiliza la estructura, su efecto total depende de cuánto margen de estabilidad tenía la proteína de partida.
Podemos ilustrarlo con una variable didáctica de estabilidad funcional. Supongamos que la función se mantiene cuando el margen es positivo. Una proteína con margen cinco tolera una pérdida de tres unidades y conserva margen dos; otra con margen uno pierde la función bajo la misma modificación. Aunque esta aumentara una actividad específica en ambos fondos, solo el primero conservaría la estructura necesaria para expresarla. El margen previo permite aceptar cambios que serían inviables en el segundo fondo.
Este ejemplo no afirma que toda función aumente con estabilidad ni que la estabilidad máxima sea siempre óptima. Puede haber compromisos con flexibilidad, actividad o regulación. La relación depende del sistema molecular y del ensayo.
Bloom y colaboradores combinaron modelos y experimentos con proteínas de la familia del citocromo P450 para estudiar cómo mayor estabilidad puede ampliar la tolerancia a mutaciones y facilitar cambios funcionales [1]. El trabajo da evidencia de un mecanismo concreto, de la que no se sigue que cualquier incremento de estabilidad mejore cualquier forma de evolvibilidad.
La conexión causal propuesta puede descomponerse en pasos. Primero se modifica o compara la estabilidad; después se generan mutaciones y, finalmente, se mide qué variantes conservan estructura y qué nuevas actividades expresan. Cada paso requiere controles para separar estabilidad de otras diferencias entre fondos.
Una medición de temperatura de desnaturalización no resume todas las propiedades relevantes dentro de una célula. Degradación, concentración, interacciones y condiciones químicas pueden modificar el resultado. La correspondencia entre medida física y función biológica debe comprobarse.
También conviene distinguir tolerancia global y tolerancia específica. Un fondo más estable puede aceptar un conjunto amplio de mutaciones sin ser superior para todas. Algunas modificaciones pueden requerir interacciones particulares que no se resuelven aumentando estabilidad.
La predicción útil es condicional. Cuando la pérdida de estabilidad limita la aceptación de cambios funcionalmente interesantes, disponer de margen adicional puede ampliar el conjunto viable. Esa formulación identifica cuándo esperar el efecto y qué observación podría refutarlo.
Así, la robustez no se opone necesariamente a la innovación, ya que puede conservar los requisitos que permiten expresar cambios en otras dimensiones. La explicación depende de una arquitectura de funciones y restricciones y prescinde de cualquier preferencia abstracta de la evolución por sistemas resistentes.
267.7. Variación críptica y cambios de contexto
La variación genética críptica consiste en diferencias genéticas cuyos efectos fenotípicos son pequeños o no detectables bajo unas condiciones, pero se manifiestan bajo otras. El carácter críptico depende del rasgo y del ensayo, porque una diferencia invisible para una medición puede ser visible para otra.
Supongamos dos genotipos que producen actividad diez en el ambiente inicial. En un ambiente nuevo, uno conserva diez y el otro aumenta a quince. La equivalencia inicial no implica equivalencia frente a toda perturbación.
Si la población acumuló ambos genotipos mientras mantenía la función inicial, el cambio ambiental puede revelar variación sobre la que actúe la selección. No es necesario que el ambiente haya creado en ese momento todas las diferencias genéticas pertinentes.
Hayden, Ferrada y Wagner estudiaron esta posibilidad mediante evolución experimental de una enzima de ARN [2]. Encontraron que variación genética acumulada bajo una función previa podía facilitar adaptación posterior en el sistema analizado.
La interpretación debe evitar una finalidad retrospectiva. La variación previa no tuvo que acumularse para resolver el desafío futuro; su utilidad posterior puede ser una consecuencia de diferencias que eran toleradas o poco visibles en el ambiente anterior.
También debemos distinguir liberación de variación y aumento de tasa de mutación. En el primer caso, cambios existentes adquieren efectos detectables; en el segundo aparecen nuevas variantes con mayor frecuencia. Ambos procesos pueden coexistir, pero requieren mediciones diferentes.
Un diseño informativo conserva muestras de la población antes y después del cambio. Así puede comprobar si las variantes relevantes ya existían, si cambiaron sus efectos y cómo variaron sus frecuencias. Sin esas muestras, una reconstrucción retrospectiva puede ser ambigua.
La variación revelada no tiene que ser beneficiosa. Un cambio ambiental puede exponer vulnerabilidades y aumentar diferencias perjudiciales. La capacidad de generar variación no garantiza una respuesta adaptativa favorable.
La persistencia de una función inicial tampoco demuestra neutralidad reproductiva completa. Dos genotipos con igual actividad medida pueden diferir en otros rasgos, costos o interacciones. El calificativo «neutral» debe limitarse al criterio que se haya evaluado.
El concepto de variación críptica es más útil cuando se usa como hipótesis comprobable sobre cambios de efectos. Identificar qué diferencias estaban presentes y qué condición las vuelve relevantes permite conectar historia genética, desarrollo y respuesta evolutiva.
267.8. Experimentos que separan las explicaciones
Para estudiar si la robustez facilita adaptación, necesitamos distinguir el efecto de la arquitectura del efecto de tamaño poblacional, tasa de mutación y condición inicial. Un resultado más rápido puede proceder de cualquiera de esos factores.
Un diseño podría comparar fondos con diferente tolerancia mutacional, generar bibliotecas de variantes bajo un procedimiento común y medir la proporción que conserva función. Después se evalúa la aparición de una actividad nueva bajo el mismo criterio y con números comparables de oportunidades.
La comparación debe informar cuántas variantes independientes se ensayaron. Si una biblioteca contiene muchas copias repetidas, su tamaño nominal puede exagerar la diversidad explorada; secuenciar una muestra ayuda a estimar esa redundancia.
También debe controlar la distribución de cambios. Una biblioteca con más mutaciones por secuencia no equivale a otra con una sola modificación promedio. El número y tipo de mutaciones influyen tanto en conservación como en novedad.
Una medida de adaptación puede ser el aumento de crecimiento, la frecuencia de variantes útiles o el tiempo hasta superar un umbral. Cada indicador incorpora procesos distintos. El tiempo de adaptación combina generación, establecimiento y expansión, de modo que mide algo más que diversidad mutacional.
Las réplicas permiten estimar dispersión entre trayectorias. Si unas pocas poblaciones encuentran una solución muy eficaz y otras no, la media puede ocultar un proceso de éxito raro. La probabilidad de éxito y la magnitud condicional del éxito deberían presentarse por separado cuando importan ambas.
La secuenciación temporal puede revelar si el resultado procede de variación previa o de mutaciones posteriores. La reconstrucción de genotipos permite comprobar efectos y dependencias entre cambios. Sin reconstrucción, una variante asociada al éxito puede ser acompañante de otra causal.
También hacen falta controles ambientales, porque una diferencia en recursos o duración de cultivo puede modificar selección y tamaño efectivo. Atribuir el resultado a robustez requiere descartar que esas diferencias basten para explicar la comparación.
La conclusión debería limitarse a su dominio y afirmar una mayor capacidad de adaptación frente a cierto desafío, bajo cierto régimen de mutación y tamaño. La evidencia puede sugerir mecanismos generales, pero la extrapolación necesita nuevas pruebas en otros contextos. Registrar los resultados negativos ayuda también a reconocer desafíos para los que la misma arquitectura no da ventaja.
La precisión de una estimación de robustez también depende del muestreo. Si se ensayan cien variantes independientes y ochenta conservan la función, la proporción observada es 0,8. Bajo un modelo binomial sencillo, el error estándar estimado es aproximadamente 0,04.
No sería razonable interpretar una diferencia entre 0,80 y 0,82 como evidencia concluyente de superioridad sin considerar esa incertidumbre. Ordenar dos porcentajes es insuficiente; el diseño debe estimar la precisión de la diferencia. Cerca de los extremos o con muestras pequeñas conviene usar intervalos apropiados, sin recurrir de forma automática a la aproximación normal.
La incertidumbre de medición de cada variante añade otra capa. Si algunas actividades quedan cerca del umbral funcional, repetir el ensayo puede cambiar su clasificación. Un análisis puede tratar esas actividades como continuas o incorporar probabilidades de pertenecer a la categoría, sin suponer etiquetas perfectamente conocidas.
También hay que registrar variantes que no pudieron construirse o medirse. Excluirlas silenciosamente puede sesgar la proporción de conservación, especialmente si el fallo se relaciona con pérdida de función. La regla de inclusión debe fijarse antes de comparar fondos.
Estos controles permiten distinguir una diferencia biológica de una diferencia en el procedimiento de observación.
267.9. Costos, límites y evolución de la propia robustez
La robustez puede tener costos. Reducir errores de copia puede consumir recursos; amortiguar perturbaciones puede requerir redundancia; mantener márgenes de estabilidad puede limitar otras propiedades. Un análisis evolutivo debe comparar beneficios y costos dentro de un ambiente.
La selección sobre robustez depende de que sus consecuencias afecten a la transmisión de variantes. Si las mutaciones son extremadamente raras durante el horizonte relevante, diferencias de tolerancia pueden tener un efecto reproductivo pequeño; si son frecuentes, esas diferencias pueden adquirir más peso.
No obstante, una propiedad robusta puede surgir como consecuencia de selección por otra razón. Una estructura que tolera cambios ambientales también puede tolerar algunas mutaciones. Mostrar su utilidad actual no basta para explicar su origen.
La robustez tampoco necesita aumentar indefinidamente. Si conservar una función impide explorar cambios favorables en el ambiente presente, puede existir una compensación. La relación entre estabilidad e innovación depende de qué direcciones de cambio se bloquean y cuáles permanecen disponibles.
Podemos imaginar una población concentrada en una región muy tolerante pero rodeada por novedades irrelevantes para el desafío actual, mientras que otra región menos tolerante puede estar junto a una solución útil. Con la sola amplitud de la región neutral no puede predecirse el mejor resultado.
La recombinación introduce nuevas posibilidades y riesgos. Puede reunir cambios compatibles o romper combinaciones que mantenían una función. Una medida basada solo en mutaciones individuales no describe necesariamente la variación producida por reproducción sexual.
La escala temporal también modifica la comparación. Un sistema puede producir pocas novedades inmediatas y muchas después de explorar una red extensa; otro puede generar diversidad inicial amplia y agotarse rápidamente. Hay que fijar el intervalo antes de ordenar su evolvibilidad.
Por último, la selección no necesita reconocer ni favorecer una propiedad llamada evolvibilidad. Algunos cambios pueden aumentar la generación de variantes por efectos indirectos, asociación con variantes beneficiosas o consecuencias de otros mecanismos. Explicar la evolución de esa capacidad exige un modelo de transmisión y selección sobre sus determinantes.
La pregunta científica útil es concreta; se trata de saber qué rasgo modifica qué distribución de variantes, cómo cambia la reproducción y bajo qué condiciones puede aumentar su frecuencia. Esa formulación permite estudiar la evolución de la robustez sin atribuir anticipación al proceso.
267.10. Una relación condicionada por el mapa y la población
Robustez mutacional y capacidad de generar variación pueden relacionarse de maneras diferentes. Una alta conservación local puede reducir cambios inmediatos, mientras que una población extendida sobre genotipos equivalentes puede acceder a vecindarios diversos.
Para evaluar esa relación necesitamos especificar perturbaciones, criterio funcional, distribución de genotipos y horizonte temporal. Contar mutaciones, contar fenotipos y calcular probabilidades de una novedad útil dan medidas distintas.
En la estabilidad molecular hay un mecanismo por el que conservar requisitos estructurales puede permitir cambios funcionales. En la variación críptica hay otro, en el que diferencias toleradas en un contexto pueden adquirir efectos relevantes en otro. Ambos mecanismos requieren evidencia y no garantizan adaptación.
Una población no explora el espacio de posibilidades de forma uniforme ni anticipa condiciones futuras. Su historia, tamaño y transmisión determinan qué regiones ocupa y qué variantes puede producir durante un intervalo concreto.
La comparación entre modelos y experimentos debe conservar esas condiciones. Una conclusión precisa sobre un sistema delimitado es más informativa que afirmar que robustez y evolvibilidad siempre se ayudan o siempre compiten.
El siguiente capítulo examinará con mayor detalle las redes neutrales y la accesibilidad. Allí distinguiremos la existencia de caminos, sus probabilidades y sus tiempos, para mostrar cómo una misma estructura de posibilidades puede producir historias evolutivas distintas.
Referencias
[1] Bloom, J. D., Labthavikul, S. T., Otey, C. R., y Arnold, F. H. (2006). Protein stability promotes evolvability. Proceedings of the National Academy of Sciences, 103(15), 5869–5874. DOI.
[2] Hayden, E. J., Ferrada, E., y Wagner, A. (2011). Cryptic genetic variation promotes rapid evolutionary adaptation in an RNA enzyme. Nature, 474, 92–95. DOI.