Módulo 27. Evolución, variación y restricciones
268.1. Un camino posible no es una trayectoria probable
Dos genotipos pueden producir el mismo fenotipo y estar separados por una mutación. Una sucesión de conexiones de ese tipo forma una ruta neutral respecto del criterio observado. Si muchas rutas se entrelazan, podemos representar el conjunto mediante una red.
Esta representación permite preguntar qué regiones son accesibles sin alterar una función. Sin embargo, la existencia de un camino no indica cuánto tarda una población en recorrerlo ni con qué probabilidad lo hará.
Una red neutral necesita una definición de equivalencia. Puede agrupar secuencias con igual estructura prevista, actividad dentro de un intervalo o reproducción indistinguible en un ensayo. Esas definiciones no son intercambiables y pueden producir redes diferentes sobre los mismos genotipos.
La neutralidad también puede ser aproximada. Una diferencia demasiado pequeña para detectarse experimentalmente puede importar en una población grande o durante un intervalo largo. Por tanto, una etiqueta neutral debe acompañarse de precisión, ambiente y escala.
Un paisaje de aptitud añade valores reproductivos a los genotipos. Una red neutral puede verse como una región de ese paisaje con aptitudes iguales o suficientemente parecidas para la pregunta considerada. Con todo, la igualdad de un fenotipo no garantiza la igualdad de todas las consecuencias reproductivas.
La historia interviene porque la población ocupa posiciones concretas. Dos poblaciones con el mismo fenotipo pueden tener vecinos mutacionales distintos. Un cambio posterior puede ser accesible desde una y difícil desde otra, aunque ambas parezcan equivalentes en el presente.
Estudiaremos estas ideas mediante una cadena de cuatro estados y un pequeño paisaje de tres posiciones binarias. Los ejemplos permitirán separar conectividad, distribución estacionaria, tiempo de llegada y dependencia de rutas.
Después conectaremos esos conceptos con experimentos de repetición evolutiva. La finalidad será identificar qué condiciones fijan posibilidades y qué acontecimientos modifican probabilidades, sin declarar que la evolución sea completamente predecible o impredecible.
Una explicación histórica gana precisión cuando especifica qué cambio previo alteró qué posibilidad posterior. Decir solamente que todo depende de la historia no permite contrastar nada. La red y las reglas de transición convierten esa afirmación general en una hipótesis concreta.
268.2. Construir el grafo y definir sus fronteras
Representemos cada genotipo mediante un nodo. Unimos dos nodos si una modificación permitida transforma uno en otro. Para secuencias binarias de longitud L, lo habitual es conectar cadenas que difieren en una sola posición.
Cada cadena tiene entonces L vecinos de un paso dentro del espacio completo. Si clasificamos genotipos por fenotipo, una red neutral contiene los nodos de una clase y las conexiones que permanecen dentro de ella. Sus fronteras conducen a otras clases.
Con longitud tres hay ocho secuencias. Aunque una clase contenga cuatro, estas pueden distribuirse en componentes separadas que no se alcanzan mediante pasos neutrales individuales.
El tamaño de una clase y la conectividad son propiedades diferentes. Una clase abundante puede contener varias regiones desconectadas; una clase pequeña puede formar un corredor que permita cambios en muchas posiciones a lo largo de una ruta.
La regla de mutación determina qué conexiones existen. Si permitimos cambios dobles, inserciones o recombinación, el grafo cambia. Una ruta imposible bajo sustituciones individuales puede volverse posible bajo otro mecanismo.
Además de presencia o ausencia de conexiones, podemos asignar pesos. Una transición puede ocurrir con mayor frecuencia que otra por sesgos mutacionales. Dos redes con la misma topología pueden producir trayectorias diferentes si sus pesos difieren.
Las fronteras requieren una decisión adicional. Una mutación que sale de la clase puede ser letal, seleccionada negativamente, funcionalmente distinta pero viable o beneficiosa en otro ambiente. Agrupar todas esas salidas bajo una sola etiqueta puede ocultar mecanismos importantes.
Una medición parcial también puede dejar nodos sin clasificar. No debemos tratar automáticamente los genotipos no ensayados como inviables o inaccesibles.
Para trabajar de manera reproducible conviene conservar por separado la lista de estados, la regla que genera conexiones y la función que asigna resultados. Esa separación permite cambiar un supuesto y observar qué propiedad del análisis depende de él.
El grafo es así una representación explícita de posibilidades bajo ciertas reglas. Su utilidad está en que permite calcular rutas, componentes, fronteras y efectos de modificaciones bien definidas; el parecido visual con un paisaje es secundario.
268.3. La misma cadena admite distribuciones distintas
Consideremos cuatro estados neutrales conectados en línea (uno con dos, dos con tres y tres con cuatro). Los grados de los nodos son uno, dos, dos y uno.
Primero definamos una caminata que elige uniformemente uno de los vecinos neutrales disponibles. Desde un extremo se mueve necesariamente hacia el centro; desde un nodo central elige cada dirección con probabilidad un medio. Su distribución estacionaria, proporcional al grado, es
Podemos comprobar el equilibrio de flujos entre uno y dos. Desde uno sale una masa de un sexto por paso; desde dos vuelve un tercio multiplicado por un medio, también un sexto. Las demás conexiones cumplen el mismo balance.
La cadena es bipartita y no tiene permanencias. Por ello, su distribución desde un estado inicial concreto puede oscilar sin converger paso a paso a la estacionaria. La distribución estacionaria existe y los promedios temporales tienen otra interpretación, pero no debemos confundir ambas propiedades.
Ahora modifiquemos la regla. En cada nodo se proponen dos direcciones con igual probabilidad. En los extremos, la propuesta que saldría de la cadena se rechaza y produce permanencia. En los nodos centrales, ambas propuestas llevan a un vecino.
La matriz resultante es simétrica y tiene la distribución estacionaria uniforme
Los estados extremos ya no se abandonan necesariamente en cada paso. Las permanencias compensan su menor número de vecinos. La cadena es además aperiódica porque algunos estados tienen probabilidad positiva de permanecer.
Como el grafo neutral es idéntico, la diferencia entre ambas distribuciones procede de qué se cuenta como paso y de cómo se tratan las propuestas rechazadas. Registrar solo movimientos aceptados puede producir una descripción distinta de registrar todas las oportunidades.
Este ejemplo sirve para interpretar simulaciones. Una rutina que selecciona entre vecinos válidos no implementa lo mismo que otra que propone una mutación entre todas las posibles y rechaza las inválidas. Ambas pueden parecer caminatas neutrales, pero sus frecuencias de visita difieren.
Antes de atribuir una concentración poblacional a una propiedad biológica, debemos comprobar si surge de la regla de actualización. El algoritmo forma parte del modelo y puede cambiar la respuesta aunque el dibujo de la red permanezca intacto.
268.4. Una población reproductiva no es una sola caminata
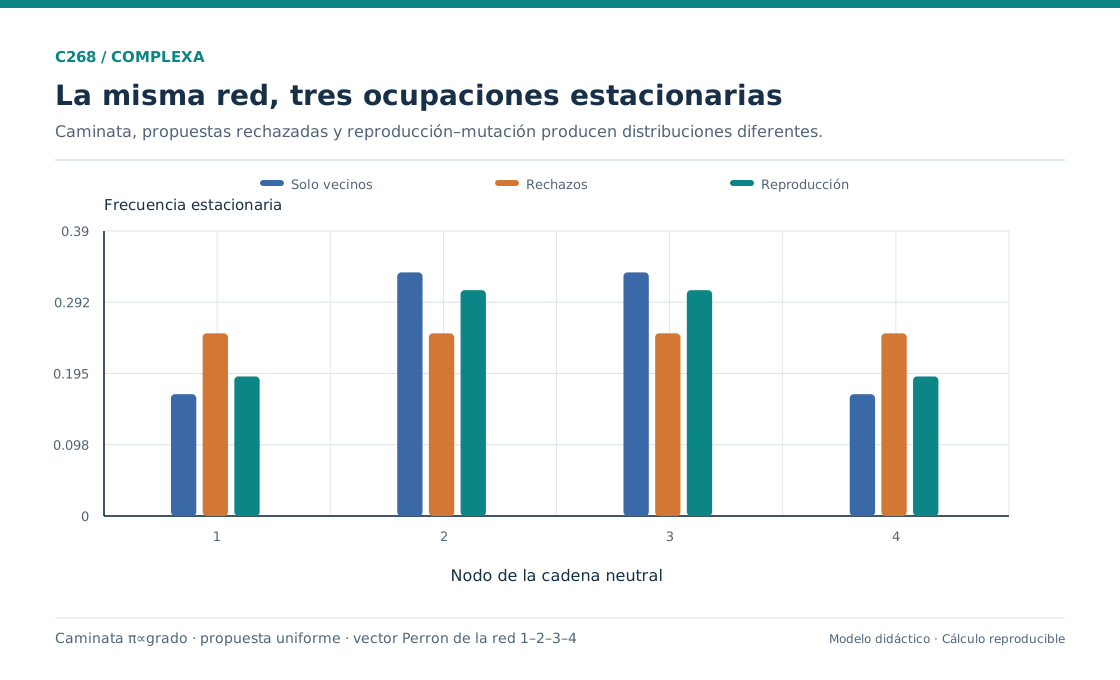
Una caminata describe un estado que cambia en el tiempo. Una población reproductiva puede contener simultáneamente muchos genotipos, cada uno con descendientes. La mutación y la pérdida de descendientes modifican entonces la composición de otra manera.
Mantengamos la cadena de cuatro estados. Cada copia produce el mismo número potencial de descendientes. Con probabilidad uno menos mu, un descendiente conserva su estado. Con probabilidad mu se propone una de dos direcciones equiprobables; si la propuesta sale de la cadena, el descendiente no es viable.
La matriz de producción viable es
donde A es la matriz de adyacencia de la cadena. Sus columnas no suman todas uno, porque los extremos pierden parte de su descendencia hacia estados no viables; los nodos centrales, en cambio, conservan todas las propuestas de un paso.
La composición dominante es proporcional al vector propio principal de A. Normalizado, ese vector es aproximadamente
No coincide con la distribución uniforme ni con la proporcional al grado del apartado anterior. Las tres respuestas corresponden a mecanismos diferentes sobre el mismo grafo.
El valor propio principal de A es aproximadamente 1,618034. Si mu vale 0,2, el factor dominante de producción viable es 0,8 más 0,1 por ese valor, aproximadamente 0,961803. La normalización de frecuencias puede ocultar esa pérdida absoluta si no se registra por separado.
La concentración en estados centrales refleja su número local de conexiones y también su papel en una red de reproducción y mutación. En redes más grandes, la posición de los vecinos y la conectividad global también influyen.
Van Nimwegen, Crutchfield y Huynen analizaron cómo la topología de redes neutrales puede afectar a la distribución de poblaciones y a su robustez bajo modelos específicos de mutación y selección [1]. Lo que aquí interesa es que la igualdad de aptitud basal no garantiza una ocupación uniforme cuando la producción de descendientes viables depende del entorno mutacional.
El tamaño finito puede modificar esta descripción determinista. Si la población es pequeña o las mutaciones son escasas, puede permanecer concentrada en un genotipo durante largos intervalos. El régimen de una población distribuida no debe asumirse automáticamente.
La comparación exige por tanto especificar si modelamos una secuencia ancestral, un linaje que cambia de estado o una población con reproducción simultánea. El mismo vocabulario de exploración neutral puede ocultar diferencias sustanciales entre esos objetos.
La solución de la versión reproductiva puede comprobarse sin un programa de álgebra matricial. Por simetría, escribamos el vector principal como una cantidad a en cada extremo y una cantidad b en cada nodo central. La ecuación del extremo exige que el valor propio por a sea b.
La ecuación de un nodo central exige que el valor propio por b sea a más b. Al combinar ambas relaciones, el valor propio satisface la ecuación lambda al cuadrado igual a lambda más uno. La raíz positiva es la razón áurea, aproximadamente 1,618034.
La normalización exige dos veces a más dos veces b igual a uno. De ahí se obtienen los valores 0,190983 y 0,309017 usados antes. El cálculo muestra exactamente qué parte de la respuesta procede de simetría y qué parte de reproducción entre vecinos.
Si cambiamos la red, los grados locales no bastan para recuperar el nuevo vector; hay que resolver cómo se apoyan mutuamente las contribuciones de todos los estados. Esa dependencia global distingue la distribución reproductiva de una simple asignación proporcional al número de vecinos.
268.5. Calcular tiempos de llegada
La distancia mínima entre los extremos de la cadena es tres pasos. Sin embargo, una caminata puede retroceder antes de alcanzar el otro extremo, de modo que la distancia mínima no coincide con el tiempo medio de primera llegada.
Usemos primero la regla con propuestas rechazadas y permanencias en los extremos. Sea T sub i el número esperado de pasos hasta llegar al estado cuatro desde i. El estado cuatro es el destino y tiene tiempo cero.
Las ecuaciones de primer paso son
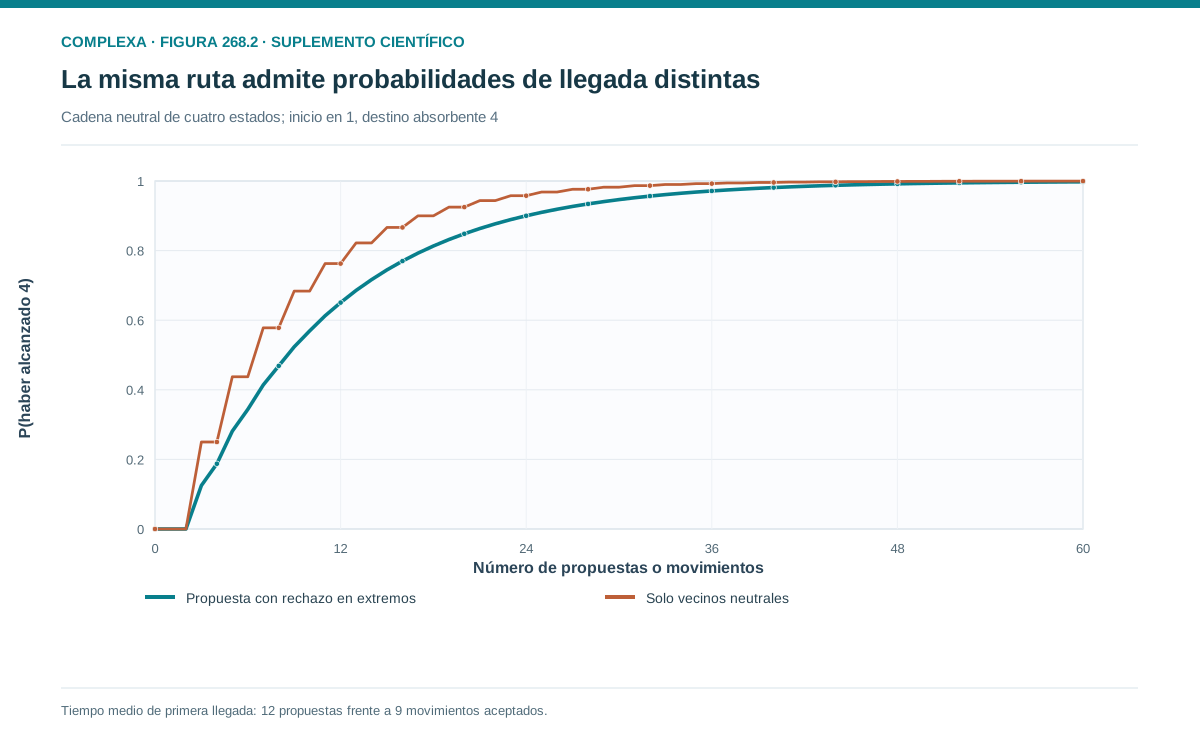
Al resolverlas obtenemos T uno igual a doce, T dos igual a diez y T tres igual a seis. Aunque tres movimientos directos bastarían, la espera media desde el primer estado es doce oportunidades.
Con la regla que elige únicamente vecinos neutrales, la primera ecuación cambia a T uno igual a uno más T dos. Las otras dos permanecen iguales antes de la absorción. La solución es nueve, ocho y cinco pasos.
La diferencia muestra de nuevo que el resultado depende del reloj. Una secuencia de movimientos aceptados puede recorrer la misma ruta geométrica, pero omite oportunidades rechazadas. Para comparar experimentos debemos usar unidades equivalentes.
La media tampoco describe toda la distribución. Algunas trayectorias llegan en tres pasos; otras hacen muchos retrocesos. Una predicción sobre éxito dentro de un plazo necesita calcular probabilidades acumuladas además del promedio.
En la cadena con permanencias, la probabilidad de llegar desde uno a cuatro exactamente en los primeros tres pasos es un octavo, porque hay que elegir la dirección correcta tres veces consecutivas. En la caminata sin permanencias en el extremo inicial, esa probabilidad es un cuarto.
Podemos calcular la probabilidad de llegada antes de un tiempo dado elevando la matriz de transición con el destino absorbente. Una simulación produce una estimación, mientras que el cálculo matricial es una referencia exacta para este sistema pequeño.
Si añadimos una probabilidad pequeña de abandonar la red por otra frontera, la probabilidad de alcanzar el destino puede bajar de uno. Entonces conviene distinguir tiempo condicionado al éxito y tiempo hasta cualquier salida. Mezclar ambos produce comparaciones engañosas.
La accesibilidad incluye así la conexión, la probabilidad y la duración. Una ruta puede existir y ser demasiado lenta para el horizonte ecológico o experimental que interesa.
Otra comprobación es comparar la frecuencia estacionaria de un estado con el tiempo necesario para llegar a él desde una posición concreta. En la caminata con rechazos, cada estado tiene frecuencia estacionaria un cuarto. Sin embargo, llegar al cuarto desde el primero tarda en promedio doce pasos.
La frecuencia estacionaria no significa que cualquier condición inicial alcance ese estado en cuatro pasos. El tiempo medio de retorno desde el propio estado, bajo las condiciones del teorema correspondiente, responde a otra pregunta. Confundir llegada desde un origen elegido con retorno estacionario puede producir errores incluso en redes pequeñas.
Podemos verificar los tiempos sustituyéndolos en las ecuaciones. Desde el primer estado, uno más la mitad de doce más la mitad de diez da doce. Desde el segundo, uno más la mitad de doce más la mitad de seis da diez. Desde el tercero, uno más la mitad de diez da seis.
Estas identidades son controles simples e independientes de una simulación. Si una estimación por réplicas se aleja de ellas más de lo esperable por error de muestreo, conviene revisar el reloj, la condición de absorción o la regla aplicada en los extremos.
268.6. Rutas ascendentes en un paisaje pequeño
Consideremos ahora secuencias binarias de longitud tres y permitamos cambios de una posición. Asignemos aptitudes didácticas, de modo que 000 tiene uno; 100, 1,1; 010, 1,2; 001, 0,9; 110, 1,3; 101, 0,8; 011, 1,4; y 111, 1,5.
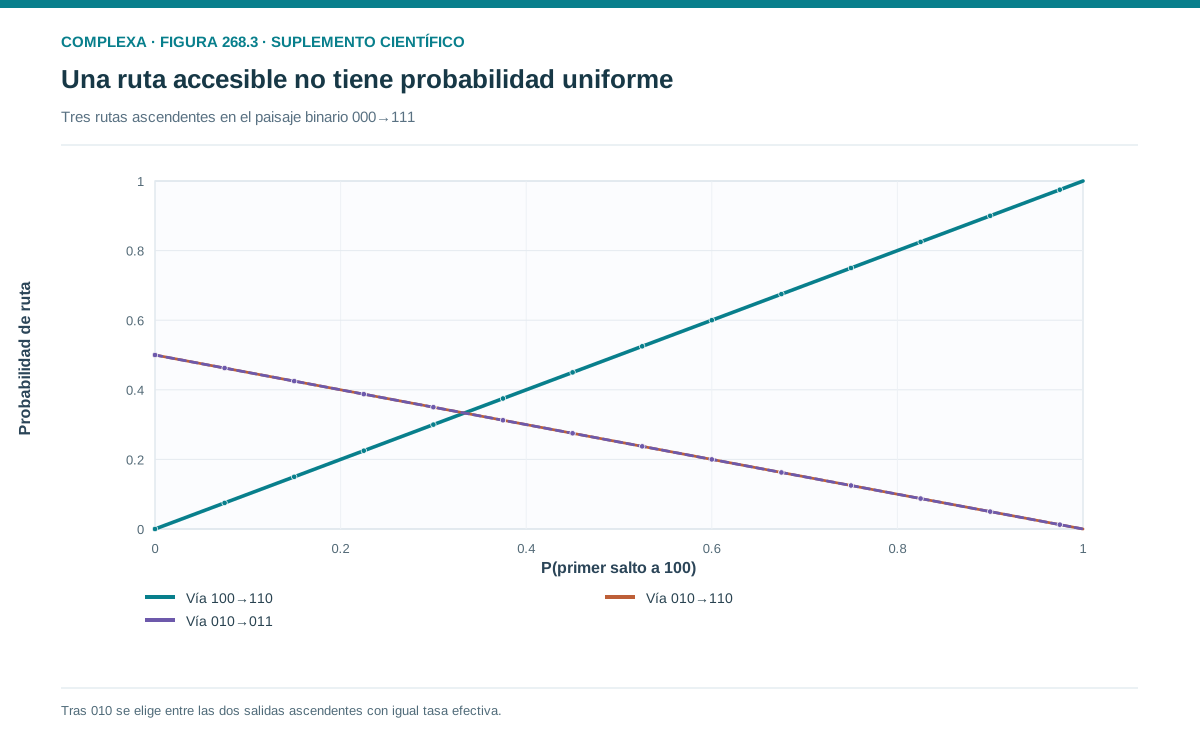
Entre 000 y 111 hay seis rutas mínimas que cambian cada posición una vez. Si exigimos que cada paso aumente estrictamente la aptitud, solo tres de esas rutas cumplen la condición.
Una pasa por 100 y 110; otra, por 010 y 110; la tercera, por 010 y 011. Las rutas que comienzan por 001 descienden al primer paso; la que pasa por 100 y luego por 101 también desciende.
Decir que hay tres rutas accesibles no significa que cada una tenga probabilidad un tercio. Las tasas de mutación y las probabilidades de establecimiento pueden favorecer unas transiciones frente a otras.
Supongamos, como regla adicional, que las tasas efectivas de transición exitosa desde 000 hacia 100 y 010 son uno y nueve. La primera elección tiene probabilidades 0,1 y 0,9. Si desde 010 las dos salidas ascendentes tienen tasas iguales, las tres rutas completas tienen probabilidades 0,1, 0,45 y 0,45.
Estas tasas efectivas ya incorporan, por definición del ejemplo, aparición y establecimiento. No deben confundirse con tasas de mutación desnudas. Si quisiéramos modelar ambos procesos por separado, necesitaríamos una regla poblacional adicional.
La restricción a pasos ascendentes corresponde a un régimen evolutivo particular y aproximado. La deriva puede permitir descensos, la recombinación puede saltar combinaciones y múltiples variantes pueden coexistir. Las rutas descartadas bajo una regla pueden ser posibles bajo otra.
La noción de máximo local también depende de conexiones permitidas. Un genotipo sin vecinos de un paso mejores puede tener un destino superior a dos pasos. Si no puede atravesar el intermedio en el régimen considerado, permanecerá atrapado localmente; con otros mecanismos, podría escapar.
Este pequeño paisaje muestra cómo la historia condiciona opciones. Después de elegir 100, las posibilidades inmediatas difieren de las disponibles después de elegir 010. La selección actúa sobre variantes que aparecen en posiciones concretas, sin comparar todas las secuencias posibles a la vez.
268.7. Contingencia histórica y experimentos de repetición
La contingencia histórica significa que acontecimientos previos modifican posibilidades o probabilidades posteriores. No implica ausencia de reglas. Una misma ley de transición puede producir resultados diferentes porque las poblaciones llegan a estados distintos.
Una manera de investigarla es conservar muestras de etapas anteriores y reiniciar experimentos desde ellas. Si la probabilidad de una innovación cambia sistemáticamente según el punto de partida, podemos buscar qué diferencias acumuladas explican esa variación.
Blount, Borland y Lenski usaron experimentos de repetición para estudiar la aparición de utilización aeróbica de citrato en una población experimental de Escherichia coli [2]. El trabajo encontró evidencia de que antecedentes genéticos de esa población influyeron en la probabilidad de la innovación bajo las condiciones estudiadas.
Una conclusión histórica debe limitarse al conjunto de ancestros, condiciones y oportunidades comparadas. Los experimentos pueden mostrar diferencias de probabilidad sin establecer que un rasgo sea imposible desde otro fondo o con otro procedimiento.
Para identificar mecanismos se pueden reconstruir cambios previos y posteriores en fondos controlados. Así se evalúa si una modificación altera el efecto de otra, si aumenta su probabilidad de establecimiento o si cambia el ambiente interno en el que actúa.
La palabra «preparación» puede describir retrospectivamente un cambio que facilita otro, pero no debe sugerir anticipación. Una variante previa pudo propagarse por efectos inmediatos distintos o por deriva. Su papel posterior es una relación causal que puede descubrirse después.
La repetibilidad también depende de qué resultado se compara. Varias poblaciones pueden aumentar crecimiento mediante genes distintos. A nivel de función parecen convergentes; a nivel de secuencia son divergentes. No hay una única medida de repetibilidad independiente de resolución.
Por ejemplo, un protocolo puede registrar por separado la aparición de una función, la identidad de las mutaciones y el tiempo requerido. Dos réplicas pueden coincidir en la primera variable y diferir en las otras. Presentar esos resultados conjuntamente permite reconocer regularidad funcional sin ocultar diversidad de mecanismos ni diferencias temporales.
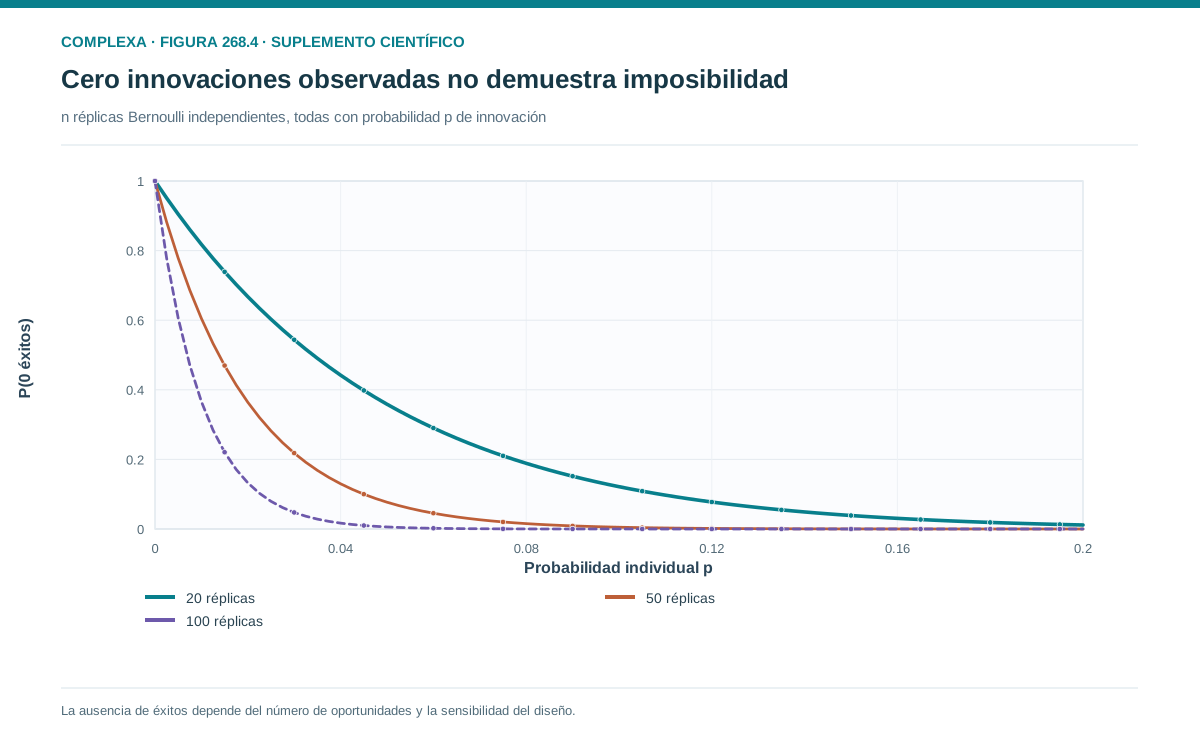
Las réplicas permiten estimar distribuciones de resultados, pero una ausencia de innovación en un número finito de réplicas no prueba probabilidad cero. Hay que considerar la potencia del diseño para detectar acontecimientos raros.
Una explicación de contingencia convincente conecta estado inicial, diferencias previas y consecuencias posteriores. Ese encadenamiento convierte una narración plausible en una hipótesis experimental y hace de la historia parte de la estructura causal.
La ausencia de éxitos puede cuantificarse con un modelo elemental. Si veinte réplicas independientes tienen una misma probabilidad p de innovación y ninguna tiene éxito, la probabilidad de ese resultado se obtiene multiplicando veinte veces la probabilidad de fracaso de una réplica
Un límite superior unilateral obtenido igualando esa probabilidad a 0,05 es aproximadamente 0,1391. Así, cero éxitos en veinte réplicas todavía es compatible, bajo este modelo, con probabilidades de éxito que no son despreciables.
El cálculo presupone independencia y condiciones comparables. Si las réplicas comparten una fuente de variación o tienen distintos tamaños y duraciones, la interpretación cambia. La unidad experimental debe definirse antes de convertir un recuento en evidencia sobre contingencia.
Comparar ancestros exige además oportunidades equivalentes o una corrección explícita de sus diferencias. Un ancestro que crece más puede generar más mutaciones durante el mismo tiempo cronológico. Un aumento de innovaciones podría deberse al suministro de variantes, a cambios en sus efectos o a ambos.
268.8. Ambientes cambiantes y redes que dejan de ser neutrales
Una red neutral se define respecto de condiciones. Si cambia el ambiente, genotipos antes equivalentes pueden adquirir aptitudes diferentes. La población puede estar distribuida sobre una región que se transforma en un nuevo paisaje selectivo.
Imaginemos que los cuatro estados de nuestra cadena tenían igual función inicial. En un ambiente nuevo, el estado cuatro adquiere una ventaja. Una población que ya contiene ese estado puede responder inmediatamente mediante cambio de frecuencias; otra concentrada en uno necesita generar y establecer los pasos pertinentes.
La diferencia inicial no exige que una población fuera más adaptada al ambiente anterior. Puede proceder de deriva, historia de mutaciones o cuellos de botella. La variación existente se convierte en una condición para la respuesta posterior.
El cambio ambiental también puede alterar conexiones efectivas. Una mutación antes inviable puede pasar a ser tolerada, o una ruta neutral puede quedar interrumpida. El grafo de accesibilidad depende tanto del mecanismo de variación como del criterio funcional.
Si los ambientes alternan, una variante puede aumentar durante una fase y disminuir durante otra. La frecuencia final depende del orden, duración y magnitud de esas fases. Promediar aptitudes sin atender a la dinámica puede producir una descripción insuficiente.
La memoria poblacional puede residir en frecuencias y asociaciones entre variantes. Incluso si el ambiente vuelve a un estado anterior, la población puede no regresar inmediatamente a su composición previa.
La extinción de una variante puede eliminar una ruta rápida de respuesta, aunque el genotipo siga siendo posible en el espacio abstracto. Reintroducirlo puede requerir una mutación rara o migración. La disponibilidad real debe distinguirse de la posibilidad matemática.
Para estudiar estos procesos conviene medir antes, durante y después del cambio. Una única muestra final puede ocultar si la respuesta usó variación previa, nuevas mutaciones o cambios en la composición de subpoblaciones.
El enfoque de redes es útil cuando conserva esta dependencia contextual. Un mapa fijo puede ser una aproximación durante un intervalo; no debe convertirse en una representación atemporal de todas las posibilidades evolutivas de una especie.
268.9. Cómo auditar una explicación basada en caminos
Una explicación de accesibilidad debería declarar estados, conexiones, pesos y criterio de aceptación. Si falta alguno, puede ser imposible distinguir una afirmación geométrica de una predicción dinámica.
El primer control verifica que cada paso de una ruta corresponde a una modificación permitida. Una trayectoria que requiere dos cambios simultáneos no puede presentarse como una sucesión de mutaciones individuales si el estado intermedio nunca se especifica.
El segundo control examina los valores asignados. Si se afirma que una ruta es neutral o ascendente, cada comparación debe usar la misma variable, ambiente y escala. Mezclar actividades de ensayos distintos puede crear una ruta artificial.
El tercer control revisa probabilidades. Contar rutas no equivale a ponderarlas. Una red con muchas rutas extremadamente improbables puede contribuir menos al resultado que una sola ruta frecuente.
El cuarto control trata el tiempo. Debe indicarse si un paso corresponde a una mutación propuesta, una sustitución fijada, una generación o un evento reproductivo. Las conversiones requieren supuestos y pueden depender del estado.
Con los ejemplos de cuatro estados podemos probar un programa. La caminata con rechazos debe tener distribución estacionaria uniforme y tiempo medio de llegada doce desde el primer extremo al último. La caminata por vecinos aceptados debe tener distribución estacionaria proporcional al grado y tiempo medio nueve.
La versión reproductiva con pérdidas debe producir el vector propio especificado, que difiere de ambas caminatas. Si un programa devuelve el mismo resultado para los tres casos, probablemente está implementando una regla compartida que no corresponde a las definiciones.
En un paisaje empírico hay que incorporar la incertidumbre de la aptitud. Si dos valores son muy cercanos respecto del error, clasificar un paso como ascendente con certeza puede exagerar la accesibilidad. Un análisis de sensibilidad puede calcular cómo cambian las rutas al variar valores dentro de su incertidumbre.
Finalmente, la explicación debe distinguir lo demostrado de lo supuesto. Una ruta reconstruida muestra posibilidad bajo el ensayo; una trayectoria observada muestra realización; una comparación de réplicas informa sobre probabilidad. Esas evidencias se complementan, pero ninguna reemplaza automáticamente a las demás.
268.10. La historia modifica dónde empieza el siguiente paso
Los paisajes neutrales permiten estudiar cómo una función puede conservarse mientras cambia la composición genética. Esa exploración puede alterar las posibilidades de respuesta futura, incluso cuando el fenotipo observado permanece estable.
La conectividad identifica rutas posibles, pero las probabilidades y los tiempos dependen de reglas de mutación, reproducción y observación. Una caminata, una población reproductiva y un registro de movimientos aceptados pueden ocupar de manera distinta el mismo grafo.
La accesibilidad también depende del régimen. Restringir la dinámica a pasos ascendentes produce un conjunto de rutas; permitir deriva, recombinación o cambios ambientales produce otro. No existe una clasificación universal de caminos independiente del proceso.
Los experimentos de repetición ayudan a estudiar contingencia al comparar probabilidades desde distintos estados históricos. Su fuerza está en conectar antecedentes con consecuencias dentro del dominio de las condiciones ensayadas.
Una explicación evolutiva completa debe conservar posibilidad, probabilidad y realización como niveles distintos. Que un rasgo pudiera aparecer no demuestra cómo apareció; la sola observación tampoco identifica por qué esa ruta prevaleció.
El siguiente capítulo ampliará la comparación de explicaciones. Adaptación, subproductos y restricciones pueden producir características parecidas en el presente. Para distinguirlas necesitaremos formular predicciones que relacionen función actual, origen histórico y alternativas causales.
Referencias
[1] van Nimwegen, E., Crutchfield, J. P., y Huynen, M. (1999). Neutral evolution of mutational robustness. Proceedings of the National Academy of Sciences, 96(17), 9716–9720. DOI.
[2] Blount, Z. D., Borland, C. Z., y Lenski, R. E. (2008). Historical contingency and the evolution of a key innovation in an experimental population of Escherichia coli. Proceedings of the National Academy of Sciences, 105(23), 7899–7906. DOI.