Módulo 27. Evolución, variación y restricciones
266.1. Entre una secuencia y una característica hay un proceso
Una secuencia genética no se transforma directamente en una característica observable. Intervienen expresión, interacciones moleculares, organización celular, desarrollo y condiciones ambientales. El llamado mapa genotipo–fenotipo resume esa relación, pero la palabra «mapa» no debe ocultar los procesos que la construyen.
El genotipo describe información genética a una resolución determinada. Puede referirse a una variante, a varios loci o a un genoma completo. El fenotipo es una característica observable (actividad de una proteína, forma de un órgano, trayectoria de crecimiento o respuesta conductual), también definida a cierta resolución.
A una resolución dada, dos organismos pueden compartir el genotipo considerado y diferir en posiciones no medidas. También pueden compartir una categoría fenotípica y diferir en características que el ensayo no registra. Una relación muchos a uno puede reflejar tanto propiedades biológicas como decisiones de clasificación.
Para estudiar una característica y, conviene escribir una relación que incluya genotipo g, ambiente E y condiciones de desarrollo. Si interviene variación no controlada, podemos sustituir la función única por la distribución condicional
Esta expresión no afirma que todos los factores sean conocidos. Recuerda que el mismo genotipo puede producir resultados distintos según el contexto y la historia. La incertidumbre puede proceder de fluctuaciones biológicas, variables omitidas o error de medida; esas fuentes requieren tratamientos diferentes.
El problema evolutivo añade otra transformación, la que lleva del fenotipo a la supervivencia y la reproducción. Un mapa entre genotipo y fenotipo no es todavía un paisaje de aptitud, que requiere incorporar ambiente, interacciones y consecuencias reproductivas.
Los ejemplos de este capítulo son modelos didácticos que permiten distinguir interacción genética, plasticidad, estabilidad del desarrollo y asociación estadística. No representan un mecanismo universal ni sustituyen los datos necesarios para estudiar un rasgo concreto.
Hacer explícito el mapa transforma preguntas vagas en comparaciones precisas. Podemos preguntar qué cambia al modificar un locus, si el efecto depende de otro locus, qué ocurre al alterar el ambiente y cuánto importa el momento de la perturbación.
Estas preguntas conectan evolución y desarrollo sin reducir una disciplina a la otra. La evolución modifica frecuencias y sistemas de transmisión; el desarrollo participa en la generación de las variantes sobre las que pueden actuar esos procesos.
266.2. Un mapa mínimo con interacción entre loci
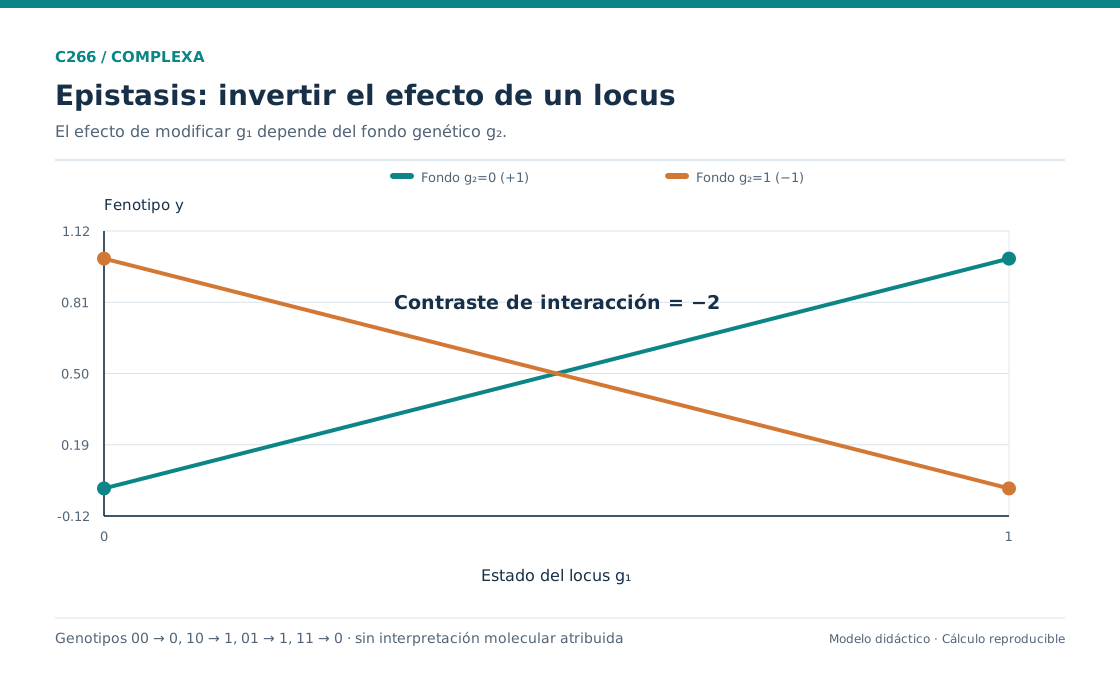
Consideremos dos posiciones binarias, g uno y g dos, que pueden tomar valores cero o uno. Definamos un fenotipo numérico mediante la regla
El genotipo 00 produce cero; 10 y 01 producen uno; 11 vuelve a producir cero. Esta regla sencilla muestra que el efecto de un cambio depende del fondo genético.
Si cambiamos el primer locus de cero a uno cuando el segundo vale cero, el fenotipo aumenta una unidad. Si hacemos el mismo cambio cuando el segundo vale uno, el fenotipo disminuye una unidad. No existe un efecto único del primer locus independiente del segundo.
La interacción puede cuantificarse comparando el cambio doble con la suma de los cambios individuales. En este ejemplo, el contraste es cero menos uno menos uno más cero, igual a menos dos. El término de interacción impide describir el mapa mediante efectos aditivos constantes.
Este tipo de dependencia se denomina epistasis en el contexto del mapa considerado. Hay que indicar la variable, porque puede haber epistasis para actividad enzimática, crecimiento o reproducción con patrones que no tienen por qué coincidir.
Supongamos que la aptitud aumenta con y. Entonces 10 y 01 tendrán mayor aptitud que 00 y 11. Si el ambiente favorece, en cambio, valores bajos de y, la clasificación se invierte. El mapa genotipo–fenotipo permanece igual mientras cambia el mapa fenotipo–aptitud.
También podríamos situar la aptitud máxima en un valor intermedio de un rasgo continuo. En ese caso, una modificación que siempre aumenta el rasgo puede mejorar o empeorar la reproducción según el punto de partida. Una interacción en aptitud puede surgir de una transformación no lineal aunque el rasgo se construya aditivamente.
La interacción depende también de la escala de medida; si medimos una cantidad y luego tomamos su logaritmo, las relaciones aditivas pueden cambiar. Por tanto, un término de interacción estadística puede aparecer sin que exista un contacto molecular directo entre productos génicos.
Para investigar un mecanismo necesitamos intervenciones y mediciones adecuadas. El contraste de los cuatro genotipos demuestra dependencia de efectos bajo las condiciones del ensayo. La explicación de esa dependencia puede requerir estudiar estabilidad de proteínas, regulación, recursos compartidos u otros procesos.
El ejemplo también enseña por qué una variante no lleva una etiqueta funcional invariable. Su efecto se define en una comparación entre estados, en un fondo genético y un ambiente determinados. Omitir esos elementos convierte una estimación contextual en una propiedad aparentemente universal.
266.3. El desarrollo como dinámica
Un mapa estático puede obtenerse a partir de una dinámica de desarrollo. Supongamos que una variable interna z tiene una tasa de producción a y una tasa de eliminación proporcional a su cantidad, de modo que
Si a permanece constante, la solución se aproxima a z igual a a. Diferentes condiciones iniciales pueden converger al mismo resultado final. Un ensayo que mide únicamente el estado tardío resumiría esa dinámica mediante el mapa z final igual a a.
La convergencia no implica que las trayectorias sean idénticas. Dos organismos pueden alcanzar el mismo resultado en tiempos distintos o pasar por estados intermedios diferentes. Si una función depende de esos estados transitorios, el fenotipo relevante debe incluir la trayectoria.
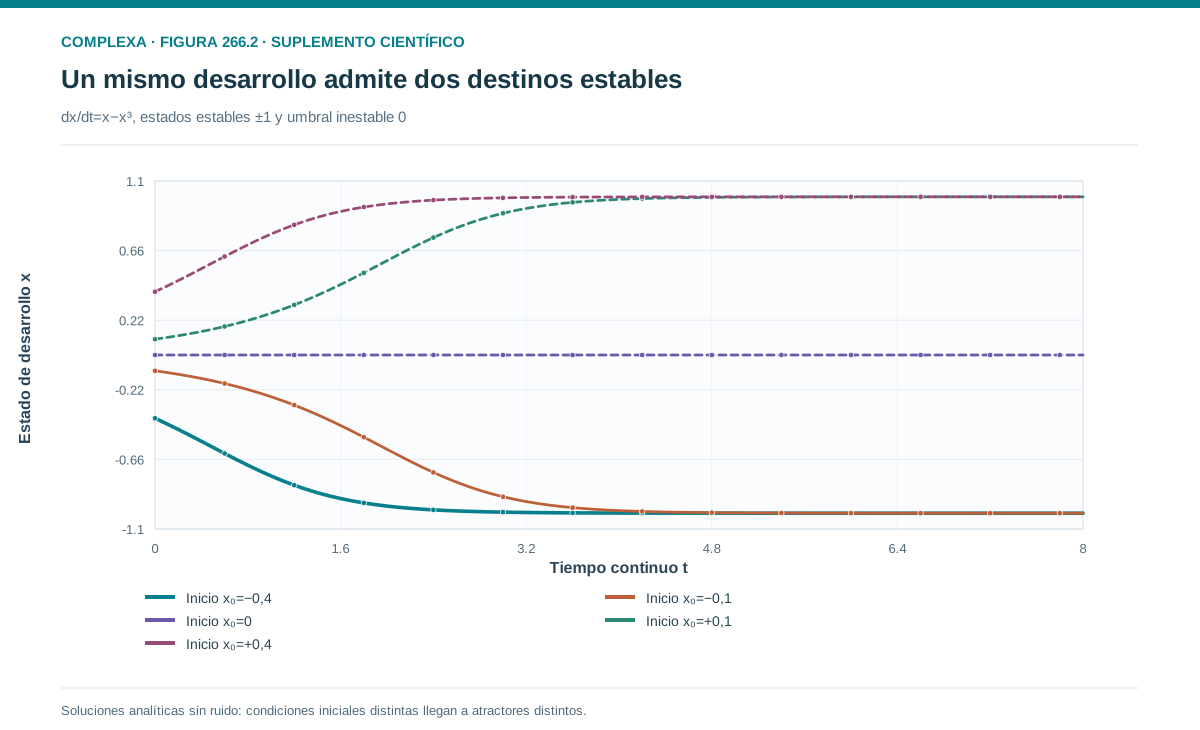
Un modelo algo distinto puede admitir varios resultados estables. Consideremos una variable centrada x, que representa una diferencia de actividades y puede tomar valores negativos, con la dinámica
Los estados menos uno y uno son estables, mientras que cero es inestable. Una condición inicial positiva se dirige hacia uno; una negativa, hacia menos uno. El mapa final depende aquí de la historia. Si solo registramos los parámetros y omitimos la condición inicial, parecerá que un mismo sistema produce resultados contradictorios; al incorporar la cuenca de atracción, la descripción recupera coherencia.
Una perturbación pequeña dentro de una cuenca puede desaparecer durante el desarrollo, mientras que una que cruza la frontera puede cambiar el resultado final. La robustez depende, además de la existencia de estados estables, de la magnitud, la dirección y el momento de la perturbación.
Los modelos de redes reguladoras permiten estudiar estas propiedades con múltiples variables. Von Dassow y colaboradores analizaron un modelo de la red de polaridad segmentaria de Drosophila y encontraron que la red generaba el patrón en conjuntos amplios de parámetros [1]. Ese resultado computacional relaciona la organización de la red con la tolerancia paramétrica, aunque no demuestra robustez ilimitada frente a cualquier perturbación.
La interpretación de un modelo de desarrollo exige comparar sus variables con observaciones. Un atractor matemático, o un valle en un paisaje dibujado, puede representar una configuración estable de expresión, pero su correspondencia con estados celulares reales debe justificarse.
También debemos distinguir estabilidad dinámica de estabilidad evolutiva. La primera describe la respuesta de un sistema de desarrollo a perturbaciones; la segunda puede referirse a la persistencia de variantes en una población. Son problemas conectados, pero sus variables y criterios son diferentes.
La dinámica lineal permite calcular cuánto tarda en desaparecer una diferencia inicial. Si dos trayectorias comparten a, su separación se multiplica por la exponencial de menos t. Después de una unidad temporal conservan aproximadamente 0,3679 de la diferencia; después de tres, alrededor de 0,0498.
Si el ensayo distingue diferencias mayores que un cinco por ciento del valor inicial, ambas trayectorias parecerán equivalentes después de unas tres unidades. La equivalencia observada depende así de la relajación del sistema y de la resolución del instrumento. Un mapa experimental puede agrupar estados que siguen siendo matemáticamente distintos.
En la dinámica con dos estados estables, la derivada de la función de cambio vale menos dos en ambos extremos y uno en el origen. El signo negativo explica la recuperación local alrededor de los estados finales; el positivo explica la separación de trayectorias próximas al origen.
Esta comprobación local no describe toda perturbación posible. Una desviación suficientemente grande, o un cambio sostenido, puede llevar el sistema a la otra cuenca aunque se recupere de las fluctuaciones pequeñas.
266.4. Umbrales y variación oculta por la medición
Supongamos que un ensayo clasifica una característica como presente cuando una actividad z supera un umbral de diez unidades. Dos genotipos producen actividades medias de doce y veinte. Ambos reciben la misma etiqueta fenotípica, aunque su distancia al umbral sea distinta.
Una perturbación que reduzca la actividad en cinco unidades cambia la clasificación del primer genotipo y deja intacta la del segundo. La categoría había ocultado una diferencia cuantitativa relevante.
La robustez observada puede depender del criterio de clasificación. Si el umbral se modifica o si medimos la actividad continua, el mismo conjunto de genotipos mostrará otra estructura de equivalencias. No toda neutralidad fenotípica implica identidad de los procesos internos.
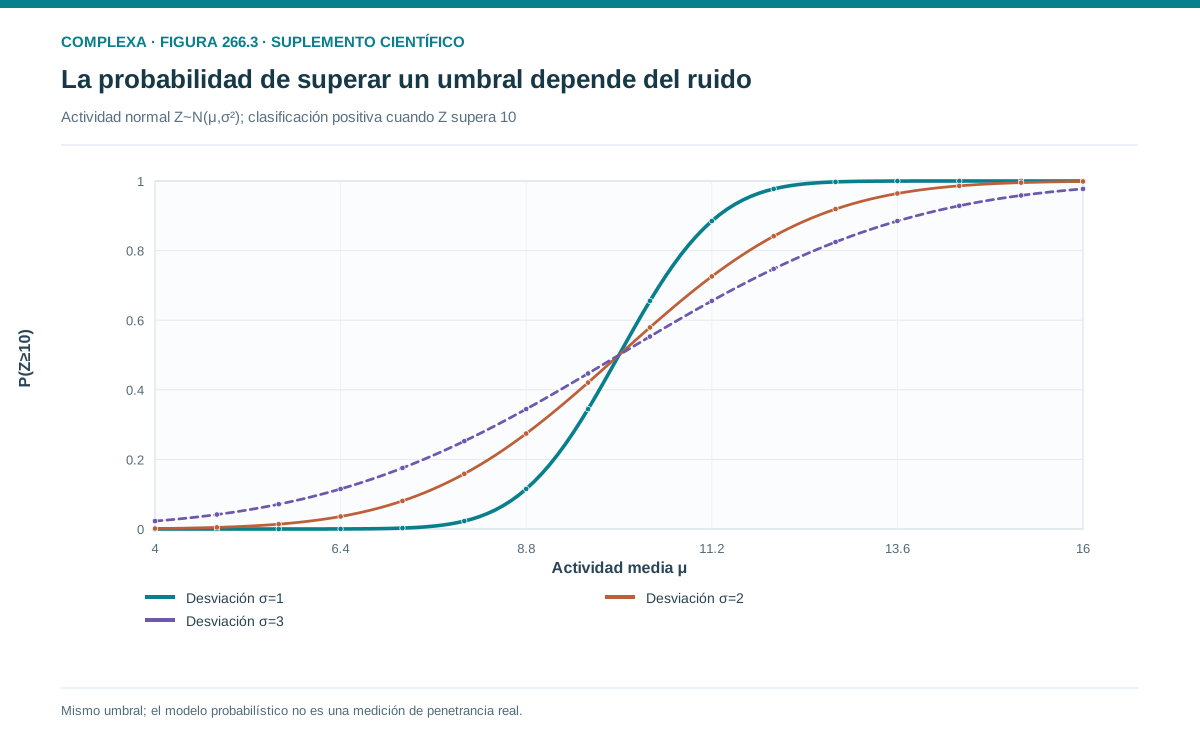
Consideremos ahora una actividad con fluctuaciones alrededor de su media. Una media cercana al umbral puede producir resultados variables entre réplicas. El fenotipo categórico se describe entonces mediante la probabilidad de superar el umbral.
Si esas fluctuaciones son normales con desviación estándar dos, una media de diez da una probabilidad de presencia de un medio y una media de doce, aproximadamente 0,8413. La diferencia entre resultados puede surgir de un desplazamiento gradual de la actividad, aunque la clasificación individual sea binaria.
Si solo conocemos la proporción de individuos con el rasgo, no podemos saber si cambió la media, la variabilidad o el umbral efectivo, porque diferentes mecanismos pueden producir la misma proporción. Medir la variable subyacente ayuda a distinguirlos.
Este ejemplo es útil para pensar en la penetrancia, es decir, la proporción de portadores de un genotipo que expresan un fenotipo bajo condiciones especificadas. La penetrancia depende de la definición, el ambiente, la edad y otros factores; no es necesariamente una constante universal de una variante.
También permite separar la variación biológica del error de medida. Si el instrumento es impreciso cerca del umbral, parte de la variabilidad categórica puede proceder del ensayo. Las repeticiones técnicas y las observaciones longitudinales dan información diferente sobre esas fuentes.
La inferencia debe conservar el nivel continuo cuando sea relevante. Transformar una medida en una categoría puede facilitar decisiones, pero reduce la información sobre magnitudes y distancias. Esa pérdida debe considerarse al comparar mapas de desarrollo o al buscar mecanismos de cambio.
266.5. Plasticidad y normas de reacción
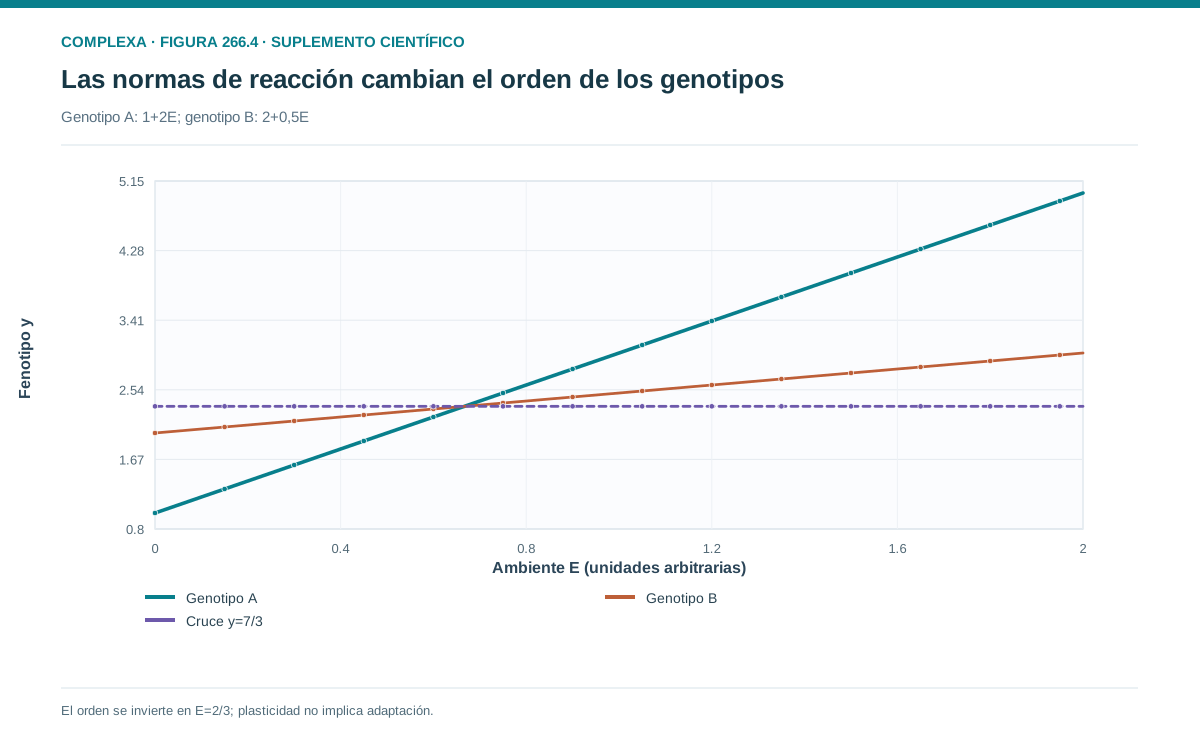
La plasticidad fenotípica es la producción de fenotipos diferentes por un mismo genotipo en ambientes distintos. Una norma de reacción describe esa relación a lo largo de un conjunto definido de ambientes.
Consideremos dos genotipos con respuestas lineales. El primero produce y igual a uno más dos veces E; el segundo produce y igual a dos más la mitad de E. La variable ambiental E se mide en unidades arbitrarias dentro de un intervalo experimental.
Cuando E vale cero, el segundo genotipo tiene un valor fenotípico mayor (dos frente a uno). Cuando E vale uno, el primero alcanza tres y el segundo 2,5. Las normas de reacción se cruzan cuando E es dos tercios.
No existe, por tanto, una clasificación fenotípica de los genotipos independiente del ambiente, porque el efecto de cambiar de genotipo depende de dónde se mida. Esa dependencia es una interacción genotipo por ambiente.
La plasticidad tampoco es sinónimo de adaptación. Una respuesta ambiental puede mejorar la reproducción, empeorarla o no afectarla bajo las condiciones consideradas. Para evaluar su carácter adaptativo hay que comparar consecuencias y alternativas, además de observar que el organismo cambia.
Una respuesta puede ser útil en un ambiente y costosa en otro. También puede depender de señales que normalmente predicen condiciones futuras pero dejan de hacerlo tras un cambio ambiental. La relación entre señal, respuesta y consecuencia requiere datos propios.
El experimento debe distinguir exposición de selección. Si al final de una condición solo sobreviven ciertos individuos, una diferencia entre grupos puede reflejar tanto una respuesta plástica como un cambio en la composición de la muestra. Medir trayectorias individuales o controlar el diseño ayuda a separar ambos procesos.
Las normas de reacción pueden ser no lineales y depender de la edad. Una intervención temprana y otra tardía, aunque tengan igual intensidad, pueden producir efectos diferentes. La historia ambiental completa puede importar más que un promedio.
La plasticidad también puede evolucionar si existen diferencias heredables entre normas de reacción y consecuencias reproductivas. En ese caso se compara la función de respuesta en distintos contextos, además del valor del rasgo en un ambiente particular. Esa distinción permite comprender por qué un sistema puede conservar su organización y producir resultados variados sin cambiar de secuencia genética durante la vida del individuo.
266.6. Heredabilidad y causalidad responden a preguntas diferentes
La heredabilidad es una propiedad estadística de la variación en una población y un conjunto de ambientes. No expresa qué fracción de un individuo está causada por sus genes ni cuánto puede modificarse un rasgo mediante una intervención.
Consideremos un modelo didáctico con un componente genético G y un residuo independiente R, de modo que y es G más R. Supongamos que G toma valores cero y uno con igual probabilidad; su varianza es un cuarto.
Si la varianza residual es tres cuartos, la varianza total es uno y la proporción atribuida a la variación genética es 0,25. Si reducimos la varianza residual a un cuarto sin cambiar G, esa proporción aumenta a 0,5.
El efecto causal de pasar de G igual a cero a G igual a uno sigue siendo una unidad en ambos casos. Lo que cambió fue la composición de la variación poblacional. La comparación muestra por qué una proporción de varianza no equivale a una medida universal de fuerza causal.
También podemos desplazar por igual el ambiente de todos los individuos y modificar la media del rasgo sin añadir variación ambiental entre ellos. Una intervención puede tener un efecto grande sobre la media aunque contribuya poco a las diferencias observadas dentro de una población.
En modelos más realistas deben distinguirse componentes aditivos, dominancia, interacción y covarianzas. La heredabilidad en sentido estricto usa la varianza genética aditiva, mientras que otras definiciones incluyen componentes adicionales. La fórmula y el diseño de estimación deben acompañar al término.
La independencia entre genes y ambiente tampoco puede darse por supuesta. Si ciertos genotipos se encuentran con mayor frecuencia en determinados ambientes, una asociación puede mezclar contribuciones. Identificar efectos requiere un diseño que trate esa estructura.
Una heredabilidad alta no demuestra inmutabilidad; una baja no demuestra ausencia de mecanismos genéticos. Ambas inferencias confunden la variación observada bajo condiciones particulares con las posibilidades de intervención y con los requisitos del desarrollo.
La misma cautela se aplica a las comparaciones entre poblaciones. Una estimación dentro de un grupo no explica automáticamente las diferencias de medias entre grupos expuestos a historias y ambientes distintos; esa extrapolación exige supuestos y evidencia adicionales.
El mapa genotipo–fenotipo ayuda a formular relaciones causales, mientras que una descomposición de varianza resume diferencias en una muestra. Usar ambos enfoques puede ser productivo siempre que se mantenga claro qué pregunta responde cada uno.
Podemos mostrar la diferencia entre asociación e intervención mediante un ejemplo completamente especificado. Supongamos que el rasgo sigue la regla y igual a G más dos veces E, con G y E binarios. Cambiar G de cero a uno manteniendo E fijo aumenta siempre el rasgo una unidad.
Imaginemos ahora una muestra en la que todos los individuos con G igual a uno se encuentran en E igual a uno y todos los que tienen G igual a cero, en E igual a cero. La diferencia observada entre grupos es de tres unidades. Atribuirla íntegramente a G triplicaría el efecto definido por la regla causal.
Con esos datos faltan las combinaciones cruzadas, de modo que no podemos separar empíricamente el efecto de G del de E sin información adicional. El problema no se resuelve aumentando indefinidamente el número de individuos dentro de las mismas dos combinaciones; se obtendría una asociación más precisa, pero seguiría faltando la comparación necesaria.
Si medimos las cuatro combinaciones bajo condiciones comparables, recuperamos una diferencia genética de una unidad y una diferencia ambiental de dos. El ejemplo, aunque es más simple que una población real, identifica una limitación lógica que también puede aparecer en diseños mucho mayores.
La calidad de una inferencia depende así de qué contrastes contiene el diseño, además de cuántas observaciones recoge.
266.7. Pleiotropía, módulos y compensaciones
Una modificación genética puede afectar a varias características. Esa multiplicidad de efectos se denomina pleiotropía, pero su alcance depende de qué rasgos se midan, con qué sensibilidad y en qué ambientes.
Supongamos que una modificación aumenta la producción de una enzima y también consume recursos necesarios para el crecimiento, de modo que puede mejorar una función y reducir otra. La consecuencia reproductiva depende de cómo esas funciones contribuyan al desempeño en el ambiente.
Una lista de efectos no establece que exista una compensación inevitable. Si dos rasgos se correlacionan negativamente en una muestra, la relación podría deberse a una restricción de recursos, a estructura poblacional o a variables no medidas. Una compensación mecanística requiere identificar qué impide mejorar ambos simultáneamente.
La organización modular puede limitar la propagación de algunas perturbaciones. Un cambio en un componente puede afectar principalmente a un conjunto de funciones y dejar otras relativamente estables. Sin embargo, los módulos no tienen que ser totalmente independientes ni coincidir con fronteras anatómicas evidentes.
Una red reguladora admite varios niveles de descripción. Podemos definir módulos por conectividad, por respuesta a perturbaciones o por covariación de rasgos; esas particiones pueden diferir. La definición elegida debe corresponder a la pregunta que se quiere resolver.
En términos evolutivos, las covariaciones de efectos mutacionales influyen en qué combinaciones de rasgos aparecen con mayor probabilidad. Si casi todas las mutaciones cambian dos rasgos conjuntamente, ciertas direcciones fenotípicas pueden ser poco accesibles, aunque resultarían ventajosas si existieran.
Eso no significa que una dirección sea imposible para siempre. Duplicaciones, cambios regulatorios o modificaciones del contexto pueden alterar las relaciones entre rasgos. Una restricción observada dentro de un conjunto de variantes no define necesariamente todos los cambios evolutivos posibles.
La modularidad también puede tener costos. Una arquitectura que amortigua perturbaciones locales puede limitar la coordinación entre funciones. No hay una regla general según la cual mayor modularidad produzca siempre mayor adaptación o mayor capacidad de innovación.
El análisis debe conectar arquitectura, perturbación y resultado. Conviene preguntar qué modificaciones se aplicaron, qué funciones cambiaron y cuáles permanecieron estables, sin atribuir una propiedad global al organismo. Esa descripción permite comparar mecanismos y evita convertir una metáfora organizativa en explicación suficiente.
266.8. Diseños experimentales para reconstruir el mapa
El mapa completo de todos los genotipos y ambientes suele ser demasiado grande para medirse exhaustivamente. La investigación trabaja con regiones, perturbaciones y niveles seleccionados. El reto es elegir comparaciones que respondan a una pregunta concreta sin exagerar su alcance.
Un diseño factorial de dos loci requiere medir los cuatro genotipos en condiciones comparables. Así puede estimarse si el efecto de una modificación cambia según la presencia de la otra. Si falta uno de los genotipos, ciertas interacciones quedan sin identificar.
Al incorporar ambientes, el diseño debe repetir esos genotipos en cada condición pertinente. Las réplicas permiten estimar la variación y separar diferencias sistemáticas de fluctuaciones. El número de réplicas necesario depende del tamaño de efecto y de la precisión buscada.
El trabajo de Weinreich y colaboradores sobre combinaciones de mutaciones en una betalactamasa mostró cómo la dependencia entre efectos puede restringir rutas de mejora en un sistema experimental concreto [2]. Desde el punto de vista metodológico, el estudio midió las combinaciones directamente, sin inferir el conjunto solo a partir de mutaciones aisladas.
No debemos generalizar desde una proteína y un ensayo hacia todos los rasgos. La accesibilidad depende de la variable usada para ordenar los resultados, del ambiente y de las mutaciones incluidas. Las rutas no medidas siguen siendo una fuente de incertidumbre.
Los cambios dirigidos permiten comparar estados definidos, pero pueden tener efectos secundarios. Hay que confirmar la modificación, controlar el fondo y verificar que la medición corresponde al mecanismo propuesto. Una intervención no es informativa solo por ser precisa en su objetivo nominal.
Las series temporales añaden otra dimensión. Dos genotipos pueden compartir el mismo resultado final y diferir en tiempo de activación, variabilidad o respuesta a una perturbación intermedia; si solo medimos el final, esas diferencias desaparecen.
Las mediciones en distintos niveles (secuencia, expresión, actividad, organización celular y función) ayudan a localizar mecanismos. La correlación entre niveles no demuestra toda la cadena causal, pero intervenciones bien elegidas pueden restringir explicaciones alternativas.
Un mapa empírico debe acompañarse de su dominio, es decir, de los genotipos, ambientes, edades y ensayos incluidos. Fuera de ese dominio, las predicciones del modelo son extrapolaciones cuya validez debe evaluarse.
266.9. Del ajuste estadístico a la explicación mecanística
Un modelo predictivo puede estimar fenotipos a partir de variantes sin representar los procesos de desarrollo. Esa capacidad puede ser útil, pero no equivale a identificar el mecanismo. La distinción se vuelve necesaria cuando queremos intervenir o extrapolar a condiciones nuevas.
Supongamos que una combinación de marcadores predice una actividad en una población. Los marcadores pueden estar asociados con variantes causales sin ser ellos mismos responsables del efecto. Si cambia la estructura de asociaciones, la predicción puede perder precisión.
Un modelo mecanístico propone relaciones entre componentes y permite calcular las consecuencias de modificaciones. También contiene aproximaciones y parámetros inciertos. Su interpretación causal depende de que las variables y las intervenciones representen adecuadamente el sistema real.
No hay una oposición obligatoria entre ambos enfoques. Un modelo estadístico puede señalar patrones que orienten experimentos; un modelo mecanístico puede sugerir variables que mejoren la predicción. El riesgo está en atribuir a una herramienta conclusiones que su diseño no permite.
La validación fuera de la muestra debe corresponder al uso previsto. Predecir nuevos individuos del mismo contexto es diferente de predecir nuevos genotipos, nuevos ambientes o perturbaciones nunca observadas.
La incertidumbre puede crecer rápidamente cuando se combinan varias extrapolaciones. Un modelo entrenado en un ambiente y un fondo genético no tiene garantizada precisión en otro ambiente y otro fondo; las interacciones estudiadas en este capítulo explican por qué esa transferencia puede fallar.
La interpretabilidad tampoco se reduce a asignar una importancia a cada variable. Si hay interacción, una importancia promedio puede ocultar efectos opuestos en contextos diferentes. Conviene examinar contrastes condicionales y comprobar si corresponden a intervenciones realizables.
Una explicación convincente debe generar predicciones que distingan mecanismos. Si dos modelos reproducen los mismos datos disponibles, una nueva perturbación puede separarlos. El experimento más informativo no siempre es el que recoge más observaciones del mismo tipo.
La precisión verbal debe acompañar a la precisión numérica. Decir que un marcador se asocia, que una intervención modifica o que una red reproduce un patrón expresa grados distintos de evidencia. Mantener esas diferencias permite integrar resultados sin convertir asociaciones en causas por acumulación retórica.
266.10. La variación depende de cómo se produce
El mapa genotipo–fenotipo organiza la relación entre información genética y características observables, pero esa relación depende del desarrollo, el ambiente, la historia y la resolución de medida. Un genotipo no especifica necesariamente un único resultado bajo cualquier condición.
La interacción entre loci muestra que el efecto de una variante puede cambiar con el fondo genético; la plasticidad muestra que también puede cambiar con el ambiente. Los umbrales y la dinámica de desarrollo explican por qué modificaciones graduales pueden producir resultados categóricos o dependientes de la historia.
Estas propiedades influyen en la variación disponible para la evolución. Algunas modificaciones conservan funciones, otras afectan varios rasgos y otras permiten acceder a resultados que antes eran poco probables. La distribución de efectos no surge de una lista abstracta de variantes independientes.
Las medidas estadísticas resumen aspectos de esa variación, pero no sustituyen una explicación causal. La heredabilidad depende de la población y los ambientes; una asociación predictiva no identifica automáticamente un mecanismo; una categoría fenotípica puede ocultar diferencias internas.
El estudio de estos mapas exige combinar definiciones claras, perturbaciones controladas y mediciones en niveles pertinentes. Los modelos ayudan a conectar esas observaciones siempre que sus límites se mantengan visibles.
El próximo capítulo usará estas ideas para estudiar la robustez mutacional y la capacidad de generar variación. La aparente tensión entre conservar una función y producir novedades se vuelve más precisa cuando distinguimos genotipos individuales, conjuntos de genotipos y propiedades del mapa que los conecta.
Referencias
[1] von Dassow, G., Meir, E., Munro, E. M., y Odell, G. M. (2000). The segment polarity network is a robust developmental module. Nature, 406, 188–192. DOI.
[2] Weinreich, D. M., Delaney, N. F., DePristo, M. A., y Hartl, D. L. (2006). Darwinian evolution can follow only very few mutational paths to fitter proteins. Science, 312(5770), 111–114. DOI.