Módulo 27. Evolución, variación y restricciones
264.1. La persistencia de una variante no explica su origen
Una variante que reduce la reproducción puede permanecer en una población. Esa observación no es una paradoja si nuevas copias aparecen por mutación, si la selección es débil, si sus efectos dependen del contexto o si intervienen fluctuaciones demográficas. Para explicar una frecuencia necesitamos describir entradas, salidas y transmisión, además de comparar contribuciones reproductivas.
El equilibrio entre mutación y selección es un primer modelo de esa persistencia. La mutación introduce variantes y la selección modifica sus frecuencias según sus consecuencias reproductivas. Cuando ambas contribuciones se compensan, la frecuencia puede mantenerse constante aunque los individuos y las copias génicas se renueven continuamente.
Conviene distinguir esa compensación de una estabilidad material, porque ningún conjunto de copias permanece intacto. Una frecuencia estacionaria puede corresponder a un flujo intenso de pérdidas y nuevas apariciones; una única fotografía de la población no muestra la velocidad de ese recambio.
Tampoco debemos tomar la presencia de una variante como prueba de que es beneficiosa, porque la ventaja adaptativa es solo una explicación entre varias. El equilibrio mutación–selección es una alternativa explícita, con parámetros y predicciones que pueden contrastarse.
Haldane estudió matemáticamente la relación entre selección y mutación en su trabajo de 1927 [1]. Aquí construiremos ejemplos propios para separar resultados exactos, aproximaciones de baja frecuencia y situaciones donde el equilibrio deja de ser una descripción adecuada. Las cifras que usaremos son didácticas; no son estimaciones para ninguna especie concreta.
Nuestro punto de partida será una población haploide con dos tipos, A y a. La variante a tendrá una contribución reproductiva menor en el ambiente considerado. Después incorporaremos mutación inversa, diploidía, cambios ambientales y tamaño finito. Cada modificación exige revisar qué variable se mide y en qué momento del ciclo.
En este capítulo, «perjudicial» significa solo que una variante tiene menor contribución esperada a la reproducción bajo las condiciones del modelo. El término no expresa inferioridad general, valor moral ni necesariamente enfermedad. Un efecto sobre la reproducción tampoco equivale automáticamente a un efecto sobre el bienestar individual.
Esa precisión es necesaria cuando estos conceptos se aplican a características humanas. Una frecuencia genética, un rasgo observable y una categoría clínica pertenecen a niveles diferentes. El modelo puede ayudar a formular preguntas, pero no autoriza a intercambiar esos niveles sin evidencia.
264.2. Un ciclo explícito de selección y mutación
Llamemos q a la frecuencia de a antes de la selección. Asignemos a A una contribución relativa igual a uno y a a una contribución igual a uno menos s, con s entre cero y uno. La contribución media será uno menos s por q.
Después de la selección, la frecuencia de a es
La expresión compara el aporte de a con el aporte total. Si q está entre cero y uno y s es positivo, la selección reduce su frecuencia. En los extremos, una población formada por un solo tipo no cambia de composición si solo actúa la selección.
Supongamos ahora que una copia A se transforma en a con probabilidad u y que no existe mutación inversa. La mutación ocurre después de la selección. La nueva frecuencia es la suma de las copias a que ya estaban presentes y de las nuevas copias procedentes de A
Especificar el orden evita ambigüedades. Una frecuencia medida antes de la mutación no es idéntica a otra medida después. Aunque las diferencias sean pequeñas cuando las tasas son bajas, pueden afectar a una derivación exacta o a una comparación entre experimentos.
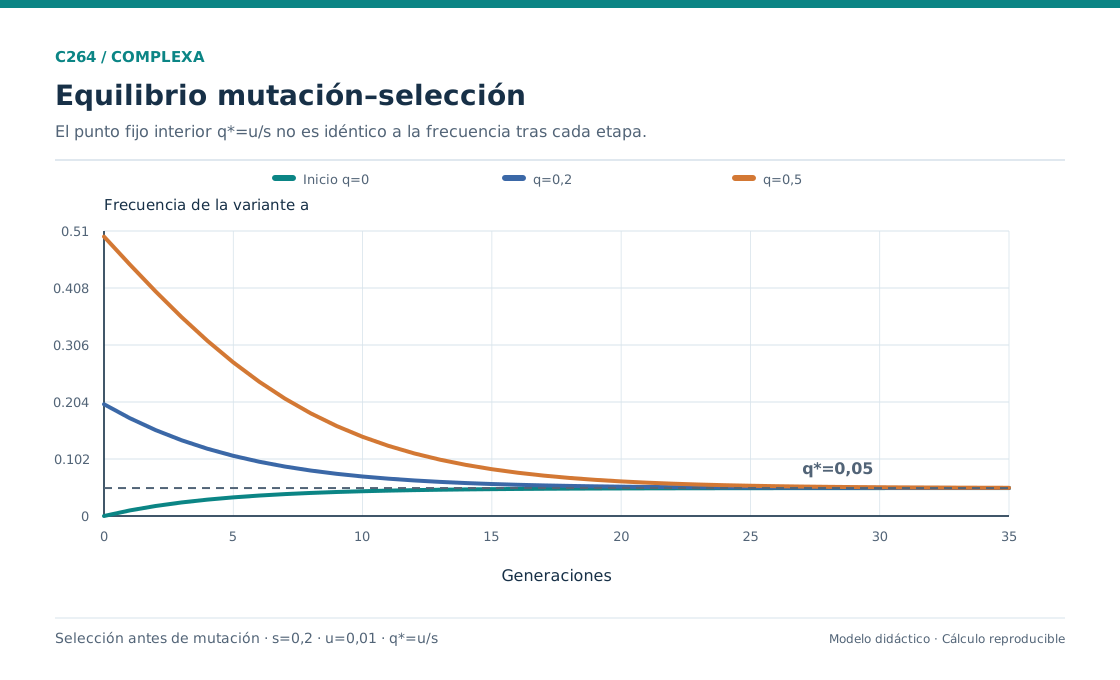
Consideremos s igual a 0,2 y u igual a 0,01. Si la frecuencia inicial es cero, la primera generación posterior a la mutación tiene frecuencia 0,01. En la siguiente, la selección reduce esa proporción antes de que aparezcan nuevas copias. El resultado se aproxima gradualmente a un valor positivo.
Si comenzamos con q igual a 0,5, la selección produce cuatro novenos, aproximadamente 0,4444. La mutación añade 0,01 de la fracción restante, de modo que q siguiente es 0,45. La variante disminuye, aunque más despacio que en ausencia de mutación.
El cambio absoluto por generación es
Esta forma muestra directamente la competencia entre introducción y eliminación. Cuando q es menor que u dividido por s, el cambio es positivo. Cuando supera ese cociente y sigue por debajo de uno, el cambio es negativo. El signo depende de la frecuencia actual, aunque los parámetros permanezcan constantes.
Podemos leer esta ecuación como un balance, es decir, como la contabilidad de los cambios de frecuencia que produce un ciclo reproductivo definido. Imaginar dos fuerzas físicas independientes que empujan partículas llevaría la metáfora mecánica más allá de lo que la formulación permite.
La posición del muestreo dentro del ciclo puede comprobarse con el mismo ejemplo numérico. En el equilibrio posterior a la mutación, q vale 0,05. Después de la selección, la frecuencia baja a 0,04 dividido por 0,99, aproximadamente 0,040404. La mutación añade luego 0,01 de la fracción restante y devuelve el valor a 0,05. Ambas frecuencias pertenecen a una misma población idealizada en momentos distintos.
Si un estudio registra individuos antes de la reproducción y otro registra descendientes después de la mutación, sus estimaciones pueden diferir sin que exista una discrepancia entre poblaciones. Primero habría que alinear las etapas de observación, sobre todo cuando se comparan experimentos con ciclos de cultivo, supervivencia y reproducción diferentes.
También podemos definir otro ciclo, con mutación primero y selección después. Si q se mide inmediatamente después de la selección, la mutación produce una frecuencia intermedia q más u por uno menos q. La selección actúa sobre esa frecuencia intermedia, por lo que la nueva recurrencia tiene una forma distinta.
En ese segundo convenio, el equilibrio interior medido después de la selección es u por uno menos s, dividido por s por uno menos u. Con nuestros parámetros resulta 0,040404. Al medir la misma trayectoria justo después de la mutación recuperamos 0,05. La aparente diferencia entre fórmulas se debe aquí al punto de observación dentro del ciclo.
Esta equivalencia no autoriza a intercambiar cualquier par de procesos. Cuando cambian las reglas biológicas o se insertan otras etapas, el orden puede modificar propiedades adicionales. La comprobación debe hacerse escribiendo las transformaciones y siguiendo una población durante el ciclo completo.
Por tanto, un registro experimental debería indicar, junto con la generación, la etapa en que se mide (antes de la selección, después de la reproducción o después de la transmisión). La escala temporal y la definición de la muestra forman parte de la variable. Un modelo exacto aplicado a una variable mal identificada puede producir una inferencia incorrecta aunque todos sus cálculos estén bien hechos.
264.3. Equilibrio, estabilidad y velocidad de aproximación
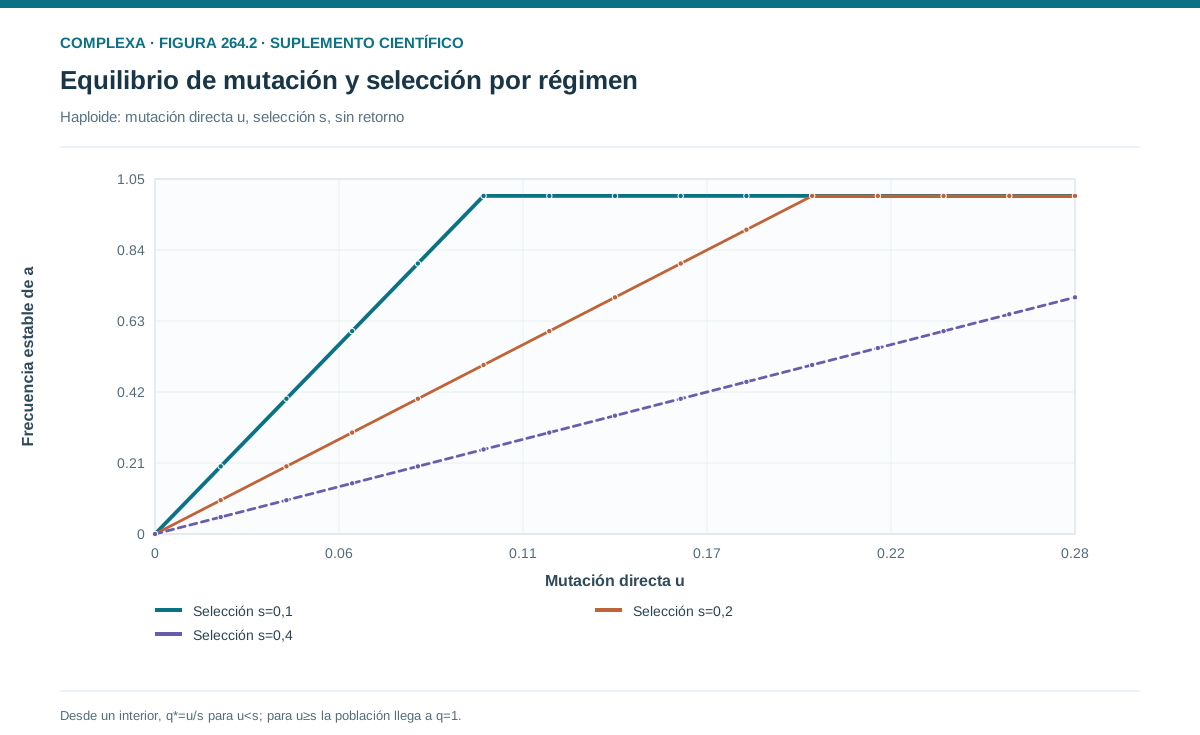
Si u es menor que s, el modelo anterior tiene un equilibrio interior
En este ciclo haploide concreto, el resultado es exacto, ya que todavía no hemos usado una aproximación de selección débil. Con u igual a 0,01 y s igual a 0,2, la frecuencia de equilibrio es 0,05.
Existe además el equilibrio q igual a uno. Si todas las copias son a y no hay mutación inversa, A no puede reaparecer. Por tanto, no debemos afirmar que cualquier condición inicial converge al equilibrio interior. Una población situada exactamente en el extremo permanece allí en este modelo determinista.
Desde una frecuencia interior, el signo del cambio orienta la trayectoria hacia 0,05. Esa estabilidad indica que la eliminación relativa se compensa con la aparición recurrente de nuevas copias; la variante sigue siendo seleccionada negativamente.
La rapidez de aproximación es otra cuestión. La derivada de la función de actualización, evaluada en el equilibrio interior, es
Con nuestros parámetros vale aproximadamente 0,8081. Una desviación suficientemente pequeña conserva alrededor del ochenta y uno por ciento de su magnitud después de una generación. La frecuencia se acerca al equilibrio de manera gradual, sin alcanzarlo necesariamente en un número finito de pasos.
La semivida local de una desviación puede aproximarse mediante el cociente entre el logaritmo de un medio y el logaritmo de esa derivada. En este ejemplo resulta cercana a 3,25 generaciones. Como es una propiedad local, no describe con igual precisión las trayectorias que comienzan muy lejos.
Si la mutación supera la desventaja selectiva, el equilibrio interior calculado quedaría fuera del intervalo permitido. En ese caso no debe usarse la fórmula, que daría una frecuencia imposible. Para u mayor que s, las frecuencias interiores aumentan hacia uno bajo estas reglas.
En el caso límite u igual a s, también hay aproximación al extremo desde el interior, pero la dinámica cercana cambia. La derivada en el extremo alcanza uno y la convergencia deja de tener la misma descripción geométrica sencilla. Los límites de parámetros pueden modificar tanto los destinos como las velocidades.
Una frecuencia casi constante durante unas pocas generaciones no prueba que se haya alcanzado un equilibrio. Puede reflejar una dinámica lenta, una resolución de medida insuficiente o fluctuaciones que ocultan una tendencia pequeña. Para distinguir estas posibilidades hacen falta datos temporales y una escala de incertidumbre.
264.4. Mutación inversa y límites que dejan de ser absorbentes
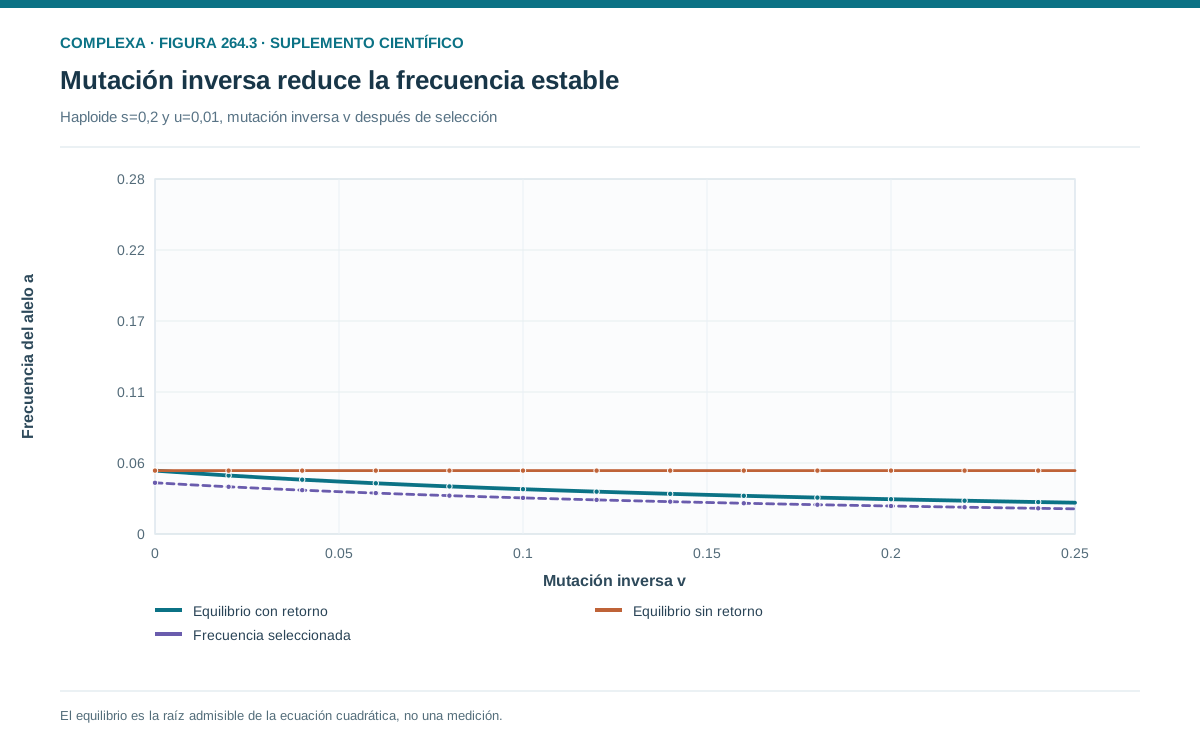
Incorporemos ahora una probabilidad v de que a se transforme en A. Con la mutación después de la selección, la actualización es
El primer término recoge la transformación desde A, mientras que el segundo reorganiza la contribución de las copias presentes después de la selección. La fórmula sigue siendo válida si u y v son probabilidades individuales, aunque su suma puede superar uno; en los ejemplos siguientes usaremos tasas pequeñas.
Con mutación en ambas direcciones, los extremos ya no son estados permanentes. Desde q igual a cero aparecen copias a con frecuencia u. Desde q igual a uno aparecen copias A con frecuencia v, de manera que la siguiente frecuencia de a es uno menos v.
La condición de equilibrio conduce a la ecuación cuadrática
Con s igual a 0,2, u igual a 0,01 y v igual a 0,02, la raíz biológicamente admisible es aproximadamente 0,04613. Es menor que 0,05 porque la mutación inversa añade una vía de salida para a.
La otra raíz queda fuera del intervalo de frecuencias, de modo que, además de resolver la ecuación, hay que elegir las soluciones compatibles con las restricciones del problema. También conviene sustituir la raíz obtenida en la recurrencia original para comprobar que realmente reproduce su propio valor.
Sin selección, la dinámica se reduce a
Si ambas tasas son positivas, el equilibrio es u dividido por la suma de u y v. Con u igual a 0,01 y v igual a 0,02, el resultado es un tercio. La distancia al equilibrio se multiplica por 0,97 en cada generación.
Este caso muestra que un equilibrio no tiene por qué corresponder a una frecuencia pequeña. Una variante puede ser común por la estructura de la transmisión, incluso sin ventaja reproductiva. Del mismo modo, dos variantes con reproducción idéntica pueden tener frecuencias estacionarias muy diferentes si las tasas de transformación son asimétricas.
Cuando u más v supera uno, el coeficiente de la recurrencia neutral es negativo y las desviaciones alternan de signo. Es una posibilidad matemática de este modelo de dos estados, aunque no describe las tasas bajas habituales en muchos ejemplos de mutación puntual. La plausibilidad empírica debe evaluarse aparte.
La mutación inversa también cambia la interpretación de la fijación, porque una población puede ocupar temporalmente un extremo y abandonarlo después. Conviene hablar de visitas, tiempos de residencia y distribución estacionaria cuando la reintroducción de variantes forma parte del proceso.
264.5. Diploidía y el papel de la dominancia
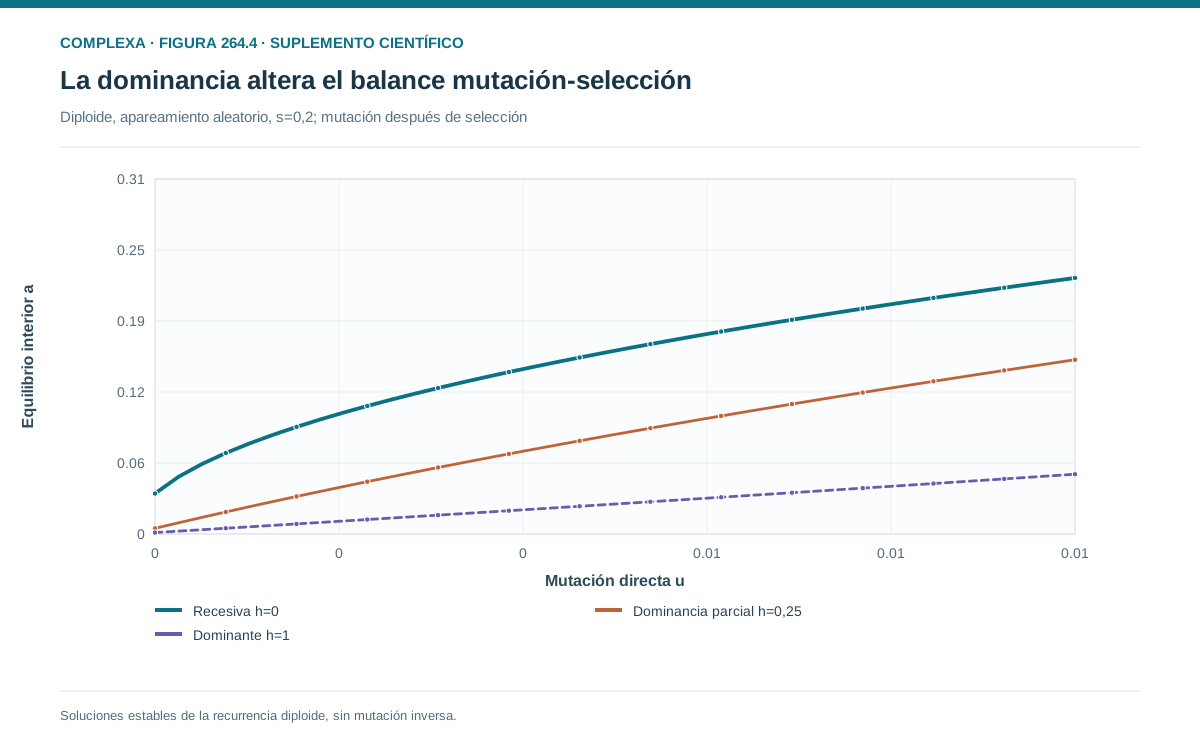
En una población diploide, una copia de a puede encontrarse junto a A o junto a otra copia a. Si las consecuencias reproductivas dependen del genotipo, para obtener el efecto de la selección a partir de la frecuencia alélica hay que especificar también cómo se forman esos genotipos.
Supongamos apareamiento aleatorio y frecuencias de cigotos dadas por Hardy–Weinberg. Asignemos aptitudes relativas uno a AA, uno menos hs a Aa y uno menos s a aa. El parámetro h describe la expresión de la desventaja en heterocigotos dentro de esta parametrización.
La aptitud media es
Después de la selección, la frecuencia alélica resulta
El factor del numerador se debe a que cada heterocigoto aporta una copia a de sus dos copias. El siguiente paso de mutación puede aplicarse a esa frecuencia según el ciclo que se haya especificado.
Cuando a es raro y la selección actúa de manera apreciable en heterocigotos, su eliminación por generación es aproximadamente hs por q. Si la mutación desde A introduce alrededor de u nuevas copias por unidad de frecuencia, el balance aproximado produce q cercano a u dividido por hs.
Si h es cero, esa aproximación falla. La selección solamente distingue a los homocigotos aa, cuya frecuencia es aproximadamente q al cuadrado. El balance de baja frecuencia conduce entonces a
Tomemos u igual a una cienmilésima y s igual a 0,1. Con h igual a 0,5, la aproximación da q igual a 0,0002. Con recesividad completa, da q igual a 0,01. El mismo aporte mutacional puede sostener frecuencias alélicas muy diferentes según la exposición de sus efectos a la selección.
En el segundo caso, la frecuencia aproximada de homocigotos aa es 0,0001, mientras que la de heterocigotos ronda 0,0198. Confundir frecuencia alélica con frecuencia del genotipo afectado produciría un error de dos órdenes de magnitud.
Estas fórmulas solo valen si la variante es suficientemente rara, la población es grande, el apareamiento se ajusta al supuesto y los parámetros son aproximadamente constantes. Una dominancia muy pequeña puede situar el sistema entre los regímenes sencillos. En ese caso conviene resolver la recurrencia completa.
264.6. Carga genética y elección del referente
La carga genética suele expresar la reducción de aptitud media respecto de un referente. En nuestro ejemplo haploide, si el referente tiene aptitud uno, la carga es s por q. En el equilibrio interior sin mutación inversa, esa cantidad es u.
La igualdad puede parecer sorprendente. Aumentar s reduce la frecuencia de la variante y esa reducción compensa su mayor efecto por copia. Se trata, sin embargo, de una propiedad de este modelo y del momento del ciclo en que se miden las frecuencias; no vale como ley universal para cualquier población o definición de aptitud.
Con u igual a 0,01 y s igual a 0,2, el equilibrio q igual a 0,05 produce aptitud media 0,99 antes de la selección. Si s aumenta a 0,5, el equilibrio baja a 0,02 y la misma expresión vuelve a dar 0,99.
Eso no significa que ambos sistemas sean idénticos. Difieren en frecuencia, dinámica de aproximación y consecuencias de un cambio ambiental. Además, si las aptitudes se multiplican por un factor común, las frecuencias evolucionan igual mientras que la reproducción absoluta puede cambiar.
Comparar una población con el genotipo de mayor aptitud disponible no es lo mismo que compararla con un estado hipotético sin mutaciones. En sistemas con compensaciones entre funciones, el supuesto genotipo perfecto puede no existir.
Tampoco debe traducirse una carga definida por reproducción en una medida directa de sufrimiento, discapacidad o calidad de vida. Esas dimensiones requieren indicadores propios. Un parámetro evolutivo no resume automáticamente los objetivos de una intervención sanitaria ni las preferencias de una persona.
Con muchos loci, la suma de contribuciones pequeñas puede ser una aproximación útil en determinadas condiciones. Sin embargo, las interacciones entre loci, la recombinación, el ligamiento y la distribución de efectos pueden alejar la carga total de esa suma. La generalización requiere un modelo explícito de cómo se combinan las aptitudes.
Una comparación empírica debería indicar qué componentes de reproducción se midieron, en qué ambiente y durante qué intervalo. La supervivencia hasta cierta edad, el número de descendientes y la contribución de esos descendientes a generaciones posteriores no son medidas intercambiables.
El concepto de carga es útil cuando permite formular una comparación definida y comprobable. Si se usa como etiqueta global de deterioro, pierde precisión. Su uso científico exige conservar el referente, las unidades y las condiciones que hacen interpretable el cálculo.
264.7. Cambios ambientales y frecuencias heredadas del pasado
Hasta ahora hemos supuesto parámetros constantes. Si cambia el ambiente, una frecuencia que era de equilibrio puede dejar de serlo de inmediato. La población conserva su composición inicial, mientras que el destino hacia el que se dirige depende de las nuevas condiciones.
Imaginemos que u permanece en 0,01 y que s desciende de 0,2 a 0,05. El equilibrio interior pasa de 0,05 a 0,2. Si la población estaba en el primer valor, la frecuencia de a comenzará a aumentar después del cambio, sin que la tasa de mutación haya aumentado.
La primera actualización con los nuevos parámetros da aproximadamente 0,05714. La diferencia respecto del nuevo equilibrio sigue siendo grande. Una muestra tomada poco después del cambio reflejaría, además de las condiciones actuales, parte de la historia anterior.
Cerca del nuevo equilibrio, la derivada vale 0,95 dividido por 0,99, aproximadamente 0,9596. La semivida local de una desviación ronda 16,8 generaciones. Una selección más débil cambia el equilibrio y también puede prolongar el tiempo necesario para aproximarse a él.
Si el ambiente oscila antes de que la población se estabilice, puede no existir una frecuencia constante que describa la trayectoria. Un ciclo periódico de parámetros puede producir una trayectoria periódica; cambios irregulares pueden generar respuestas todavía más complejas.
Promediar primero los parámetros y calcular después el equilibrio no suele equivaler a promediar la trayectoria producida por los parámetros variables, porque la actualización es no lineal y la composición presente depende de la secuencia previa.
Un cambio de signo en el efecto de una variante obliga a reformular la interpretación. Una copia perjudicial en un ambiente puede contribuir más a la reproducción en otro. No existe una etiqueta de aptitud desligada del contexto y de las alternativas con las que se compara.
También pueden cambiar las tasas de mutación, la migración o el tamaño poblacional. Si varios factores varían a la vez, distintas combinaciones de sus contribuciones pueden producir la misma serie de frecuencias. La atribución causal requiere medidas adicionales o intervenciones que separen los mecanismos.
Estas posibilidades aconsejan prudencia con las explicaciones retrospectivas. Una frecuencia actual puede ser un residuo temporal, una respuesta en curso o el resultado de varios regímenes ambientales. Que una fórmula de equilibrio admita ese valor no demuestra que el equilibrio lo haya producido.
264.8. Del punto fijo a una distribución en poblaciones finitas
En una población finita, la frecuencia siguiente no tiene que coincidir con el valor determinista. Podemos usar la función F de selección y mutación como probabilidad de un muestreo binomial de M copias. La media condicional será F, pero cada realización dará un conteo entero.
Si M es cien y la probabilidad después de selección y mutación es 0,05, el número esperado de copias a es cinco. Eso no significa que todas las generaciones contengan exactamente cinco. La varianza del conteo será 4,75 bajo este muestreo.
La probabilidad de observar cero copias en la siguiente generación es 0,95 elevado a cien, aproximadamente 0,00592. Aunque el equilibrio determinista sea positivo, una población concreta puede perder temporalmente la variante. Si existe mutación desde A, la variante puede reaparecer después.
Con mutación en ambas direcciones y probabilidades interiores, la cadena finita puede tener una distribución estacionaria sobre todos los conteos. Bajo condiciones apropiadas, esa distribución describe la fracción del tiempo, o de las réplicas, que corresponde a cada estado. No implica que una población permanezca cerca de un único conteo.
La media estacionaria tampoco coincide necesariamente con el punto fijo determinista. En general, el promedio de F evaluada en frecuencias fluctuantes no es igual a F evaluada en la frecuencia promedio. La no linealidad introduce una diferencia que desaparece únicamente en casos especiales o como aproximación.
Sin mutación inversa aparece otra diferencia. Aunque la mutación hacia a impide que cero sea absorbente, el extremo con todas las copias a sigue siendo absorbente. Si u es positivo y todas las aptitudes son positivas, una cadena finita puede alcanzar finalmente ese extremo.
Este resultado contrasta con el equilibrio interior estable del modelo determinista, aunque no lo contradice, porque estamos comparando una población infinita idealizada con una población finita observada durante un tiempo potencialmente ilimitado. La duración de interés determina si la absorción remota tiene relevancia práctica.
Antes de esa absorción, la población puede mostrar una distribución aproximadamente persistente alrededor de frecuencias bajas. Describirla exige distinguir una distribución cuasiestacionaria de una estacionaria verdadera. El condicionamiento a no haber sido absorbida forma parte de la definición.
El tamaño, el horizonte y la mutación inversa pueden cambiar incluso la clase de objeto que buscamos, ya sea un punto fijo, una distribución, un tiempo de residencia o la probabilidad de desaparición dentro de un intervalo.
264.9. Qué datos distinguen mecanismos
Una frecuencia observada no identifica por separado una tasa de mutación y un coeficiente de selección. En el modelo haploide sencillo, todas las parejas con el mismo cociente u sobre s comparten el equilibrio interior.
Por ejemplo, u igual a 0,01 con s igual a 0,2 y u igual a 0,001 con s igual a 0,02 producen q igual a 0,05. Sus velocidades locales, en cambio, son diferentes; como factores de persistencia de una desviación valen aproximadamente 0,8081 y 0,9810.
Tras una perturbación pequeña, la segunda población se aproxima mucho más lentamente, de modo que una serie temporal puede aportar información que una muestra transversal no contiene. Aun así, la precisión necesaria dependerá del ruido demográfico y del error de observación.
Las tasas de mutación pueden estimarse mediante diseños que distingan nuevas mutaciones de variantes heredadas. Las consecuencias reproductivas requieren otras mediciones. Combinar fuentes de información independientes reduce la posibilidad de ajustar un equilibrio con parámetros arbitrarios.
La migración es otra alternativa. La llegada recurrente de individuos puede mantener una variante seleccionada negativamente en el ambiente local. Una frecuencia persistente compatible con mutación–selección también podría surgir de un balance entre migración y selección.
La estructura espacial, la dominancia y la variación ambiental amplían ese conjunto de explicaciones. Por ello, una buena comparación examina, además de si un modelo puede reproducir el dato, qué observaciones diferenciales predice frente a sus competidores.
Un diseño útil podría medir frecuencias antes y después de la reproducción, registrar nuevos eventos de mutación y seguir varias poblaciones durante un cambio ambiental. Cada componente restringe una parte distinta del mecanismo. No todas las aplicaciones permiten ese diseño, pero reconocer lo que falta ayuda a calibrar las conclusiones.
La incertidumbre de los parámetros debe propagarse a las predicciones. Si u y s tienen intervalos amplios, una frecuencia de equilibrio presentada con muchos decimales crea una precisión ficticia. Los decimales de los ejemplos de este capítulo sirven solo para comprobar la aritmética.
Finalmente, una discrepancia no debe atribuirse automáticamente al ruido. Puede señalar un orden de eventos incorrecto, una variable omitida o una definición inadecuada de aptitud. El modelo es más útil cuando sus fallos ayudan a localizar qué supuesto necesita revisión.
264.10. Un equilibrio es una hipótesis sobre el proceso
El equilibrio entre mutación y selección permite explicar la persistencia de variantes sin atribuirles necesariamente una ventaja. Su utilidad depende de escribir un ciclo reproductivo claro y de distinguir frecuencias alélicas, genotipos, efectos fenotípicos y contribuciones reproductivas.
En el modelo haploide con selección seguida de mutación unidireccional, el equilibrio interior es u dividido por s cuando ese cociente pertenece al intervalo permitido. En diploides, la dominancia modifica la exposición de las variantes a la selección y cambia las aproximaciones pertinentes.
Saber que un punto fijo es estable no dice a qué velocidad se aproxima la población. Dos modelos pueden compartir equilibrio y responder de manera muy distinta a una perturbación. Los transitorios contienen información sobre los mecanismos que se pierde si se mira únicamente el destino.
La población finita añade fluctuaciones, pérdidas temporales y posibles absorciones. Un punto fijo determinista puede corresponder a una distribución amplia o a una persistencia prolongada pero finita. El horizonte de observación debe formar parte de la interpretación.
Una aplicación responsable compara explicaciones alternativas y busca datos que las distingan. La presencia de una variante no prueba adaptación; la coincidencia con una fórmula tampoco prueba equilibrio. Ambas afirmaciones requieren evidencia sobre el proceso que conecta generaciones.
El siguiente capítulo ampliará el análisis desde dos variantes hacia conjuntos de secuencias conectadas por mutación. Entonces la unidad relevante podrá ser una distribución completa, cuya persistencia depende tanto de la reproducción de cada secuencia como de los intercambios entre ellas.
Referencias
[1] Haldane, J. B. S. (1927). A mathematical theory of natural and artificial selection, Part V: Selection and mutation. Proceedings of the Cambridge Philosophical Society, 23(7), 838–844. DOI.