Módulo 27. Evolución, variación y restricciones
262.1. Una generación como muestra de la anterior
El modelo de Wright–Fisher describe el reemplazo completo de una generación por otra mediante muestreo. Su sencillez permite estudiar cómo cambian las frecuencias por azar, incluso cuando las variantes no difieren en contribución esperada. Es un modelo de referencia; muchos ciclos de vida reales se apartan de sus supuestos.
La denominación reconoce los trabajos fundacionales de Fisher y Wright [1,2]. Aquí usaremos una versión haploide de tamaño constante, con dos variantes y generaciones no superpuestas. Cada copia de la generación nueva elige independientemente una copia parental de la generación anterior.
Llamaremos M al número de copias. Esta convención evita confundir individuos y copias génicas. En una población diploide idealizada de N individuos y un locus autosómico, habría copias. En nuestra versión haploide, cada individuo tiene una copia y M coincide con el número de individuos.
El estado del modelo es el número i de copias A, que puede ir de cero a M. La frecuencia es . En ausencia de selección, mutación y migración, cada copia nueva es A con probabilidad p. El número de A en la siguiente generación sigue entonces una distribución binomial.
Suponer que el muestreo es independiente permite que un progenitor contribuya varias veces y que otro no contribuya. El tamaño total permanece fijo, pero las contribuciones individuales fluctúan.
Este mecanismo produce deriva, es decir, cambios de frecuencia cuya dirección realizada depende del muestreo. La frecuencia esperada puede conservarse mientras las poblaciones individuales divergen entre sí y algunas pierden una variante.
Comenzaremos con cuatro copias para calcular todas las transiciones. Después examinaremos fijación, tiempos, tamaño efectivo y extensiones. El caso pequeño permitirá distinguir los resultados exactos del modelo discreto de las aproximaciones que solo resultan adecuadas en otros regímenes.
262.2. La distribución de transición
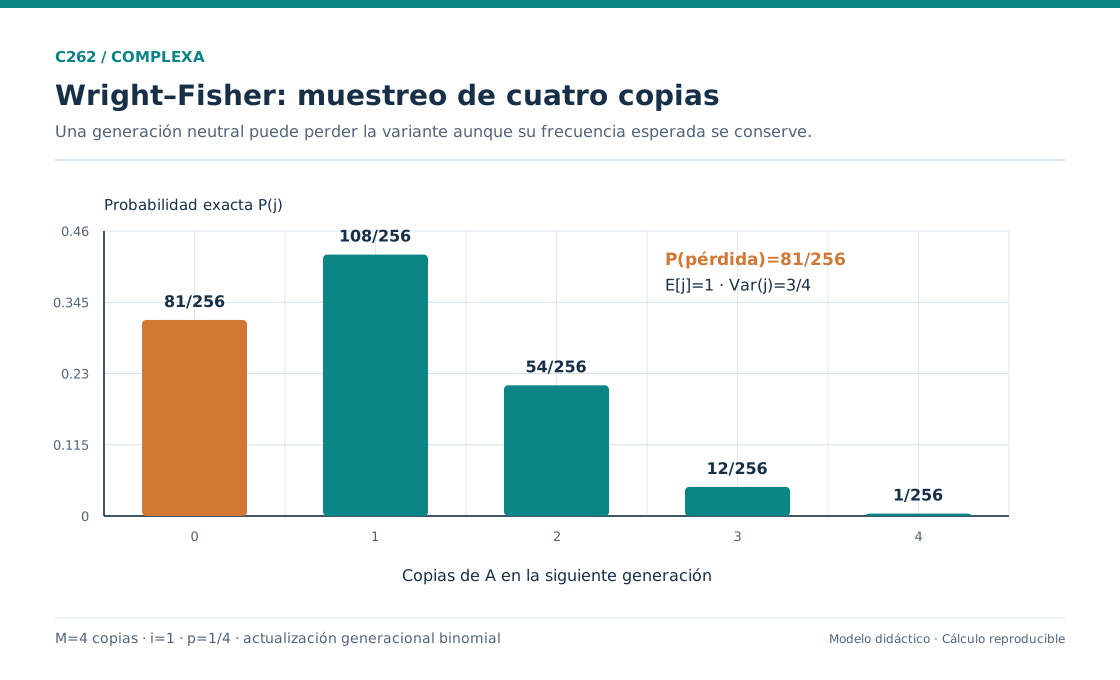
Si hay i copias A entre M, la probabilidad de obtener j copias A en la generación siguiente es
El coeficiente binomial cuenta cuántas secuencias de descendientes contienen exactamente j copias A. Los otros factores son las probabilidades de A y B en cada posición. La fórmula describe la renovación simultánea de una generación completa.
Tomemos M igual a cuatro e i igual a uno. Las probabilidades de obtener cero, una, dos, tres o cuatro copias A son, respectivamente, 81; 108; 54; 12 y uno, todos divididos por 256. Su suma es uno, como corresponde a una distribución completa.
La probabilidad de conservar exactamente una copia es aproximadamente 0,422; la de perder A, aproximadamente 0,316. La de aumentar a dos o más es la suma de las tres probabilidades restantes, aproximadamente 0,262. Aunque el promedio permanezca en una copia, el resultado más frecuente no describe toda la distribución.
Si comenzamos con dos copias A, las probabilidades son uno, cuatro, seis, cuatro y uno divididos por dieciséis. La distribución es simétrica alrededor de dos. Hay una probabilidad positiva de llegar a cualquiera de los extremos en una sola generación.
Los estados cero y cuatro son absorbentes en esta versión sin mutación. Si no existe ninguna copia A, el muestreo de progenitores no puede producirla. Si todas son A, no puede aparecer B. La absorción resulta, así, de reglas explícitas del modelo.
La matriz de transición reúne estas distribuciones para todos los estados. Cada fila corresponde a una composición actual y cada columna a una composición siguiente. Las potencias de la matriz dan las distribuciones después de varias generaciones.
El modelo discreto conserva información que una descripción determinista pierde. Una ecuación para la frecuencia media no indica la probabilidad de pérdida ni la dispersión entre poblaciones. Para estudiar esos eventos necesitamos la distribución completa o una aproximación que preserve sus propiedades pertinentes.
También conviene distinguir muestreo reproductivo y muestreo de observación. Aquí la binomial genera la población nueva. Si más adelante observamos solo una parte de ella, aparece otra fuente de incertidumbre, que no debe confundirse con evolución. Un registro reproducible debe conservar ambos tamaños, es decir, cuántas copias integran la población del modelo y cuántas se examinan en cada medición.
262.3. Media constante y variabilidad creciente
La distribución binomial permite calcular momentos condicionales. Dada la frecuencia actual p, el número esperado de copias A en la generación siguiente es Mp y su varianza es . Para la frecuencia, la media sigue siendo p y la varianza es .
La primera igualdad expresa neutralidad en esperanza; aun así, la frecuencia de cada población puede cambiar. La segunda cuantifica el tamaño de las fluctuaciones de una generación y muestra que disminuyen al aumentar el número de copias bajo este mecanismo.
Con M igual a cuatro y p igual a un cuarto, el número de A tiene media uno y varianza 0,75. La frecuencia tiene varianza , igual a 0,046875. Su desviación estándar es aproximadamente 0,2165, grande respecto de la frecuencia inicial.
Con mil copias y p igual a un medio, la desviación estándar de la frecuencia en una generación es aproximadamente 0,0158. En poblaciones grandes las fluctuaciones de cada generación son menores, pero la deriva no desaparece y sus efectos acumulados pueden seguir siendo relevantes.
La frecuencia neutral es una martingala; su mejor predicción media para el paso siguiente, dada la historia resumida por el estado actual, es el valor presente. Esta propiedad permite derivar probabilidades de fijación, aunque no implica que una trayectoria carezca de rachas ni que los incrementos sean independientes.
La varianza entre poblaciones puede aumentar con el tiempo aunque la varianza condicional de un paso disminuya cerca de los extremos. Cuando algunas poblaciones se fijan en cero y otras en uno, la dispersión entre ellas es grande. Dentro de cada población fijada, en cambio, ya no hay variación de frecuencia.
Esa diferencia entre variabilidad dentro y entre poblaciones explica que un promedio de un cuarto pueda mantenerse cuando una cuarta parte de las réplicas termina en A y el resto en B, aunque ninguna réplica fijada conserve una mezcla de un cuarto y tres cuartos.
Podemos calcular también la varianza entre réplicas después de varias generaciones desde una frecuencia inicial fija. En este modelo es . Para cuatro copias y frecuencia inicial un cuarto, después de cinco generaciones vale aproximadamente 0,1430. A largo plazo se aproxima a 0,1875, que es la varianza de una variable que vale uno con probabilidad un cuarto y cero con probabilidad tres cuartos.
La expresión conecta la dispersión creciente entre poblaciones con la absorción final. Como resume el conjunto de trayectorias, no exige que cada réplica se aleje continuamente de la frecuencia inicial; una réplica puede regresar varias veces a estados interiores. Cuando una secuencia breve parece estabilizarse, esa apariencia local no sustituye el análisis de las probabilidades de largo plazo.
Los momentos permiten controlar una simulación. Al repetir muchas transiciones desde el mismo estado, las medias y varianzas empíricas deben aproximarse a esas expresiones. Con una sola trayectoria no se puede comprobar una esperanza. Tampoco una coincidencia en el promedio garantiza que las colas de la distribución estén bien implementadas.
262.4. Pérdida de diversidad y heterocigosidad esperada
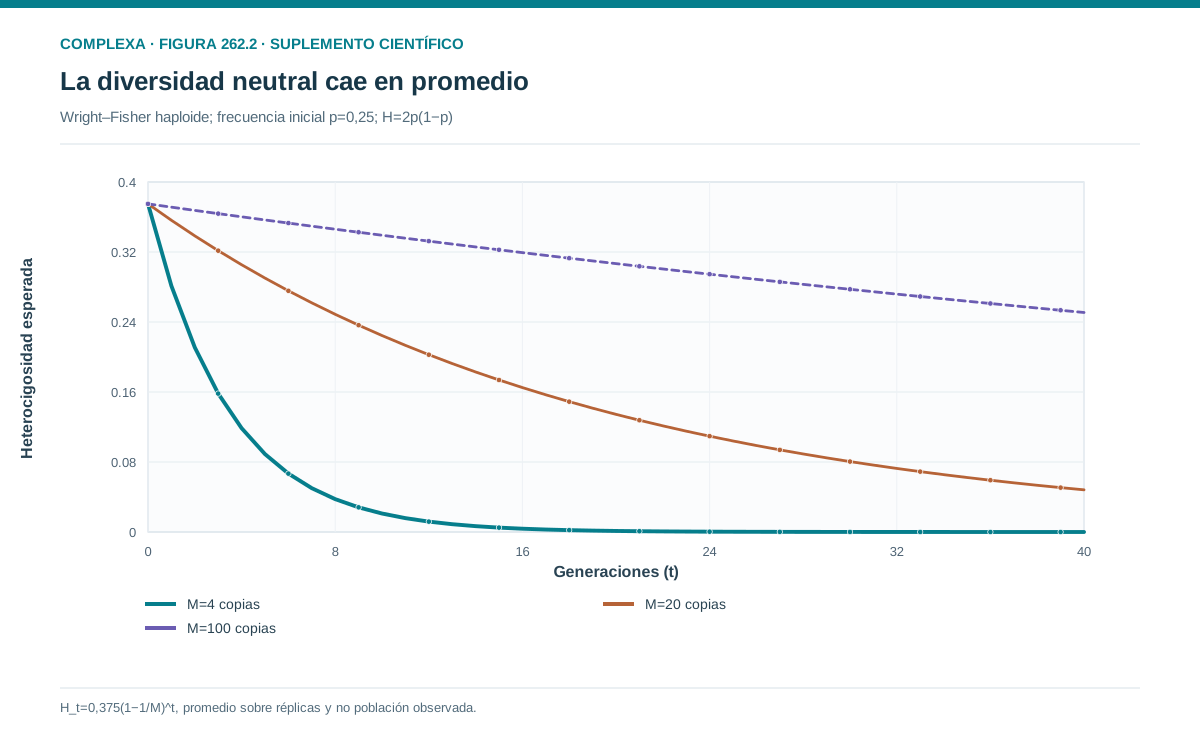
Una medida sencilla de diversidad para dos variantes es . Puede interpretarse como la probabilidad de que dos extracciones independientes con reemplazo, tomadas de la distribución de variantes de una población, sean diferentes. Cuando el tamaño es pequeño, el valor depende de la convención de muestreo.
Bajo Wright–Fisher neutral, la diversidad esperada de la generación siguiente es la actual multiplicada por . La reducción surge porque las copias descendientes pueden compartir antecedentes y porque la frecuencia fluctúa hacia valores más extremos.
Con M igual a cuatro, el factor es tres cuartos. Si comenzamos con p igual a un cuarto, H es 0,375. Su esperanza es 0,28125 después de una generación y aproximadamente 0,08899 después de cinco.
La reducción es en esperanza. Una población particular puede pasar de una copia A a dos y aumentar su diversidad de 0,375 a 0,5. Otras pueden perder A y quedar en cero. La combinación de posibilidades produce la disminución promedio.
La fórmula también admite una comprobación retrospectiva bajo nuestra convención de muestreo con reemplazo. Las dos extracciones de descendientes corresponden a la misma copia con probabilidad ; en ese caso no difieren. Si corresponden a copias distintas, sus progenitores fueron elegidos independientemente y la probabilidad de diferencia, condicionada a la población parental, es . De ahí se obtiene el factor . Si se parte directamente de dos descendientes distintos, debe usarse otra convención de diversidad al seguir su posible coalescencia parental.
Debemos precisar qué medimos al hablar de heterocigosidad. En organismos diploides, la proporción de individuos heterocigotos observados puede diferir de si hay estructura, apareamiento no aleatorio u otras desviaciones. Aquí usamos la diversidad esperada de dos copias bajo la convención indicada.
Si muestreamos dos copias distintas sin reemplazo de una población finita realizada, la probabilidad de diferencia incluye un factor respecto de , cuando M es mayor que uno. Confundir ambas convenciones introduce diferencias apreciables en el ejemplo de cuatro copias.
El resultado muestra que conservar la frecuencia media no conserva la diversidad. La deriva puede eliminar variantes dentro de las poblaciones mientras mantiene las proporciones promedio entre réplicas. Habrá que tenerlo presente al interpretar datos agrupados y al comparar escalas espaciales.
Todo lo anterior supone que no hay mutación. Una entrada continua de nuevas variantes puede compensar parte de la pérdida, producir una distribución estacionaria y cambiar la interpretación de los extremos. Esa extensión exige modificar la transición misma.
262.5. Probabilidad de fijación neutral
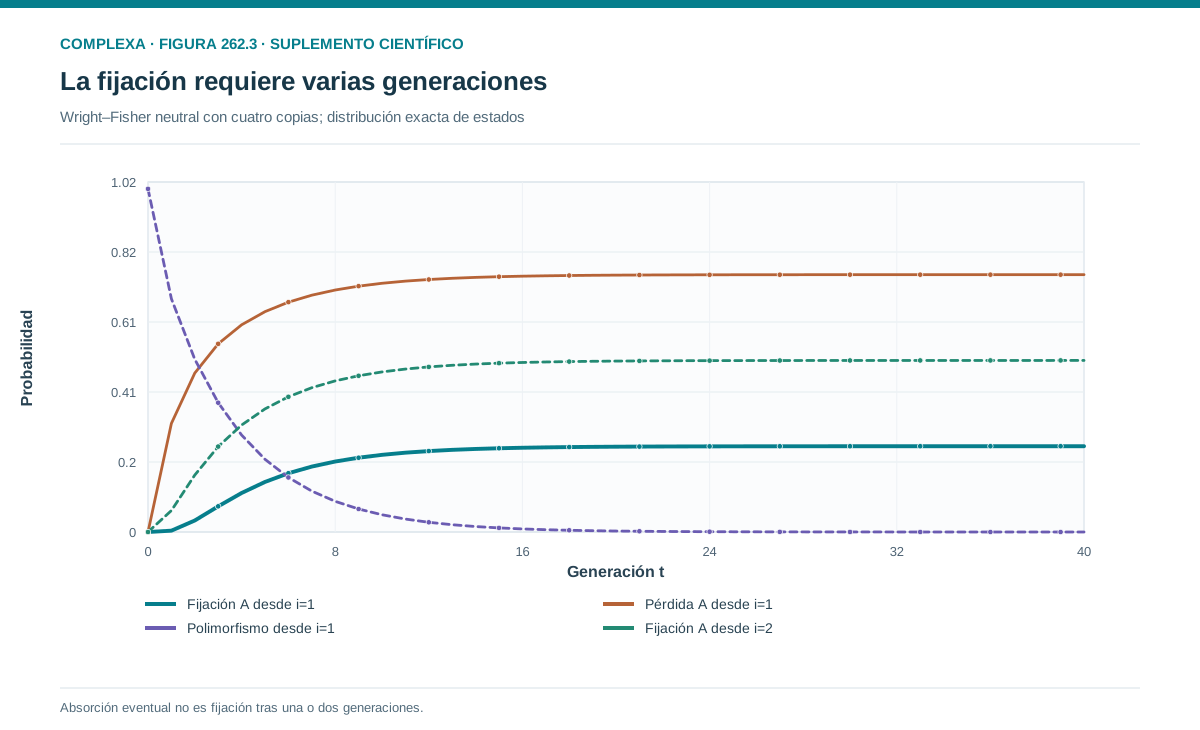
En el modelo finito sin mutación, la población termina absorbida en cero o M con probabilidad uno. Desde cualquier estado interior hay una probabilidad positiva de alcanzar un extremo y no existe otra clase cerrada que conserve indefinidamente una mezcla.
La propiedad de martingala permite calcular la probabilidad de fijación de A. Como la frecuencia terminal solo puede ser cero o uno y su esperanza conserva la frecuencia inicial, la probabilidad de terminar en uno es .
Una copia entre cuatro tiene probabilidad de fijación de un cuarto; dos copias, de un medio. Si el modelo considera neutral la variante, estos resultados dependen solo de su frecuencia inicial y de las reglas, cualquiera que sea su novedad, su complejidad o su utilidad aparente.
La probabilidad de fijación eventual es distinta de la probabilidad de fijarse en una generación. Con una copia A entre cuatro, llegar inmediatamente a cuatro tiene probabilidad , mucho menor que un cuarto. Las trayectorias de varias generaciones acumulan otras oportunidades de alcanzar el extremo.
Podemos verificar la fórmula resolviendo ecuaciones de primer paso. Si es la probabilidad de fijación desde i, entonces , con valores de frontera cero y uno. La solución satisface esas ecuaciones porque el número esperado de A conserva i.
También podemos calcular la probabilidad de estar fijado en A al terminar dos generaciones desde una copia inicial. Sumamos, para cada composición intermedia, su probabilidad multiplicada por la de que todos los descendientes siguientes sean A. El resultado es 275/8192, aproximadamente 0,03357. Incluye las trayectorias que ya se fijaron en la primera generación, porque el extremo conserva su estado.
La cifra sigue siendo mucho menor que la probabilidad eventual de un cuarto, porque al aumentar el horizonte se incorporan trayectorias más largas. Por eso, tratar la frecuencia de fijaciones después de dos generaciones como una estimación directa de la fijación eventual la subestimaría. Debemos declarar el horizonte y distinguir los eventos todavía no ocurridos de los que nunca ocurrirán.
Esta derivación evita interpretar la fijación como una fuerza que favorece necesariamente al tipo común. El tipo común tiene mayor probabilidad de fijarse porque comienza con más copias, pero la dirección de cada fluctuación sigue siendo neutral en esperanza. Una variante rara puede fijarse, aunque con menor probabilidad.
El resultado no se aplica tal cual cuando introducimos selección, mutación o migración. Con mutación recurrente, los extremos pueden dejar de ser absorbentes. Con selección, la frecuencia ya no es una martingala neutral. En esos casos hay que resolver el problema modificado.
También cambia la inferencia si observamos únicamente poblaciones donde una variante se fijó. Esas trayectorias están condicionadas a un resultado y no son una muestra ordinaria de todos los procesos iniciados con esa frecuencia. Las historias exitosas pueden parecer dirigidas aun cuando el mecanismo original sea neutral.
262.6. Cuánto tarda la absorción
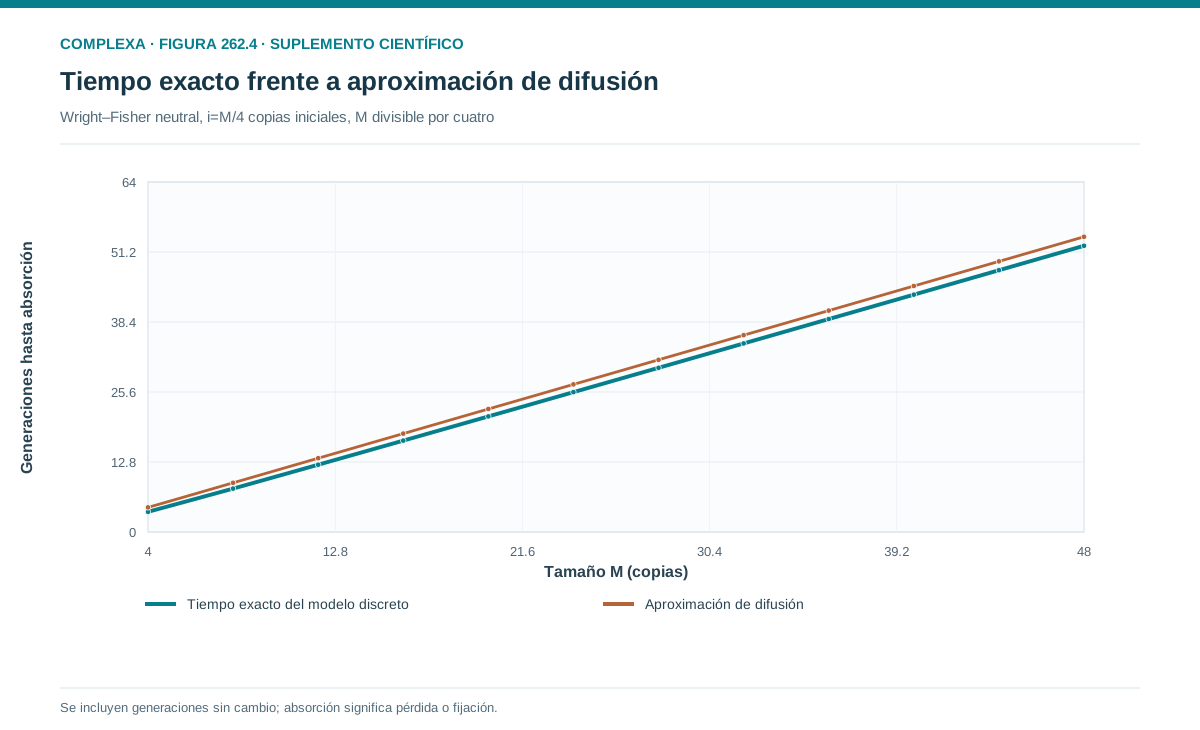
La probabilidad de fijación no indica cuánto tarda en producirse. Dos procesos pueden compartir probabilidades finales y tener escalas temporales distintas. Para estudiar la duración necesitamos otro cálculo y una definición precisa del evento; aquí usaremos la llegada a cualquiera de los dos extremos.
Si es el tiempo esperado de absorción desde i, medido en generaciones, satisface para estados interiores. Los extremos tienen tiempo cero. La unidad añadida cuenta la primera generación antes de continuar desde el estado obtenido.
Para M igual a cuatro, el sistema de tres ecuaciones da (aproximadamente 3,690 generaciones) y (aproximadamente 4,552). Una mezcla equilibrada tarda más en absorberse, en promedio, que una composición cercana a un extremo.
El sistema puede revisarse a mano. Por simetría, T1 y T3 son iguales. La ecuación desde una copia contiene probabilidades 108/256 de permanecer en una, 54/256 de llegar a dos y 12/256 de llegar a tres. Las transiciones a extremos no añaden tiempo posterior. Al reunir términos, resulta 136 veces T1 menos 54 veces T2 igual a 256.
Desde dos copias, las probabilidades de llegar a una y a tres son un cuarto cada una; la de permanecer en dos es tres octavos. La segunda ecuación reducida es cinco veces T2 menos cuatro veces T1 igual a ocho. Estas dos relaciones dan los valores indicados. La unidad de tiempo cuenta también las generaciones en que el número de A no cambia; eliminarlas artificialmente daría un proceso acelerado diferente.
Estos son tiempos hasta la pérdida o la fijación de A. El tiempo de fijación condicionado a que A gane es otra magnitud, porque condicionar en ese resultado selecciona una familia distinta de trayectorias y requiere otras ecuaciones. Confundir ambos tiempos puede producir comparaciones erróneas.
Para poblaciones grandes, las aproximaciones de difusión dan expresiones continuas. En la convención de M copias, una aproximación neutral del tiempo de absorción es . Kimura desarrolló tratamientos fundamentales de la deriva mediante modelos continuos [3].
Aplicada mecánicamente a M igual a cuatro y p igual a un cuarto, la aproximación da aproximadamente 4,499 generaciones, frente al valor discreto exacto de 3,690. La diferencia es considerable. El ejemplo pequeño está fuera del régimen en que conviene confiar sin comprobación en una aproximación de población grande.
También hay que conservar unidades y factores de dos. Si usamos N individuos diploides, M equivale a dos N y el prefactor se convierte en cuatro N. Escribir una fórmula sin declarar si el tamaño cuenta individuos o copias puede duplicar o reducir indebidamente los tiempos.
Una simulación puede estimar la duración promedio repitiendo trayectorias hasta la absorción, siempre que permita que todas terminen o trate adecuadamente la censura por un horizonte máximo. Promediar únicamente las trayectorias que terminaron pronto subestima la duración.
El sistema exacto de cuatro copias es una referencia para comprobar ese estimador. Una vez verificado, podemos ampliar el tamaño y evaluar cuándo la aproximación continua responde suficientemente bien a la pregunta que interesa.
262.7. Introducir selección o mutación cambia el muestreo
En una extensión con selección, primero calculamos la probabilidad de contribuir A según las aptitudes y después generamos la nueva población por muestreo binomial. Para contribuciones y , esa probabilidad es .
Si p es un cuarto y las contribuciones de A y B son dos y uno, obtenemos . Con cuatro copias nuevas, la probabilidad de perder A en una generación es . La selección modifica el centro de la distribución, mientras el muestreo conserva variabilidad alrededor de ese centro.
No debemos reemplazar el resultado realizado por la esperanza de 1,6 copias. Una población de cuatro tiene un número entero de A; la cifra 1,6 solo resume muchas réplicas.
La mutación modifica también la probabilidad de cada copia descendiente. Si A cambia a B con probabilidad u y B cambia a A con probabilidad v, una convención de selección seguida de mutación da . Después se muestrea la generación nueva.
El orden de los procesos debe declararse. Aplicar la mutación antes de la selección puede dar otra transición, porque las variantes nuevas pueden participar en la fase selectiva o esperar a la generación siguiente. En un modelo de un solo paso, ese detalle es una hipótesis sobre el ciclo de vida.
Con mutación simétrica de 0,1 y sin selección, incluso una población sin A puede producir esa variante. Desde cero, cada copia nueva tiene probabilidad 0,1 de ser A. Con cuatro copias, la probabilidad de seguir en cero es 0,6561 y la de salir de ese extremo es 0,3439.
Los extremos ya no son absorbentes. Si ambas direcciones de mutación tienen probabilidades positivas adecuadas, la cadena finita puede tener una distribución estacionaria sobre composiciones. Cada población, sin embargo, puede seguir fluctuando sin quedar fija en una frecuencia intermedia.
En ausencia de selección, la media estacionaria de frecuencia bajo tasas constantes positivas es . Con tasas simétricas es un medio. La forma completa de la distribución depende también del tamaño y de las tasas; una media de un medio puede coexistir con mucha masa cerca de los extremos cuando la mutación es escasa.
Estas extensiones conservan la lógica de muestreo, pero cambian propiedades fundamentales. Neutralidad, absorción y fijación deben evaluarse para la transición efectivamente usada.
262.8. Tamaño efectivo y error de observación
El tamaño censal cuenta individuos o copias presentes. El tamaño efectivo resume, para una propiedad concreta, la intensidad de deriva de una población mediante comparación con un modelo ideal. No tiene por qué coincidir con el censo ni ser idéntico bajo todas las definiciones.
Si estimamos la varianza de cambio de frecuencia de una generación, podemos definir un tamaño efectivo de varianza que reproduzca bajo una aproximación pertinente. Las diferencias entre familias, la estructura, las fluctuaciones demográficas y la selección pueden, sin embargo, complicar esa correspondencia.
No conviene atribuir íntegramente a deriva cualquier varianza observada, porque las mediciones de frecuencia también contienen error de muestreo. Si solo observamos una muestra de veinte copias de una población con frecuencia un medio, la desviación estándar binomial de la frecuencia muestral es aproximadamente 0,1118.
En cambio, la fluctuación reproductiva de una generación en una población ideal de mil copias y frecuencia un medio tiene desviación estándar aproximada de 0,0158. En ese ejemplo, la muestra pequeña introduce mucha más variabilidad que la deriva generacional que queremos estudiar.
Una comparación de dos muestras temporales añade incertidumbre de ambas mediciones, además del cambio poblacional. Si ignoramos ese componente, podemos inferir un tamaño efectivo demasiado pequeño o atribuir a selección un cambio compatible con observación ruidosa.
No detectar una variante tampoco demuestra que se haya perdido en la población. Si su frecuencia verdadera es 0,05 y observamos veinte copias independientes, la probabilidad de no verla es , aproximadamente 0,3585. Para inferir pérdida necesitamos considerar el tamaño de muestra, la sensibilidad de medición y el conocimiento previo sobre frecuencias. La absorción del proceso evolutivo y la ausencia en una muestra son eventos diferentes, aunque ambos puedan aparecer como un cero en una tabla de datos.
El diseño debe declarar si se muestrea con reemplazo, qué fracción de la población se observa y si las muestras comparten individuos. Cuando la fracción es grande, una distribución hipergeométrica puede ser más adecuada que una binomial para la observación. El modelo reproductivo y el modelo de medición son componentes distintos.
También puede haber estructura espacial. Dos muestras tomadas en lugares diferentes pueden mostrar frecuencias distintas aunque la composición global no haya cambiado. Interpretarlas como una trayectoria temporal de una población panmíctica introduce una transformación que el modelo no representa.
Las fluctuaciones de tamaño ilustran la diferencia entre censo y tamaño efectivo. Si dos generaciones sucesivas tienen tamaños de descendencia de diez y cien copias, la diversidad esperada se multiplica por 0,9 y después por 0,99. El factor conjunto es 0,891. Un tamaño constante que reproduzca exactamente esa pérdida durante dos generaciones debe tener un factor de retención cuyo cuadrado sea 0,891.
Esta comparación da un tamaño equivalente cercano a dieciocho copias, muy inferior a la media aritmética de cincuenta y cinco. La generación pequeña produce una pérdida que la grande siguiente no recupera sin entrada de variación. La media armónica es una aproximación habitual cuando las pérdidas por generación son pequeñas, pero aquí el cálculo exacto se define mediante el producto de retenciones. Ese mismo número no tiene por qué reproducir todos los tiempos de fijación ni todas las propiedades genealógicas de una población fluctuante.
El tamaño efectivo es útil cuando se define para una propiedad y una escala. Presentarlo como una propiedad intrínseca y única de la población oculta esas condiciones. Hay que decir qué proceso ideal se usa como comparación y qué fuentes de variación se separaron.
262.9. Un protocolo de simulación verificable
Una implementación de Wright–Fisher necesita conservar el número actual de A, calcular su probabilidad de contribución y generar un número binomial para la generación siguiente. Todas las copias nuevas deben depender de la generación anterior completa, sin que la población se modifique dentro del mismo paso.
Ese detalle distingue reemplazo generacional de reemplazo secuencial. Si después de generar una copia la incorporamos inmediatamente al conjunto de progenitores de las restantes, hemos implementado otro proceso. Puede producir deriva, pero su matriz de transición ya no será la de Wright–Fisher.
Para cuatro copias, verificamos las cinco probabilidades desde cada estado. Los extremos deben permanecer fijos cuando no hay mutación. La media de una transición neutral debe conservar i y la varianza debe coincidir con la binomial. Estas comprobaciones detectan errores de índices y de parametrización.
Después comparamos la probabilidad de fijación y el tiempo de absorción con los resultados exactos. Son propiedades de trayectorias completas y permiten detectar fallos que no aparecen en una única transición, como una condición de parada incorrecta o un contador temporal desplazado.
Al introducir selección, comprobamos primero la probabilidad transformada y después el muestreo. Al introducir mutación, verificamos que los extremos puedan abandonarse con la probabilidad prevista. Separar las etapas facilita localizar cuál produce una discrepancia.
Las semillas permiten repetir realizaciones, pero no sustituyen la evaluación estadística. Una semilla favorable puede fijar rápidamente una variante rara; otra puede perderla de inmediato. Para estimar probabilidades y tiempos necesitamos muchas réplicas y medidas de incertidumbre.
También conviene conservar los resultados de las poblaciones absorbidas. Excluirlas de promedios posteriores condiciona el análisis a la supervivencia de diversidad y modifica la pregunta. Un promedio entre poblaciones todavía polimórficas no coincide necesariamente con el promedio de todas las réplicas originales.
Finalmente, registramos el número de copias, la convención diploide o haploide, el orden de los procesos y la unidad temporal. Estos detalles permiten comparar resultados con otros modelos sin confundir diferencias científicas con cambios de escala o implementación.
262.10. La deriva como consecuencia de reglas de reproducción
Wright–Fisher muestra cómo un muestreo generacional produce cambio evolutivo sin diferencias selectivas. La frecuencia neutral conserva su esperanza, pero las poblaciones individuales fluctúan, pierden diversidad y terminan absorbidas en ausencia de entradas de variantes. La distribución contiene información que la media no recoge.
El ejemplo de cuatro copias permitió calcular transiciones, diversidad, fijación y tiempos exactos. También mostró que una aproximación de difusión puede ser imprecisa en tamaños muy pequeños. Una fórmula útil necesita una convención de tamaño y un régimen de aplicación.
Selección y mutación modifican la probabilidad de contribución y cambian propiedades de la cadena. La ventaja de una variante no garantiza su persistencia; la mutación recurrente, por su parte, puede eliminar la absorción. Las conclusiones deben derivarse de las reglas efectivas de cada versión del modelo.
El análisis de datos añade un proceso de observación. Una muestra limitada puede fluctuar más que la población subyacente. Separar deriva, estructura y error de medición es necesario para interpretar cambios de frecuencia y estimar tamaños efectivos.
La sencillez del modelo es una ventaja cuando permite comprobar mecanismos. También define sus límites, porque las generaciones superpuestas, las contribuciones correlacionadas y la estructura espacial requieren extensiones.
El próximo capítulo estudiará el proceso de Moran, donde un evento reemplaza una sola unidad y las generaciones se superponen. Compararlo con Wright–Fisher mostrará que mecanismos diferentes pueden compartir probabilidades finales y diferir en tiempos o intensidad de fluctuación.
Así, la pregunta evolutiva se concreta. ¿Qué regla de reproducción y reemplazo produce la trayectoria observada? Responderla permite distinguir selección, deriva y efectos de escala mediante cálculos que pueden auditarse.
Referencias
[1] Fisher, R. A. (1930). The Genetical Theory of Natural Selection. Clarendon Press. Edición original digitalizada.
[2] Wright, S. (1931). Evolution in Mendelian populations. Genetics, 16(2), 97–159. DOI.
[3] Kimura, M. (1955). Solution of a process of random genetic drift with a continuous model. Proceedings of the National Academy of Sciences, 41(3), 144–150. DOI.