Módulo 27. Evolución, variación y restricciones
261.1. Explicar una dirección sin atribuir un propósito
Una población puede cambiar de manera persistente sin que haya un agente que conozca su destino. Algunas variantes aparecen, se transmiten y dejan contribuciones diferentes a generaciones posteriores. La acumulación de esas diferencias produce patrones que pueden parecer orientados hacia una solución, aunque ningún componente haya anticipado el resultado.
Hablar de evolución sin finalidad significa que el proceso evolutivo no necesita prever necesidades futuras para producir adaptación. Esto es compatible con que los organismos tengan conductas dirigidas a metas y con que las decisiones humanas puedan modificar ambientes. Esas conductas pueden influir en reproducción y supervivencia; lo que no debemos atribuir sin evidencia es una previsión global al proceso evolutivo.
La selección natural requiere diferencias pertinentes entre entidades, alguna relación entre esas diferencias y su contribución posterior, además de transmisión suficiente para que el cambio pueda acumularse. Lewontin formuló estas condiciones y discutió las unidades a las que pueden aplicarse [1]. Cada aplicación concreta necesita especificar qué varía, qué se transmite y cómo se cuenta la contribución.
La evolución tampoco se reduce a selección. Mutación, recombinación, migración y muestreo aleatorio pueden modificar frecuencias. Algunos cambios son adaptativos respecto de un ambiente; otros reflejan deriva, restricciones o consecuencias indirectas. Que una transformación ocurra no implica que tenga una ventaja funcional.
Este módulo desarrollará modelos que separan esos procesos. Comenzaremos con un ejemplo de reproducción diferencial y añadiremos transmisión imperfecta, azar y cambios ambientales. La precisión será especialmente necesaria cuando pasemos de secuencias y poblaciones simples a explicaciones sobre rasgos complejos.
Una descripción evolutiva debe declarar su escala. Podemos seguir variantes genéticas, tipos fenotípicos, linajes celulares o estrategias transmitidas. Las analogías entre escalas pueden ser útiles, pero no eliminan diferencias en mecanismos de herencia, reproducción y generación de novedad.
La pregunta central será cómo cambia una distribución entre generaciones y qué parte de ese cambio puede atribuirse a cada proceso. Para resolverla hacen falta registros y modelos de transmisión; una narración sobre para qué serviría el rasgo actual es insuficiente.
261.2. Variación antes de selección
La selección modifica la representación de variantes que existen o aparecen durante el proceso. No puede favorecer directamente una variante inexistente y sin mecanismo de producción. Por eso el estudio de la evolución necesita una teoría de la variación, además de una comparación de ventajas.
Las variantes pueden diferir en secuencia, desarrollo, conducta o interacción con el entorno. No todas esas diferencias se transmiten. Una modificación producida únicamente por una experiencia individual puede desaparecer en la generación siguiente si no hay un canal que la conserve. El aprendizaje del módulo anterior y el cambio evolutivo de una población son procesos relacionados en algunos sistemas, pero distintos.
En genética, las mutaciones no aparecen necesariamente con igual probabilidad en todos los sitios ni en todas las condiciones; hay mecanismos moleculares que producen sesgos. Decir que una mutación no se origina porque el organismo necesite su efecto beneficioso no equivale a decir que carece de causas o que todas las alternativas son equiprobables.
El experimento clásico de Luria y Delbrück usó fluctuaciones entre cultivos bacterianos para estudiar el origen de la resistencia a virus [2]. Su resultado apoyó que las variantes resistentes podían aparecer antes de la exposición selectiva. La distribución entre cultivos permitía distinguir una aparición previa de una explicación basada exclusivamente en inducción al exponerse.
El estudio no demuestra que las tasas y los espectros de mutación sean invariables en toda condición biológica, ni autoriza a interpretar cualquier diferencia de resistencia mediante el mismo mecanismo. Su fuerza está en comparar predicciones de procesos específicos mediante un diseño experimental informativo.
Podemos imaginar dos poblaciones con la misma cantidad de individuos resistentes al final, pero historias diferentes. En una, una mutación temprana produjo un linaje grande antes del desafío; en otra, varias mutaciones tardías produjeron linajes pequeños. El conteo final agregado puede ocultar diferencias que la distribución entre réplicas revela.
La variación también está restringida por el desarrollo y por dependencias entre componentes. No todas las combinaciones imaginables de rasgos son accesibles mediante cambios pequeños. Una explicación adaptativa que compara alternativas biológicamente imposibles puede exagerar la libertad del proceso.
Un cálculo artificial ilustra la disponibilidad. Si hay cien oportunidades independientes de producir una variante y cada una tiene probabilidad 0,01, la probabilidad de que aparezca al menos una vez es uno menos 0,99 elevado a cien, aproximadamente 0,634. Con una probabilidad por oportunidad de 0,001, la probabilidad de que aparezca baja a aproximadamente 0,0952. Los números son didácticos; no corresponden a tasas medidas de un organismo. Dos variantes con igual ventaja posterior pueden tener oportunidades muy distintas de participar en la evolución porque difieren en su producción. Si solo observamos cuál se establece, no podemos atribuir toda la diferencia a la selección sin considerar esa entrada de variación.
Antes de preguntar qué variante resulta favorecida, conviene preguntar qué variantes pueden aparecer, con qué frecuencias y en qué contexto. La dirección de cambio observada depende conjuntamente de la producción de alternativas y de las diferencias de contribución.
261.3. Reproducción diferencial en un modelo de dos tipos
Consideremos una población con tipos A y B. La frecuencia inicial de A es un cuarto. En un intervalo de reproducción, cada A deja dos descendientes y cada B deja uno. Suponemos transmisión fiel del tipo, ausencia de migración y un ambiente constante.
Si comenzamos con veinticinco A y setenta y cinco B, la generación descendiente contiene cincuenta A y setenta y cinco B. El total pasa de cien a ciento veinticinco. La frecuencia de A aumenta de 0,25 a 0,4, aunque B no disminuye en número absoluto.
La frecuencia posterior de A es
Aquí y son contribuciones reproductivas por individuo durante el intervalo definido. Su interpretación debe corresponder al ciclo de vida del modelo. No son medidas de superioridad general ni propiedades permanentes independientes del ambiente.
La contribución promedio inicial es 1,25. A es un cuarto de los individuos, pero produce dos quintos de la descendencia. Esa diferencia explica el cambio de frecuencia. La selección es relativa; lo que cuenta es cómo se compara la contribución de cada tipo con el promedio.
Si multiplicamos ambas contribuciones por la misma constante positiva, las frecuencias posteriores no cambian. Contribuciones cuatro y dos producen el mismo cambio relativo que dos y uno, aunque el crecimiento absoluto sea distinto. Frecuencias y tamaño poblacional responden a preguntas diferentes.
También podemos mantener fijo el tamaño de la generación siguiente mediante muestreo. En ese caso, 0,4 sería la probabilidad esperada de seleccionar un descendiente A bajo una regla proporcional a contribuciones; la frecuencia realizada no tiene por qué coincidir exactamente con ese valor. El modelo determinista y el estocástico deben distinguirse.
La ecuación permite calcular una dirección sin atribuir intención a los tipos. A aumenta porque sus portadores dejan más descendientes en el intervalo y porque esos descendientes conservan el tipo. Ningún componente necesita conocer la frecuencia futura ni decidir que la población debe transformarse.
Sin embargo, el cálculo todavía no explica por qué A tiene mayor contribución. Esa diferencia podría depender de supervivencia, fecundidad, acceso a parejas u otras etapas. La ecuación resume el efecto conjunto; una explicación mecanística necesita abrir esas etapas y contrastar sus causas.
261.4. Transmisión y respuesta a la selección
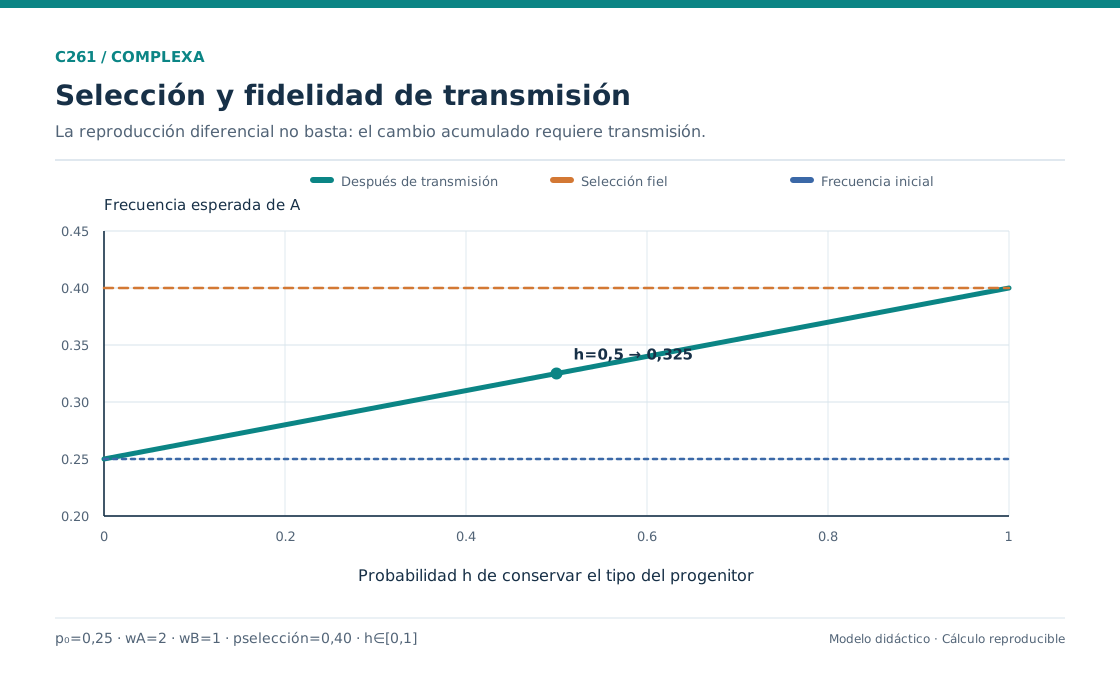
La reproducción diferencial modifica la composición de quienes contribuyen, pero la respuesta entre generaciones depende de qué transmiten. Si los descendientes no conservan ninguna relación con los rasgos de sus progenitores, una diferencia de éxito puede no producir un cambio acumulativo de ese rasgo.
En el ejemplo anterior, la descendencia seleccionada tenía frecuencia A de 0,4 bajo transmisión fiel. Construyamos ahora una regla didáctica en la que, con probabilidad h, cada descendiente conserva el tipo de su progenitor y, con la probabilidad restante, su tipo se asigna de nuevo con probabilidad de A igual a 0,25.
La frecuencia esperada siguiente es . Con h igual a uno obtenemos 0,4; con h igual a un medio, 0,325; con h igual a cero volvemos a 0,25. La reproducción diferencial existe en los tres casos, pero su efecto transmisible cambia.
El parámetro h es una probabilidad de fidelidad definida para este mecanismo artificial. Identificarlo de antemano con la heredabilidad genética en sentido estadístico, o llamar heredabilidad a cualquier semejanza entre generaciones, puede confundir canales de transmisión y cantidades distintas.
En organismos sexuales, la relación entre genotipos parentales y descendientes incluye segregación y recombinación. En rasgos cuantitativos, la respuesta depende de arquitectura genética, ambiente y asociaciones entre componentes. No podemos trasladar sin cambios una regla de copia de tipos a todos esos casos.
La transmisión también puede sesgarse. Una variante puede propagarse más de lo esperado por las reglas mendelianas, o una conducta puede difundirse mediante aprendizaje social sin reproducción biológica. En cada caso debemos especificar el canal y su relación con la contribución de los individuos.
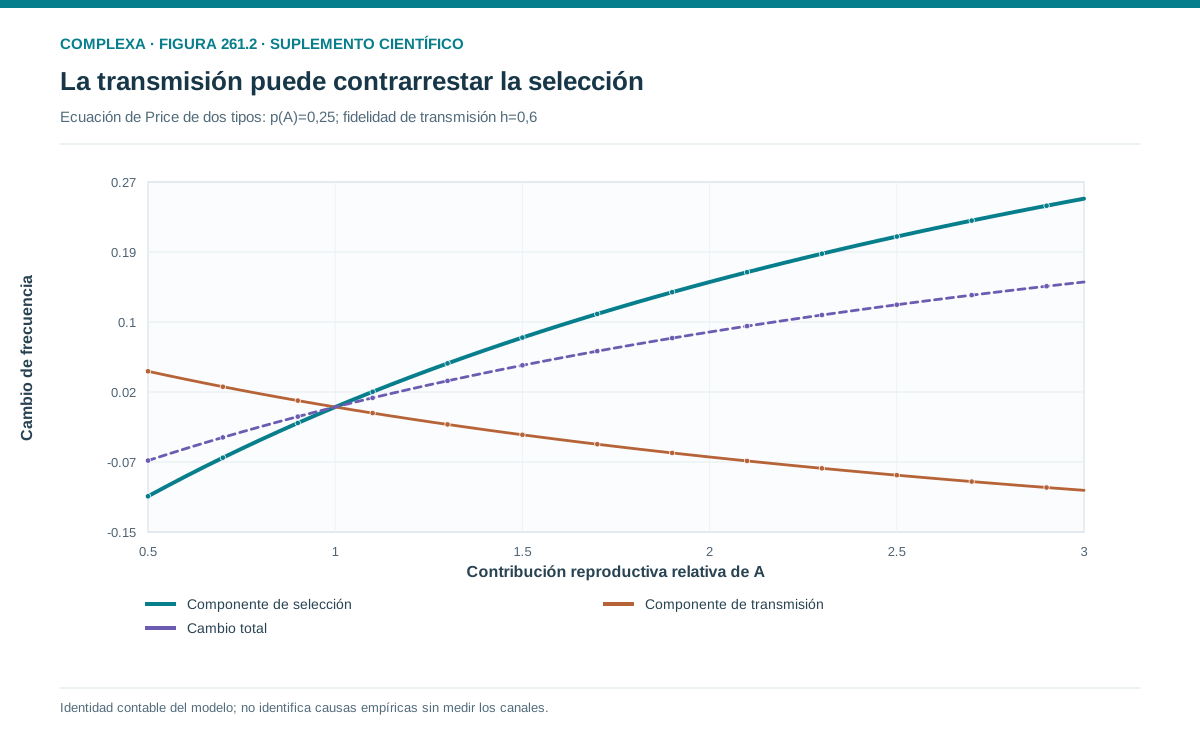
La ecuación de Price es una descomposición general del cambio promedio en un término de covariación entre rasgo y contribución y otro de cambio durante la transmisión [3]. Esa identidad organiza procesos, pero no equivale a una explicación causal completa ni determina todas las generaciones futuras.
La identidad puede comprobarse sin suponer un modelo particular de selección. Si es el valor medio entre descendientes asociados a cada progenitor, entonces la media siguiente es . Escribiendo , separando los dos productos y restando la media inicial, se obtiene
Esta es una identidad contable cuando las contribuciones y la asociación entre generaciones están definidas y la contribución media es positiva. Los ejemplos numéricos siguientes verifican sus dos términos de manera independiente.
Asignemos valor uno al rasgo A y cero a B. Antes de la reproducción, la media del rasgo es 0,25 y la contribución media es 1,25. La media del producto entre rasgo y contribución es 0,5, de modo que la covarianza es 0,1875; al dividirla por la contribución media obtenemos 0,15, el aumento de frecuencia que produciría transmisión fiel.
Con fidelidad h igual a un medio, la frecuencia final es 0,325 y el cambio total es 0,075. El componente de transmisión debe aportar menos 0,075 para compensar la mitad del aumento selectivo. La identidad permite contabilizar esa compensación exactamente, pero no explica por qué el mecanismo de copia tiene determinada fidelidad; ese parámetro sigue siendo una propiedad que debemos medir o justificar en el modelo.
El ejemplo de copia imperfecta muestra por qué conviene separar selección y transmisión. Para predecir el rasgo de los descendientes, además de saber qué progenitores dejan más, necesitamos conocer la relación entre generaciones y las modificaciones que ocurren durante la reproducción, el desarrollo o el aprendizaje.
Esta separación también evita atribuir ausencia de respuesta a ausencia de selección. Una presión selectiva puede existir y quedar compensada por transmisión, migración u otros procesos. La composición final resulta de su combinación.
261.5. Frecuencias, expectativas y azar
En poblaciones finitas, los descendientes son una muestra de contribuciones posibles. Incluso si dos tipos tienen la misma contribución esperada, sus frecuencias realizadas pueden cambiar. Ese componente de muestreo es central para comprender la deriva y la pérdida de variantes.
Consideremos cuatro individuos en una población idealizada, uno A y tres B. Cada uno de los cuatro descendientes de la generación siguiente elige independientemente un progenitor al azar, sin diferencias entre tipos. La probabilidad de que ninguno sea A es , aproximadamente 0,316.
A puede desaparecer en una sola generación aunque no tenga ninguna desventaja esperada. También puede aumentar por azar. El número esperado de A sigue siendo uno, pero una esperanza no describe cada realización.
Si introducimos contribuciones relativas dos para A y uno para B, la probabilidad de A en cada descendiente pasa a 0,4. La probabilidad de perderlo en la generación siguiente es entonces . La ventaja reduce el riesgo de pérdida, pero no lo elimina.
Una variante ventajosa puede desaparecer cuando es rara; una variante sin ventaja puede alcanzar frecuencias altas. La probabilidad de esos eventos depende del tamaño, del proceso de reproducción y de otras condiciones que desarrollaremos en los capítulos siguientes.
El azar tampoco implica ausencia de mecanismos. El muestreo tiene una distribución definida por el modelo. Podemos calcular probabilidades, tiempos y variabilidad entre réplicas. Una explicación estocástica es precisa cuando especifica esa distribución y sus supuestos.
La población real puede apartarse del muestreo independiente. Familias de tamaños desiguales, reproducción correlacionada y fluctuaciones demográficas modifican la intensidad de la deriva. El tamaño censal no resume automáticamente todos esos efectos.
Que una frecuencia aumente en una trayectoria observada no demuestra selección; el aumento puede ser compatible con deriva, migración o sesgos de observación. Comparar frecuencias a través del tiempo requiere un modelo de referencia y una evaluación de incertidumbre.
261.6. La aptitud depende del contexto
En el modelo inicial, A deja dos descendientes y B uno en cada generación. Esa constancia simplifica el cálculo, pero no es una propiedad universal de los tipos. La contribución puede depender de recursos, clima, competidores, densidad y frecuencia de otras variantes.
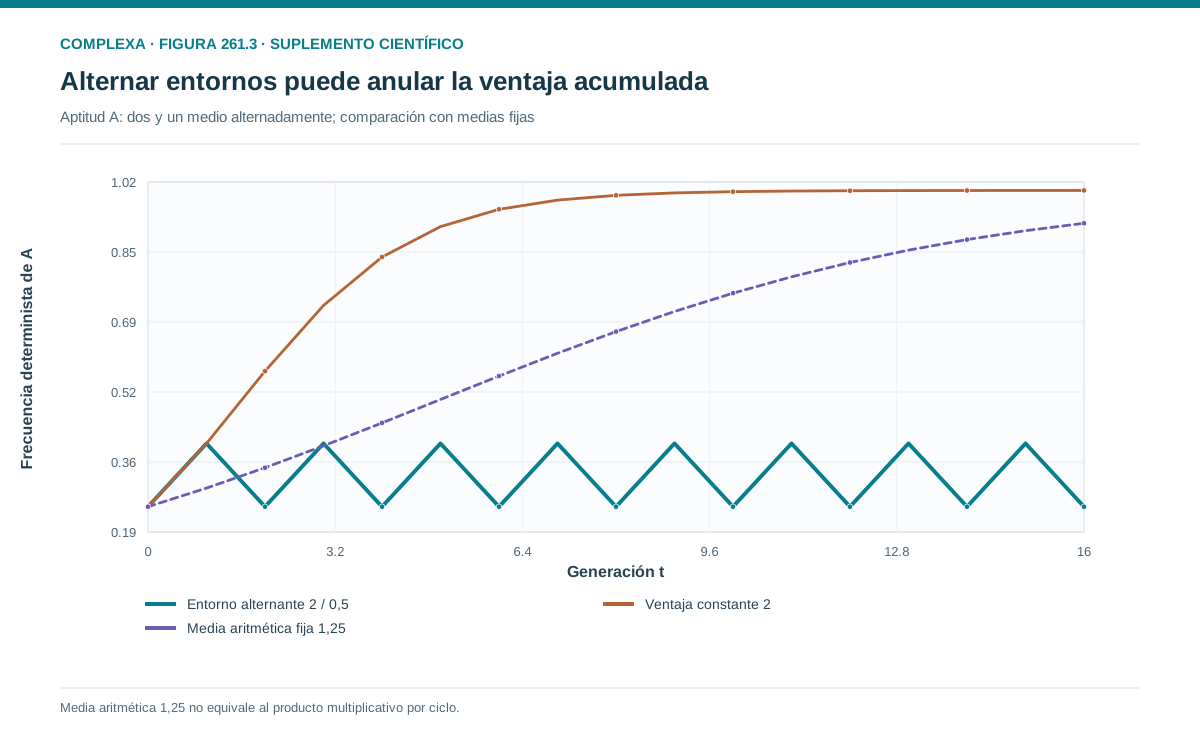
Bajo el ambiente inicial y transmisión fiel, la razón entre las frecuencias de A y B se duplica en cada generación. Si la frecuencia inicial es un cuarto, después de t generaciones deterministas resulta . Las primeras frecuencias son 0,4; aproximadamente 0,5714; 0,7273 y 0,8421.
Bajo estos supuestos la trayectoria se aproxima a uno sin ninguna finalidad, siempre que la ventaja permanezca constante mientras cambia la población. Si esa ventaja disminuye cuando A se hace común, la trayectoria puede detenerse en una mezcla o cambiar de dirección.
Supongamos dos ambientes que alternan. En el primero, A tiene contribución dos y B uno; en el segundo, A tiene un medio y B uno. La razón de frecuencias se multiplica primero por dos y después por un medio, de modo que tras el ciclo completo vuelve al valor inicial, siempre que no intervengan otros procesos.
La contribución aritmética media de A entre esos ambientes es 1,25, superior al valor uno de B. Sin embargo, su multiplicación relativa por ciclo es uno. Para crecimiento multiplicativo a lo largo del tiempo, promediar aritméticamente contribuciones puede dar una impresión equivocada.
Este ejemplo no incluye cambios de tamaño, dependencia de densidad ni extinción. Introducirlos puede alterar la comparación. Su función es mostrar que una media agregada debe corresponder a la operación temporal del proceso.
La frecuencia también puede modificar contribuciones. Un tipo que aprovecha un recurso poco usado puede perder ventaja cuando muchos lo adoptan. Una estrategia cooperativa puede depender de con quién interactúa. Estos casos requieren funciones de aptitud condicionadas a la composición poblacional y conectan con los juegos evolutivos del módulo siguiente.
Por eso, decir que un rasgo es adaptativo exige precisar respecto de qué ambiente, escala temporal y criterio reproductivo. Una ventaja localizada no demuestra beneficio en todas las condiciones ni aumento indefinido de complejidad o bienestar.
261.7. Adaptación, función y consecuencias actuales
Un rasgo puede tener una consecuencia útil en el presente sin haberse originado por selección para esa consecuencia. También puede haber sido favorecido en un ambiente anterior y resultar costoso en uno nuevo. Distinguir origen, mantenimiento y uso actual evita explicaciones que convierten cualquier utilidad observada en una historia evolutiva completa.
Consideremos una estructura que apareció junto con otra característica. Más tarde puede usarse en una función nueva. La utilidad actual sugiere una hipótesis sobre su mantenimiento, pero no demuestra que esa función explique su aparición. Necesitamos evidencia histórica, comparativa o experimental que permita distinguir secuencias.
También puede haber subproductos de restricciones. Si dos rasgos comparten una base de desarrollo, seleccionar uno puede modificar el otro. El segundo cambio no requiere una ventaja independiente. Una narración que inventa una función para cada componente corre el riesgo de ignorar correlaciones y dependencias.
La selección actúa sobre diferencias que afectan contribuciones en un contexto. No optimiza necesariamente cada parte por separado. Compensaciones entre reproducción temprana y tardía, entre crecimiento y mantenimiento o entre funciones incompatibles pueden impedir maximizar todos los componentes simultáneamente.
Un óptimo local dentro de restricciones tampoco es un diseño perfecto. El proceso depende de variantes accesibles y de su historia. Una transición hacia otra configuración puede exigir pasos intermedios desfavorables o improbables. Comparar un organismo real con una solución imaginada sin restricciones no explica por qué esa solución no apareció.
La palabra función puede usarse en sentidos distintos (efecto causal actual, contribución al funcionamiento de un sistema o efecto cuya selección explica la persistencia). Conviene declarar cuál se pretende. Una misma observación puede sostener el primer sentido y ser insuficiente para el tercero.
En un estudio concreto podemos separar preguntas. ¿Qué efecto produce el rasgo? ¿Cómo cambia ese efecto al intervenir? ¿Afecta la contribución reproductiva? ¿Hay variantes transmisibles? ¿Qué historia explica su distribución? Cada pregunta requiere evidencia diferente y ninguna debe responderse solo con plausibilidad narrativa.
La evolución sin finalidad no impide estudiar la organización funcional. Exige explicar cómo esa organización se produjo y se conserva mediante mecanismos que no necesitan anticipar el resultado. La adaptación se vuelve una hipótesis contrastable cuando especificamos alternativas, condiciones y consecuencias de transmisión.
261.8. Unidades, niveles y cambios de composición
La entidad cuya frecuencia seguimos puede no coincidir con la entidad que se reproduce como un todo. Los genes se transmiten mediante organismos, las células forman tejidos y las interacciones entre individuos afectan contribuciones. Analizar niveles requiere distinguir portadores, variantes y procesos de reproducción.
Lewontin señaló que las condiciones de variación, diferencias de contribución y herencia pueden examinarse en distintas unidades [1]. Aplicarlas no significa que todas las unidades sean equivalentes ni que cualquier agrupación sea una unidad de selección; debe haber un mecanismo pertinente de continuidad y contribución diferencial.
En una población de organismos, un rasgo puede favorecer la reproducción de sus portadores y perjudicar el desempeño del grupo. En otros casos, interacciones entre grupos pueden modificar su composición. Describir esos efectos requiere una contabilidad explícita, sin atribuir de forma automática un interés colectivo a la evolución.
La elección de nivel también afecta las medidas. Un aumento del número de grupos no es lo mismo que un aumento del número de individuos dentro de cada grupo. Una variante puede difundirse por mayor crecimiento de ciertos grupos o por cambios internos. La misma frecuencia global puede resultar de combinaciones distintas.
Podemos ilustrarlo con dos grupos de igual tamaño inicial y frecuencias A diferentes. Si ambos conservan sus frecuencias internas pero uno deja más descendientes grupales o crece más, la frecuencia global cambia por ponderación. Si sus tamaños permanecen fijos pero A aumenta dentro de cada grupo, el mecanismo agregado es otro.
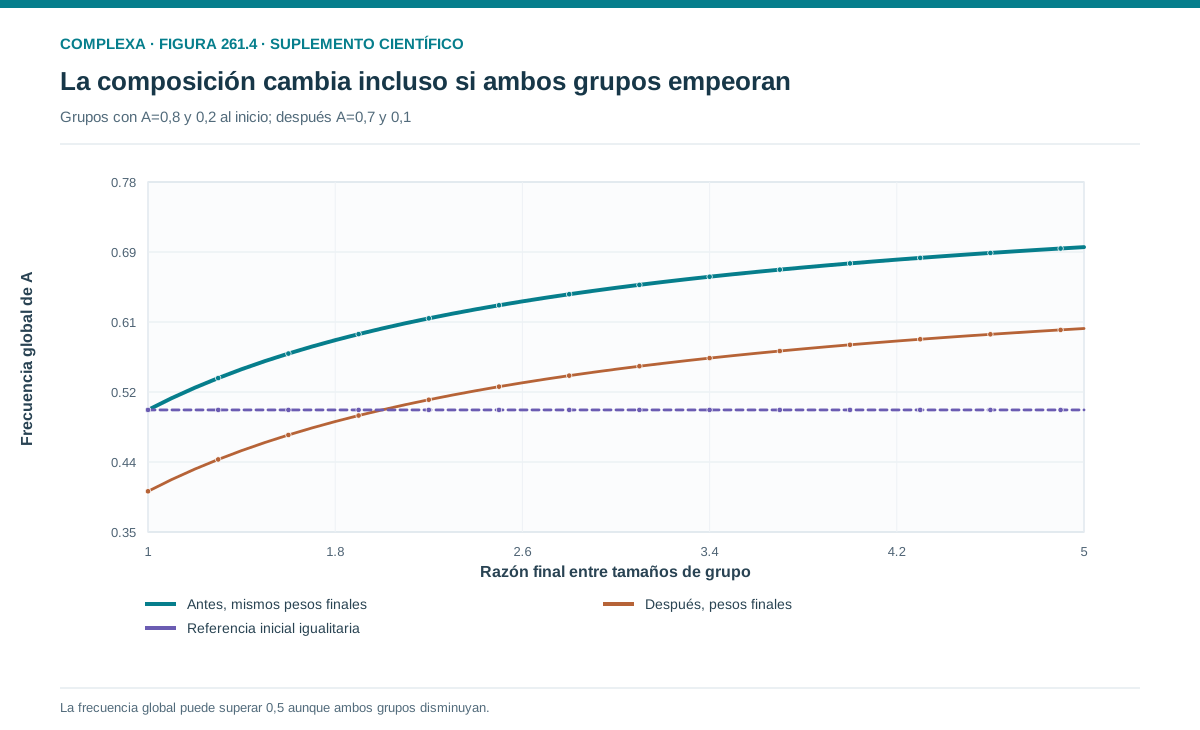
Tomemos dos grupos de cien individuos, con frecuencias A de 0,8 y 0,2. La frecuencia global es 0,5. Si el primero crece hasta doscientos individuos conservando su composición y el segundo permanece en cien, hay ciento ochenta A entre trescientos individuos. La frecuencia global sube a 0,6 sin cambio dentro de los grupos, porque el grupo inicialmente rico en A recibe mayor peso en el total.
Puede aparecer incluso una inversión entre tendencias internas y agregadas. Supongamos que las frecuencias internas bajan a 0,7 y 0,1, pero el primer grupo termina con cuatrocientos individuos y el segundo con cien. La frecuencia global será doscientos noventa dividido por quinientos, igual a 0,58. A disminuyó dentro de ambos grupos y aumentó en el conjunto. No hay contradicción, porque cambiaron las ponderaciones.
Estos números no prueban que A haya causado el mayor crecimiento del primer grupo. La composición puede estar correlacionada con otro factor ambiental que explique ese crecimiento. Una descomposición detecta dónde aparece el cambio y evita errores de agregación; la interpretación causal necesita comparar grupos y condiciones de manera pertinente.
Para separar esos procesos debemos registrar tamaños y composiciones, además de la frecuencia total. La ecuación de Price puede organizar descomposiciones por niveles cuando se definen las correspondencias entre progenitores y descendientes [3]. Elegir el nivel que da la explicación causal más útil requiere información que la identidad no contiene.
También hay procesos de clasificación que imitan la selección sin reproducción. Si una muestra pierde ciertos individuos por un criterio administrativo, su composición cambia, pero llamar evolución biológica a ese filtrado sería inadecuado salvo que forme parte de un proceso transmisible pertinente. La analogía debe conservar las condiciones esenciales.
El análisis multinivel se desarrollará más adelante. Por ahora, la exigencia es identificar qué unidades persisten, cómo generan continuidad y qué diferencias se acumulan. El lenguaje evolutivo gana precisión cuando cada nivel tiene variables y transiciones explícitas.
261.9. Cómo contrastar una explicación evolutiva
Una explicación evolutiva debe producir predicciones que distingan mecanismos. Observar un rasgo extendido y proponer una ventaja plausible no basta. Podemos preguntar si hay variantes transmisibles, si cambian las contribuciones y si la distribución observada es compatible con procesos alternativos.
En el ejemplo de dos tipos, podemos medir contribuciones por individuo y verificar si la frecuencia siguiente coincide con la predicción proporcional. También podemos mantener constante la composición y cambiar el ambiente para comprobar si la ventaja se invierte. Estas intervenciones separan una propiedad contextual de una superioridad atribuida al tipo en cualquier condición.
La transmisión requiere registros entre generaciones. Si el rasgo parental no predice el de los descendientes bajo condiciones pertinentes, la respuesta acumulativa esperada debe revisarse. Con un ambiente compartido, la semejanza entre generaciones es compatible con herencia genética y también con efectos de ese ambiente. El diseño debe distinguir canales posibles.
Para evaluar la deriva comparamos réplicas y distribuciones de trayectorias. Un promedio estable puede coexistir con grandes cambios en poblaciones individuales. La variabilidad entre réplicas contiene información que una única trayectoria pierde y permite comprobar si el proceso reproductivo supuesto describe adecuadamente la dispersión observada.
La mutación y la selección pueden producir patrones finales semejantes mediante tasas diferentes. Un tipo puede ser frecuente porque aparece muchas veces, porque deja más descendientes o por ambos procesos. Diseñar fases que separen generación de variantes y exposición selectiva ayuda a distinguir esas posibilidades, como ilustra la lógica del experimento de fluctuación [2].
Las comparaciones históricas requieren considerar la dependencia entre linajes. Muchas especies que comparten un rasgo pueden haberlo heredado de un ancestro común, en cuyo caso no son adquisiciones independientes. Contar cada especie como evidencia separada de adaptación puede exagerar el apoyo. La historia debe formar parte del análisis.
También conviene declarar resultados que refutarían la hipótesis. Si una ventaja propuesta desaparece al controlar una variable, si el rasgo no se transmite o si un modelo neutral explica la distribución, la narración inicial necesita revisión. La flexibilidad para cambiar de explicación es distinta de acomodar cualquier resultado mediante nuevas ventajas imaginadas.
El objetivo es construir un conjunto coherente de evidencias sobre variación, transmisión, consecuencias y alternativas, sin exigir una única prueba definitiva. Cada pieza limita lo que puede afirmarse y ayuda a localizar las incertidumbres que permanecen.
261.10. Un proceso histórico con mecanismos explícitos
La evolución puede producir direcciones persistentes sin anticipar metas. La combinación de variación, transmisión y reproducción diferencial explica cómo ciertos tipos aumentan bajo condiciones definidas. El azar, la producción de variantes y el cambio ambiental modifican esa dinámica y pueden impedir que una ventaja se traduzca en un destino seguro.
El ejemplo determinista mostró el aumento de frecuencia por contribución relativa. La transmisión imperfecta redujo la respuesta y el muestreo finito permitió la pérdida de una variante favorecida. La alternancia ambiental mostró que una comparación promedio puede ser engañosa si ignora la composición multiplicativa del proceso.
Estas diferencias impiden identificar evolución con progreso general. Una población puede adaptarse a un contexto y perder desempeño en otro. Puede simplificar estructuras, conservar variantes neutras o acumular consecuencias de restricciones. El aumento de complejidad no es una condición necesaria de cambio evolutivo.
También debemos distinguir adaptación individual y cambio poblacional. Un organismo puede aprender durante su vida sin que esa experiencia modifique directamente la transmisión genética. Una población puede cambiar de composición sin que sus integrantes aprendan. Los mecanismos pueden interactuar, pero no deben confundirse.
Las explicaciones funcionales necesitan evidencia sobre historia y alternativas. La utilidad actual de un efecto no demuestra, sin esa evidencia, que haya habido selección para él. La contabilidad de contribuciones organiza preguntas, mientras que los experimentos, las comparaciones y los modelos de transmisión permiten evaluar mecanismos.
Los próximos capítulos introducirán los modelos de Wright–Fisher y de Moran, dos procesos estocásticos básicos. Sus reglas de reemplazo son distintas y producen expresiones diferentes para deriva, tiempos y probabilidades. Estudiarlos permitirá transformar afirmaciones generales sobre azar y selección en cálculos reproducibles.
La continuidad con los módulos anteriores es metodológica. Un resultado colectivo no identifica automáticamente su causa. Para comprenderlo necesitamos describir unidades, reglas y condiciones, calcular sus consecuencias y buscar observaciones que distingan explicaciones rivales. La ausencia de finalidad es compatible con la estructura y obliga a explicar cómo esa estructura emerge y persiste.
Referencias
[1] Lewontin, R. C. (1970). The units of selection. Annual Review of Ecology and Systematics, 1, 1–18. DOI.
[2] Luria, S. E., y Delbrück, M. (1943). Mutations of bacteria from virus sensitivity to virus resistance. Genetics, 28(6), 491–511. DOI.
[3] Price, G. R. (1970). Selection and covariance. Nature, 227, 520–521. DOI. El registro editorial remite a un erratum, Nature, 228, 1011. No se recuperó su texto durante esta revisión; la identidad y los ejemplos de este capítulo se derivan y comprueban explícitamente.