Módulo 27. Evolución, variación y restricciones
263.1. Cambiar una unidad cada vez
El modelo de Moran describe una población donde nacimientos y reemplazos ocurren de uno en uno. Cada evento puede aumentar o reducir en una unidad el número de copias de una variante, sin sustituir de una vez una generación completa. Esa diferencia permite estudiar poblaciones con generaciones superpuestas y comparar escalas temporales.
Moran formuló modelos de este tipo para modificar la estructura generacional de otros procesos de genética de poblaciones [1]. Su análisis muestra que la regla de reproducción y reemplazo afecta la dinámica, aunque algunas probabilidades finales coincidan con las de Wright–Fisher.
Usaremos una población haploide de M individuos, con tipos A y B. El estado i es el número de A. Cada evento selecciona un progenitor y un individuo de la población anterior que será reemplazado por su descendiente. No hay mutación en la versión inicial.
El progenitor se selecciona proporcionalmente a una contribución reproductiva. A tiene una contribución relativa positiva r y B tiene contribución uno. El individuo reemplazado se elige uniformemente y con independencia del progenitor, de modo que el propio progenitor puede ser seleccionado para reemplazo.
Esta última convención produce eventos nulos, sin cambio de composición. También puede nacer un A y reemplazar a otro A, o un B y reemplazar a otro B. Contar esos eventos es necesario para calcular tiempos, aunque no modifiquen la frecuencia.
La denominación «reemplazo continuo» puede referirse a un proceso en tiempo continuo, pero primero describiremos la cadena de eventos y después añadiremos un reloj de Poisson. Separar ambas partes permite distinguir probabilidades de fijación y duración física, porque la secuencia de cambios puede ser la misma bajo relojes diferentes.
El caso principal tendrá cuatro individuos y ventaja relativa dos para A. Calcularemos probabilidades de subir, bajar o permanecer, derivaremos la fijación y compararemos tiempos con neutralidad. Queremos identificar qué propiedades dependen del sesgo reproductivo y cuáles del calendario de reemplazo.
263.2. Probabilidades de aumento y disminución
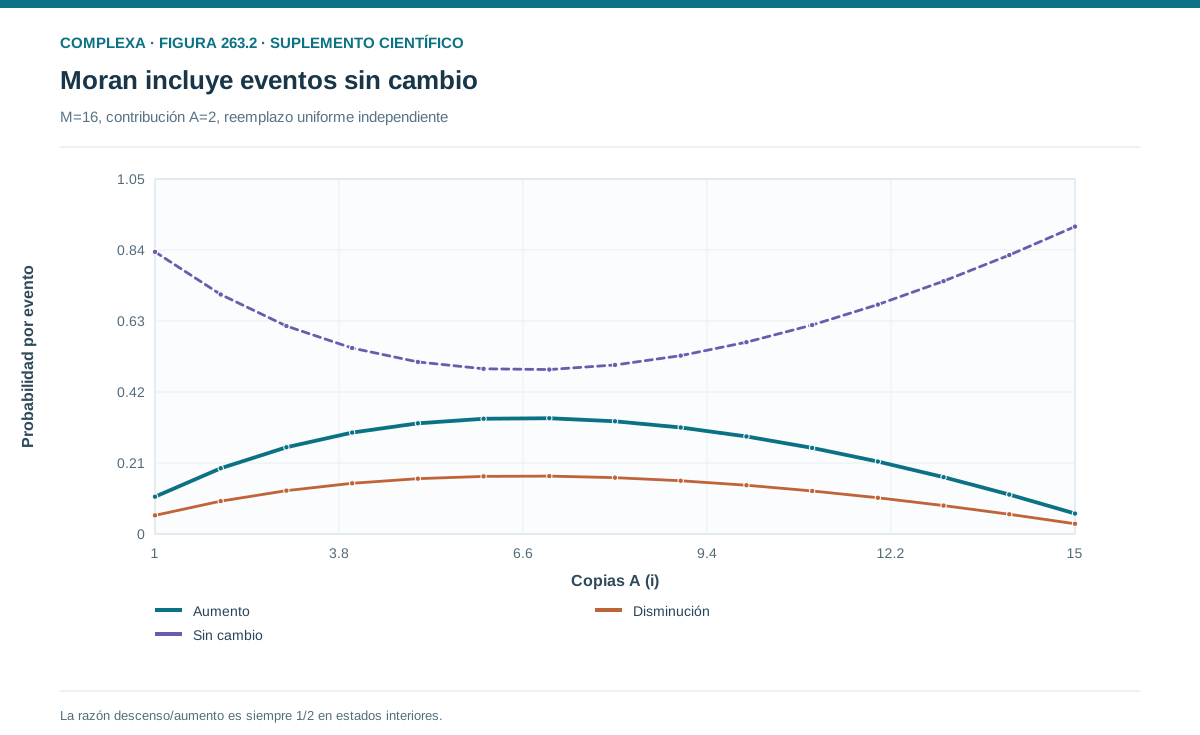
Si hay i individuos A, la contribución total es . La probabilidad de seleccionar un progenitor A es . Para aumentar el número de A, su descendiente debe reemplazar a un B, lo que ocurre con probabilidad .
Análogamente, disminuir requiere seleccionar un progenitor B y reemplazar a un A. Las probabilidades por evento son
La probabilidad restante es . En los extremos, sin mutación, la población permanece fijada. Desde estados interiores solo puede pasar a un estado vecino o quedarse donde estaba.
Con M igual a cuatro, i igual a uno y r igual a dos, el progenitor es A con probabilidad dos quintos. La probabilidad de aumentar a dos A es 0,3; la de perder el único A es 0,15 y la de permanecer con uno es 0,55.
El cambio esperado en número de A por evento es 0,15 y en frecuencia es 0,0375, porque cada unidad es un cuarto de la población. No debemos comparar directamente 0,15 copias con un cambio de frecuencia de otro modelo.
Con dos A, las probabilidades de subir y bajar son un tercio y un sexto; con tres A, tres catorceavos y tres veintiochoavos. La ventaja relativa favorece aumentos, pero su probabilidad absoluta depende de cuántas interacciones entre tipos son posibles.
Cuando una variante está cerca de fijarse, muchos eventos reemplazan individuos del mismo tipo y no cambian la composición. Esa lentitud de los movimientos efectivos afecta la duración. Una cadena que omite eventos nulos puede conservar probabilidades de destino y, al mismo tiempo, representar un reloj distinto.
Las fórmulas también permiten verificar una implementación. Deben formar una distribución válida, respetar los límites y reducirse al caso neutral cuando r vale uno. Si el programa permite saltar de una a tres copias en un solo evento, no está ejecutando la versión de Moran definida aquí.
263.3. La razón de transiciones y la fijación
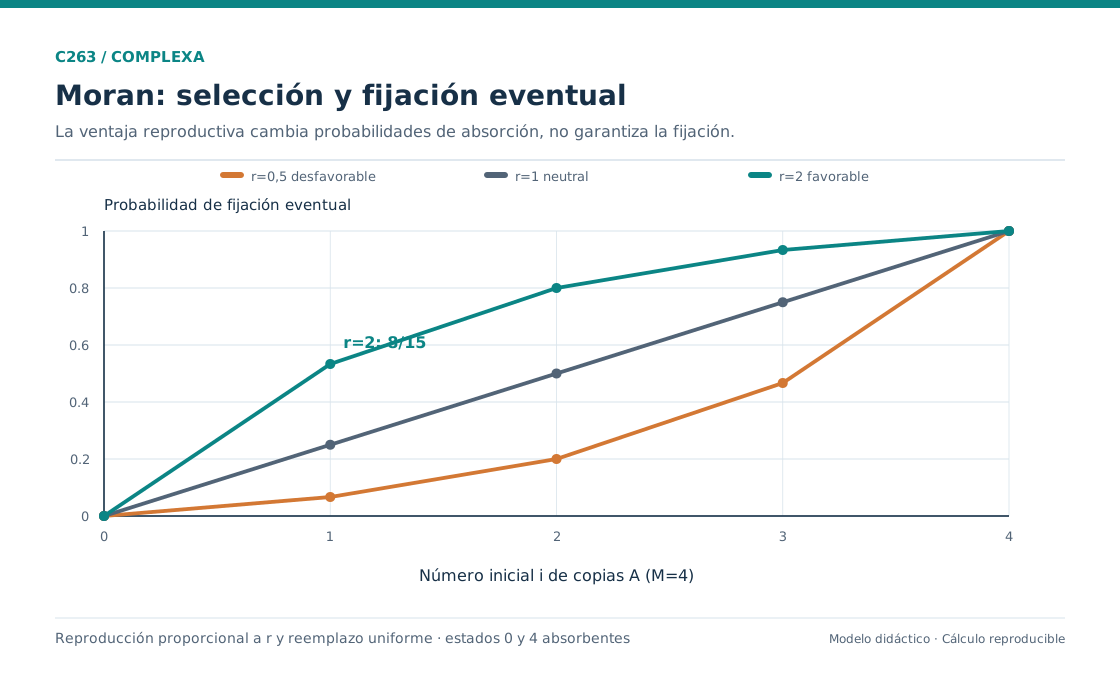
En cualquier estado interior, la razón entre la probabilidad de disminuir y la de aumentar es , porque los factores que dependen de i y del tamaño se cancelan. Esta propiedad simplifica el cálculo de fijación para contribuciones relativas constantes.
Sea la probabilidad de que A termine fijado desde i copias. La ecuación de primer paso incluye aumentos, disminuciones y permanencia; al reorganizarla, obtenemos una relación entre diferencias de probabilidad de fijación de estados vecinos
Por tanto, los incrementos sucesivos de forman una progresión geométrica de razón . Al imponer y , obtenemos, para r distinto de uno,
En neutralidad, el límite es . La expresión es exacta para la regla de nacimiento y reemplazo declarada, con contribuciones constantes y sin mutación. No vale para cualquier estructura espacial o ciclo de vida.
Con cuatro individuos y r igual a dos, una copia A tiene probabilidad de fijación , aproximadamente 0,5333. Dos copias tienen probabilidad 0,8 y tres, . La ventaja aumenta las probabilidades respecto de los valores neutrales 0,25; 0,5 y 0,75.
Una variante desfavorecida tampoco tiene probabilidad cero de fijarse. Si r es un medio y comienza con una copia entre cuatro, su probabilidad es , aproximadamente 0,0667. El muestreo permite resultados contrarios a la dirección esperada de selección.
La derivación puede reconstruirse mediante incrementos. Llamemos d al aumento de probabilidad de fijación entre cero y una copia. Con r igual a dos, los incrementos siguientes son d dividido por dos, por cuatro y por ocho. Deben sumar uno para pasar de probabilidad cero a uno a lo largo de los cuatro estados. Así, d multiplicado por quince octavos es uno y d vale ocho quinceavos. Sumar los dos primeros incrementos da cuatro quintos para dos copias.
También podemos preguntar por la fijación en el menor tiempo posible. Desde una copia hacen falta tres aumentos consecutivos para alcanzar cuatro en tres eventos. Su probabilidad es 0,3 multiplicado por un tercio y por tres catorceavos, es decir, tres ciento cuarentavos, aproximadamente 0,02143. Cualquier permanencia o disminución impide fijarse dentro de esos tres eventos. La probabilidad eventual, mucho mayor, incorpora trayectorias con esperas, retrocesos y recuperaciones.
La fórmula distingue ventaja y certeza. Incluso una variante que duplica su contribución puede perderse cuando comienza rara; en el caso principal, la probabilidad de pérdida eventual es . Una sola trayectoria en que A desaparece no refuta la ventaja definida.
También muestra que la probabilidad de fijación y la complejidad del rasgo no tienen una relación automática. El modelo usa contribuciones y frecuencias; no contiene ninguna variable que premie sofisticación, utilidad humana o perfección. Esas interpretaciones no pueden extraerse de una ecuación que no las representa.
263.4. Neutralidad y comparación con Wright–Fisher
Cuando r vale uno, las probabilidades de subir y bajar coinciden y son . El cambio esperado de frecuencia es cero. Como en Wright–Fisher neutral, la frecuencia es una martingala y la probabilidad de fijación es la frecuencia inicial.
La coincidencia de destino no implica que ambos procesos sean iguales. Wright–Fisher puede cambiar muchas copias en una generación; Moran cambia como máximo una por evento. Comparar sus distribuciones de transición, sus tiempos y sus estructuras genealógicas exige unidades consistentes.
En un evento neutral de Moran, la varianza del cambio de frecuencia es . El factor dos aparece porque hay movimientos de igual magnitud en dos direcciones. Los eventos nulos tienen probabilidad positiva y desplazamiento cero.
Si usamos aproximadamente M eventos como una unidad de recambio y la frecuencia varía poco durante ese intervalo en una población grande, la varianza acumulada inicial tiene escala . Wright–Fisher tiene varianza generacional . Esta comparación revela un factor temporal que debe tenerse en cuenta.
La aproximación no afirma que sumar M varianzas calculadas en una frecuencia fija produzca exactamente la distribución después de M eventos. La frecuencia cambia durante el proceso y modifica las probabilidades siguientes. Para resultados exactos debemos usar la cadena completa.
Podemos elegir una escala de tiempo diferente para igualar intensidades de deriva en un límite apropiado. Eso facilita comparar aproximaciones continuas, aunque los ciclos de vida siguen siendo distintos. La interpretación biológica del reloj debe justificarse por tasas de nacimiento y reemplazo observadas.
En el ejemplo de cuatro individuos, una copia neutral tiene probabilidad de aumento y de disminución de tres dieciseisavos cada una; la de permanecer es cinco octavos. En Wright–Fisher, desde una copia, era posible saltar directamente a cuatro. En Moran hacen falta al menos tres aumentos efectivos.
Un resultado compartido puede surgir de propiedades generales, como la neutralidad y la absorción, mientras otros detalles dependen de las reglas. Por eso identificar un proceso solo por su probabilidad final de fijación puede ser insuficiente; las trayectorias y los tiempos contienen información adicional.
263.5. Eventos nulos y duración de absorción
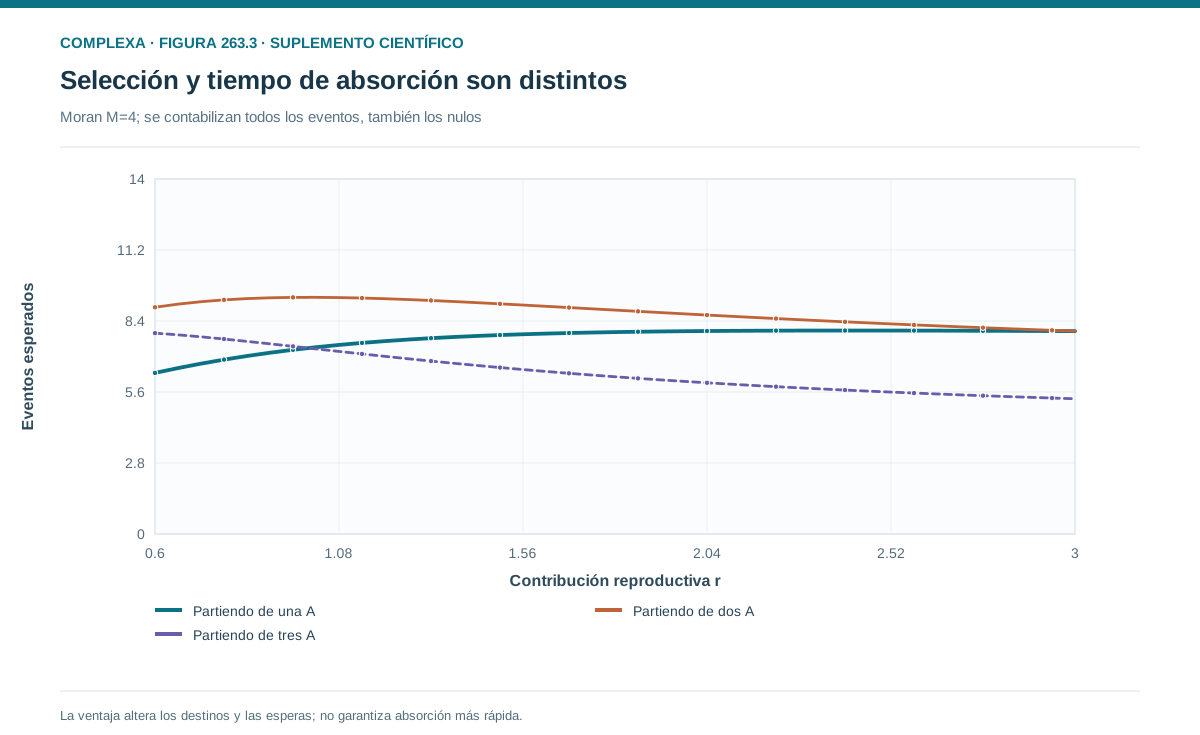
Para calcular el tiempo esperado hasta cero o M, debemos contar todos los eventos, incluidos los que no cambian la composición. Si es esa duración, satisface una ecuación de primer paso que suma una unidad de tiempo a la duración esperada posterior
Los tiempos de frontera son cero. Reorganizar la ecuación produce un sistema lineal sobre los estados interiores. El término incorpora esperas que una cadena de movimientos efectivos omitiría.
Con cuatro individuos neutrales, el tiempo esperado de absorción desde una o tres copias es , aproximadamente 7,333 eventos; desde dos copias es , aproximadamente 9,333. Son duraciones hasta cualquiera de los extremos, sin condicionar qué variante se fija.
Con ventaja r igual a dos, los tiempos desde una, dos y tres copias son ocho, y seis eventos. La ventaja de A no reduce de manera monótona todos los tiempos de absorción: desde una copia, el tiempo promedio aumenta respecto del caso neutral.
Esto no contradice que A tenga más probabilidad de fijarse. Cambian tanto las probabilidades de destino como las duraciones de las trayectorias que llegan a cada destino. Un promedio que mezcla pérdidas y fijaciones puede aumentar aunque la dirección selectiva favorezca a A.
Si queremos saber cuánto tarda A en fijarse entre las trayectorias donde lo logra, necesitamos un tiempo condicionado. Los valores anteriores no sirven directamente, porque condicionar transforma la distribución de rutas y, con ella, el sistema de ecuaciones.
También podemos calcular el tiempo hasta el próximo cambio efectivo de composición. Desde una copia neutral entre cuatro, la probabilidad de cambio por evento es tres octavos, de modo que la espera geométrica media es ocho tercios de evento. Con r igual a dos, la probabilidad de cambio es 0,45 y la espera media es veinte novenos.
Eliminar eventos nulos acelera el registro de movimientos, pero puede sesgar una comparación de duración si no se conserva ese tiempo de espera. Una implementación eficiente puede saltarlos mediante un reloj apropiado; borrarlos sin compensación cambia la unidad temporal.
Si conservamos únicamente los eventos donde la composición cambia, la probabilidad condicional de subir es r dividido por uno más r. En el caso principal vale dos tercios y la de bajar, un tercio. Esa caminata sobre estados vecinos conserva la probabilidad de fijación, porque solo ha eliminado esperas. Su número esperado de movimientos efectivos desde una copia es 3,4, frente a los ocho eventos totales del proceso original.
El valor 3,4 admite una comprobación independiente. Cada movimiento efectivo seleccionado tiene incremento medio de un tercio. Al absorberse, el número esperado de A es cuatro veces ocho quinceavos, porque vale cuatro si se fija y cero si se pierde. Restar la copia inicial da un desplazamiento medio de diecisiete quinceavos y dividirlo por un tercio recupera diecisiete quintos de movimientos. El argumento usa el tiempo de absorción finito de esta cadena y no debe trasladarse sin condiciones a cualquier proceso con parada aleatoria.
En neutralidad, la caminata de movimientos efectivos tiene probabilidades iguales en ambas direcciones y un tiempo medio de absorción de tres movimientos desde una copia entre cuatro, mientras que el proceso original requería 7,333 eventos en promedio. Estas cifras permiten comprobar una simulación acelerada, que puede generar directamente movimientos efectivos pero debe añadir esperas con la distribución de cada estado si pretende informar la duración original.
La duración es una propiedad del mecanismo completo y del reloj. Informar un número de pasos sin aclarar qué cuenta cada paso impide comparar procesos de manera significativa.
263.6. Añadir un reloj de tiempo continuo
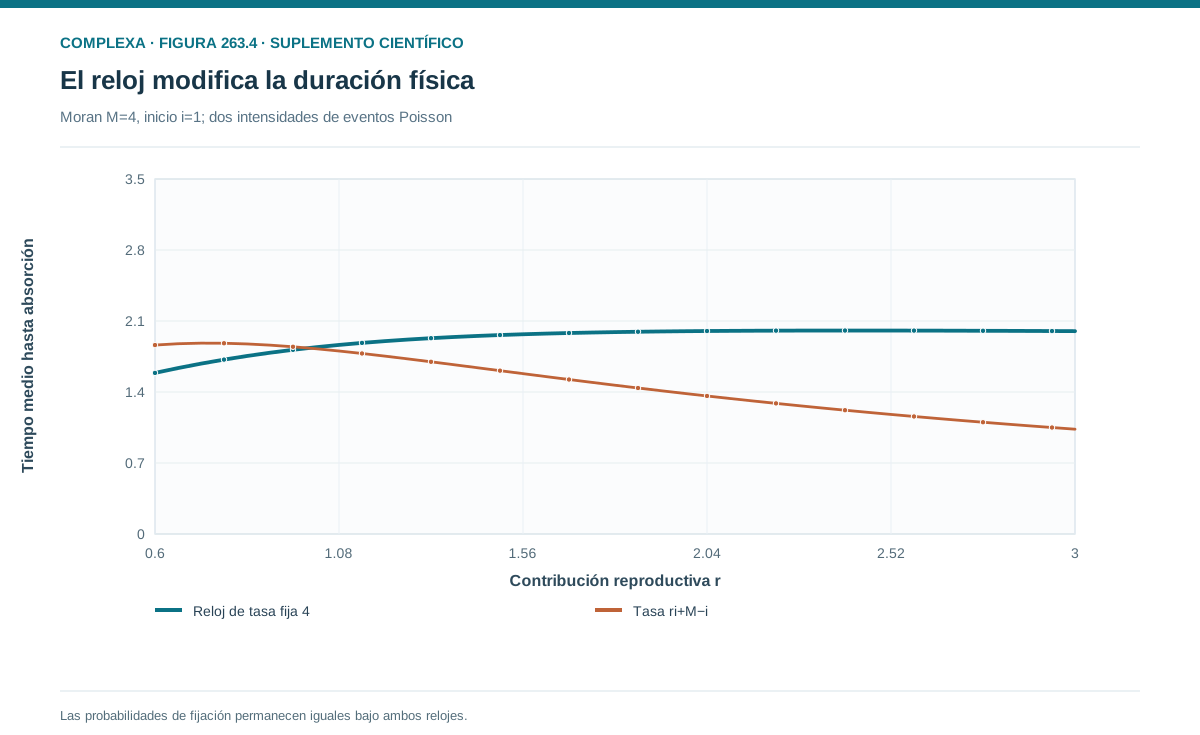
La cadena de eventos puede insertarse en tiempo continuo. Una opción usa un reloj de Poisson con tasa total constante M. Los intervalos entre eventos son exponenciales con media y cada evento aplica las probabilidades de Moran ya definidas.
Bajo ese reloj independiente del estado, el tiempo físico esperado de absorción es el número esperado de eventos dividido por M. En el caso neutral de cuatro individuos y una copia A, resulta , aproximadamente 1,833 unidades de tiempo; con r igual a dos, resulta dos unidades.
Esta convención identifica una unidad temporal con M eventos esperados, que no forman una generación de reemplazo simultáneo. Algunos individuos pueden reproducirse o ser reemplazados varias veces mientras otros no participan. La equivalencia de conteo promedio no implica equivalencia de historias individuales.
Otra opción asigna a cada A una tasa de nacimiento r y a cada B una tasa uno. La tasa total de eventos pasa a ser , que depende de la composición. Condicionado a que ocurra un nacimiento, la selección del progenitor sigue siendo proporcional a esas tasas.
La cadena de composiciones observada en los eventos puede ser la misma, pero el reloj cambia. Los estados ricos en A con r mayor que uno generan eventos más rápidamente. Por tanto, las probabilidades de fijación permanecen iguales mientras las duraciones físicas pueden ser diferentes.
En el ejemplo, el reloj de tasas individuales tiene intensidades cinco, seis y siete en los estados con una, dos y tres copias A. Para calcular la duración física, la ecuación de primer paso sustituye la unidad por evento por una espera media igual al inverso de esa intensidad. El sistema resultante da tiempos de 62/45, siete quintos y 41/45 desde esos estados.
Desde una copia, 62/45 equivale aproximadamente a 1,378 unidades, distinto de las dos unidades obtenidas con reloj total constante de tasa cuatro. La probabilidad de fijación sigue siendo ocho quinceavos en ambos casos. Este contraste separa de manera exacta una propiedad del recorrido por composiciones de otra que mide cuánto se tarda en recorrerlo. Elegir un reloj sin declararlo puede producir discrepancias incluso cuando dos programas generan las mismas transiciones.
Esta distinción separa la aptitud relativa de la velocidad absoluta. Multiplicar todas las tasas por una constante conserva quién se reproduce con qué probabilidad condicional y acelera el proceso físico. De una medida de fijación sola no puede inferirse esa escala temporal.
El orden de nacimiento y reemplazo también debe declararse. Nuestra regla elige al individuo que desaparece entre la población anterior. Si primero añadimos una copia y después elegimos entre M más uno, aparecen probabilidades y esperas diferentes; algunas propiedades pueden conservarse y otras no.
En un modelo empírico, el reloj debe relacionarse con eventos observables, como divisiones, muertes, reemplazos o unidades de recambio pertinentes. Elegir una convención por comodidad matemática es válido para un ejemplo, pero su interpretación debe quedar explícita.
La formulación continua es útil porque permite combinar tasas y eventos asincrónicos. Su precisión depende de no confundir el proceso de selección del evento con la distribución del tiempo que transcurre hasta él.
263.7. Selección débil, frecuencia y límites de la fórmula
La expresión de fijación permite estudiar una ventaja pequeña escribiendo , con s cercano a cero. Al expandir alrededor de la neutralidad, el primer cambio de probabilidad es proporcional a s y depende de la frecuencia inicial.
Para la versión definida, la aproximación de primer orden es . Con cuatro individuos y una copia inicial, el coeficiente de s es tres octavos. Una ventaja relativa de uno por ciento produce una corrección pequeña sobre la probabilidad neutral de un cuarto.
Con r igual a 1,01, la fórmula exacta para una copia entre cuatro da aproximadamente 0,2537437 y la expansión de primer orden da 0,25375, una diferencia pequeña en esta escala. Con r igual a dos, la misma expansión daría 0,625, mientras la fórmula exacta da aproximadamente 0,5333. El error aumenta porque hemos usado una aproximación local lejos de la neutralidad.
Esta comparación permite evaluar una aproximación por la magnitud que interesa. Un error pequeño en probabilidad puede ser aceptable para una ilustración y resultar relevante al comparar hipótesis muy cercanas. Debemos declarar la tolerancia y el régimen, porque la calidad de una fórmula depende de ambos.
Esta expansión requiere selección débil. Sustituir s igual a uno, correspondiente a r igual a dos, no da una aproximación controlada. Cuando disponemos de la fórmula exacta, podemos comprobar directamente el error de truncar la expansión.
La contribución relativa también puede depender de la frecuencia. Si r cambia con i, la razón de transiciones ya no es una constante común; el cálculo de fijación usa entonces productos de razones entre estados y la fórmula geométrica simple deja de aplicarse.
Una generalización para una cadena de nacimiento y muerte usa sumas de productos de . Esa estructura permite analizar ventajas que se invierten según la composición, pero exige especificar todas las probabilidades interiores. Llamar Moran al proceso no determina automáticamente su selección.
La mutación cambia todavía más el problema. Si una copia puede transformarse al reproducirse, los extremos pueden dejar de ser absorbentes. Hablar de probabilidad de fijación eventual permanente requiere entonces redefinir el evento, porque una población monomórfica puede volver a generar diversidad.
También debemos distinguir selección en nacimiento y selección en muerte. Favorecer la reproducción de A no equivale necesariamente a reducir su probabilidad de desaparecer bajo cualquier normalización. El orden de etapas y la forma de elegir competidores pueden modificar las transiciones.
Estas variantes muestran por qué conviene derivar las probabilidades desde las reglas. Una fórmula recordada solo es válida cuando corresponde al mecanismo implementado. El procedimiento correcto comienza preguntando quién se reproduce, quién desaparece, qué se transmite y qué información determina cada selección.
263.8. Estructura espacial y actualización
Hasta ahora, una vez seleccionado el progenitor, todos los individuos tenían la misma probabilidad de ser reemplazados. En una población espacial o una red, el descendiente puede competir únicamente por posiciones vecinas. La ubicación de una variante pasa a influir, además de su cantidad.
Dos configuraciones con el mismo número de A pueden tener probabilidades de cambio distintas si sus fronteras con B son diferentes. El conteo i deja de ser un estado suficiente; necesitamos representar posiciones o alguna descripción estructural que conserve la información relevante.
Consideremos cuatro posiciones conectadas en una línea. En una variante neutral, el progenitor se elige uniformemente y su descendiente reemplaza a un vecino elegido uniformemente, sin autoenlaces. La configuración AABB tiene una sola frontera entre tipos. Su probabilidad de aumentar A es un octavo, igual que la de disminuir; los demás eventos no cambian la composición.
La configuración ABAB tiene dos copias A, igual que la anterior, pero todos los vecinos de cada individuo son del tipo opuesto. Cada evento cambia la composición, con probabilidad un medio de aumentar y un medio de disminuir. Así, ya en el caso neutral, la diferencia entre configuraciones no puede representarse mediante una única fila de transición para i igual a dos.
Lieberman, Hauert y Nowak estudiaron la dinámica evolutiva en grafos y mostraron que la estructura puede modificar probabilidades de fijación bajo reglas específicas [2]. Algunos grafos y condiciones conservan el comportamiento de fijación del proceso bien mezclado; otros pueden amplificar o reducir ciertos efectos selectivos.
Estos resultados no implican que cualquier red aumente la selección ni que una propiedad topológica tenga el mismo efecto bajo cualquier actualización. Nacimiento seguido de reemplazo local y muerte seguida de competencia local pueden producir diferencias importantes. La estructura y la regla deben analizarse juntas.
La ubicación inicial de la variante también influye. Una copia situada en un nodo con ciertas conexiones puede tener una probabilidad de fijación distinta de otra situada en otro lugar. Promediar sobre ubicaciones requiere declarar cómo se selecciona el nodo inicial.
Si la mutación ocurre en eventos de nacimiento, la distribución de aparición puede depender de tasas reproductivas. Si se introduce una copia uniformemente entre individuos, estamos usando otra condición inicial. La misma red puede producir resultados agregados distintos bajo esas convenciones.
Un análisis útil compara primero el caso bien mezclado y luego introduce una modificación estructural definida. Si el resultado cambia, podemos investigar si se debe al acceso a reemplazo, a la exposición a competencia o a la ponderación de ubicaciones. Una etiqueta como «centralidad» no sustituye esa derivación.
El ejemplo de cuatro individuos sigue siendo una referencia. Una implementación espacial que pretende recuperar la mezcla completa al conectar todas las posiciones debe reproducir las transiciones correspondientes a su convención, incluidos posibles autoenlaces. Esas verificaciones permiten separar un efecto de estructura de un cambio accidental de actualización.
263.9. Verificar fijación y relojes
Una simulación debe registrar composición antes del evento, tipo del progenitor, tipo reemplazado y composición posterior. Si se usa tiempo continuo, debe registrar también el intervalo temporal. Esos datos permiten comprobar tanto la cadena de estados como el reloj.
En el caso principal, desde una copia A, las frecuencias de aumento, disminución y permanencia deben aproximarse a 0,3; 0,15 y 0,55 al repetir eventos independientes desde ese mismo estado. La comparación no debe mezclar estados distintos, porque sus probabilidades cambian.
Para trayectorias completas, la frecuencia de fijación desde una copia debe aproximarse a ocho quinceavos cuando r vale dos y a un cuarto en neutralidad. La variabilidad de estimación depende del número de réplicas y debe acompañar cualquier comparación numérica.
Los tiempos medios pueden contrastarse con el sistema exacto de cuatro individuos. Una discrepancia cercana a un factor constante puede indicar una convención temporal distinta; una discrepancia dependiente del estado puede señalar omisión de eventos nulos o selección incorrecta de individuos.
El reloj constante puede verificarse por separado, comprobando que la media de intervalos sea y que el número esperado de eventos por unidad temporal sea M. Si la tasa depende del estado, la comprobación debe condicionar en él. Mezclar ambos relojes produciría una duración difícil de interpretar.
Las condiciones de parada deben corresponder a una absorción real. En ausencia de mutación, cero y M son terminales. Si añadimos mutación, detener la simulación en esos extremos ya no describe el proceso indefinido; puede servir para estudiar la primera llegada, pero debemos nombrar ese evento.
La comparación con Wright–Fisher requiere convertir unidades antes de interpretar diferencias. Un evento de Moran y una generación completa no son pasos equivalentes, de modo que igualar únicamente el número de iteraciones de ambos programas puede producir una conclusión basada en el calendario del código.
Las fórmulas exactas, los sistemas de primer paso y los registros de eventos son controles complementarios. Una curva suave no certifica el mecanismo. La verificación debe localizar qué regla produce cada probabilidad y cada unidad de tiempo.
263.10. Un destino compartido no implica una dinámica idéntica
El proceso de Moran muestra cómo reemplazos individuales producen deriva y selección en una población de tamaño constante. La razón entre aumentos y disminuciones permite calcular la fijación bajo contribuciones relativas constantes. Los eventos nulos y el reloj determinan duraciones que requieren un análisis separado.
En neutralidad, Moran y Wright–Fisher comparten la probabilidad de fijación igual a la frecuencia inicial, pero difieren en transiciones y escalas temporales. Esa coincidencia parcial ilustra por qué un resultado final aislado no identifica la regla dinámica que lo produjo.
La ventaja selectiva aumenta las probabilidades de fijación, pero no elimina las pérdidas aleatorias. También puede modificar los tiempos de maneras que no se resumen diciendo que todo ocurre más rápido. Los promedios de absorción mezclan destinos y trayectorias cuya composición cambia con la selección.
El paso a tiempo continuo conserva algunas propiedades y modifica otras según la tasa de eventos. La estructura espacial añade información sobre posiciones y exige revisar la suficiencia del conteo. Cada extensión debe derivarse desde reglas explícitas.
Los siguientes capítulos incorporarán conjuntamente mutación y selección. Entonces podremos estudiar distribuciones persistentes de variantes y situaciones donde los extremos dejan de ser destinos permanentes. La fijación seguirá siendo un concepto útil, aunque no siempre el único ni el más adecuado.
La lección metodológica es mantener separadas tres preguntas (qué secuencia de estados puede ocurrir, con qué probabilidades y cuánto tiempo transcurre), porque responder una no resuelve automáticamente las otras. Esa separación permite comparar modelos evolutivos con precisión y reconocer cuándo una diferencia procede del mecanismo o de la escala elegida.
En una aplicación concreta conviene escribir estas tres respuestas antes de ajustar parámetros. Una observación de frecuencias finales informa sobre destinos; una serie temporal añade restricciones sobre transiciones y relojes. La cantidad de información disponible debe corresponder a la precisión de la explicación que se pretende sostener.
Referencias
[1] Moran, P. A. P. (1958). Random processes in genetics. Proceedings of the Cambridge Philosophical Society, 54(1), 60–71. DOI.
[2] Lieberman, E., Hauert, C., y Nowak, M. A. (2005). Evolutionary dynamics on graphs. Nature, 433, 312–316. DOI.