Una colección puede contener muchas piezas y disponer de pocos recambios. Si veinte piezas realizan la misma tarea mientras una sola sostiene otra tarea indispensable, el número total oculta la parte vulnerable. También es posible la situación inversa, en la que componentes muy diferentes pueden sustituirse para una función concreta aunque cada uno haga además otras cosas. Para averiguar qué se conserva cuando algo desaparece es necesario conocer el reparto del trabajo, las condiciones del reemplazo y el tiempo disponible para completarlo.
La dificultad comienza con una pregunta en apariencia sencilla, la de qué significa que dos componentes hagan lo mismo. Dos especies vegetales contribuyen a la producción de biomasa, aunque una crece durante un período húmedo y la otra rinde más en uno seco. Dos enzimas pueden catalizar transformaciones parcialmente coincidentes y diferir en su regulación. Dos personas pueden resolver una tarea técnica y depender de la misma base de datos. La coincidencia de resultados deja abierta la posibilidad de que compartan también el punto de fallo.
Diversidad, redundancia y sustitución funcional describen aspectos distintos de esas situaciones. La diversidad depende de las diferencias que se decida contar, la redundancia funcional expresa el solapamiento entre contribuciones a una función definida y la sustitución es un proceso por el cual, después de una pérdida, otros componentes mantienen o recuperan cierta prestación. Pasar del segundo concepto al tercero exige explicar cómo se activa una capacidad que estaba repartida, infrautilizada o condicionada por la presencia del componente perdido.
Definir qué debe continuar funcionando
Una función puede ser una tasa de producción, una transformación química, la eliminación de una sustancia o el cumplimiento de una tarea. Su definición debe incluir la unidad de medida. Frente a «mantener el ecosistema», demasiado amplio para evaluar un reemplazo, una meta como «mantener la producción anual de biomasa por encima de cierta cantidad» ya hace comparables los resultados. Esa elección delimita la pregunta y determina qué diferencias entre componentes cuentan como relevantes.
Sirva de ejemplo un sistema didáctico de tratamiento de agua con dos operaciones, A y B. Para que el proceso termine a tiempo deben completarse dos unidades de A y una unidad de B durante cada intervalo, entendiendo por unidad una cantidad de trabajo previamente especificada. Todas las duraciones y capacidades del ejemplo son ficticias. Un equipo que realiza A de manera excelente puede ser inútil para B, de modo que llamarlo redundante con otro equipo solo tiene sentido si ambos cubren la misma operación, en las condiciones y dentro del plazo establecidos.
Poseer una capacidad y contribuir efectivamente con ella son cosas distintas. Una especie puede tener un rasgo que interviene en una función y pesar muy poco en ella porque es escasa. Un equipo compatible puede encontrarse ocupado y una ruta bioquímica alternativa puede existir y permanecer inhibida. El inventario identifica candidatos a sustituir, la medición de flujos indica quién sostiene el resultado durante la observación y una perturbación muestra si otros candidatos aumentan su contribución cuando desaparece el proveedor habitual.
La respuesta cambia también al ampliar la función observada. Dos especies podrían parecer intercambiables si solo se mide biomasa y diferir al considerar simultáneamente la retención de nutrientes o la distribución estacional de recursos. La redundancia es, por tanto, relativa a un conjunto de prestaciones. Exigir muchas a la vez suele volver más restrictiva la equivalencia, ya que un componente tiene que cubrir todo el conjunto o debe existir una combinación de reemplazos capaz de repartirlo sin exceder sus recursos.
Elmqvist y colaboradores (2003) llamaron diversidad de respuestas a las diferencias frente al cambio ambiental entre especies que contribuyen a una misma función. La distinción es útil porque un grupo puede tener mucho solapamiento funcional y poca variedad de respuestas. Si sus miembros son sensibles a la misma sequía, la multiplicidad de proveedores protege menos frente a ese evento, mientras que otro grupo con menor número de especies podría distribuir mejor sus contribuciones entre condiciones húmedas y secas. La riqueza no revela esas respuestas, que tienen que observarse.
La escala espacial añade una condición. Dos poblaciones pueden cubrir la misma función en regiones diferentes sin poder sustituirse localmente, pues para que una compense la pérdida de otra deben llegar individuos, recursos o productos al lugar afectado. Si el transporte tarda meses y la función se necesita durante unos días, la capacidad regional no es un reemplazo operativo. Una afirmación de redundancia debería precisar dónde, durante cuánto tiempo y para qué nivel de prestación son intercambiables los componentes.
Copias idénticas y soluciones diferentes
En ingeniería, la imagen familiar de la redundancia es la duplicación, con dos unidades semejantes dispuestas para que una continúe operando si falla la otra. En biología, Edelman y Gally (2001) reservaron el término degeneración para la capacidad de elementos estructuralmente diferentes de producir una misma función o salida. En este uso técnico la palabra carece del sentido de deterioro que tiene en el lenguaje cotidiano y designa una relación entre estructuras y resultados.
Las diferencias entre las estructuras pueden volverse decisivas cuando cambia el contexto. Dos mecanismos que producen una salida equivalente bajo cierta condición podrían divergir al variar la temperatura, la disponibilidad de un recurso o la señal reguladora. También pueden compartir solo una parte de sus funciones. De ahí que la degeneración admita coincidencia en algunas tareas junto con especialización en otras, una combinación que la mera copia de una pieza excluye. Edelman y Gally examinaron esta propiedad en diversos niveles de organización biológica, incluidas las redes genéticas y neuronales.
La terminología varía entre disciplinas, pues buena parte de la ecología habla de redundancia funcional para especies distintas que comparten rasgos o contribuciones, sin exigir identidad estructural. Esa diferencia puede mantenerse sin una definición universal única siempre que se declare qué se está comparando, ya sea la identidad de componentes, la similitud de rasgos, la equivalencia de resultados o la posibilidad de reemplazo. La confusión aparece cuando una discusión empieza hablando de semejanza de rasgos y termina atribuyendo una garantía de continuidad que nadie ha medido.
La diversidad también debe especificarse. La riqueza cuenta tipos, la distribución de abundancias distingue una comunidad equilibrada de otra dominada por un solo tipo y las distancias funcionales describen cuánto difieren los rasgos seleccionados. Ninguna de estas medidas sustituye automáticamente a las demás. Cuatro proveedores con participaciones semejantes y cuatro proveedores de los cuales uno produce casi todo tienen igual riqueza, pero diferente exposición a la pérdida del dominante.
Una riqueza elevada puede concentrarse en un pequeño sector del espacio funcional. Mouillot y colaboradores (2014) estudiaron faunas de peces de arrecifes tropicales y encontraron que la acumulación de especies en entidades funcionales muy ocupadas coexistía con entidades representadas por pocas especies, concentración a la que denominaron sobrerredundancia. El resultado muestra por qué una media elevada de especies por entidad puede esconder funciones potencialmente vulnerables. Como esas entidades se construyeron mediante combinaciones de rasgos, la equivalencia de rasgos dentro de cada una aproxima la función sin medir directamente todos los procesos ecológicos.
Un inventario ficticio de doce especies repartidas entre cuatro grupos funcionales lo ilustra. En la distribución 3, 3, 3, 3 cada grupo tiene tres representantes, en tanto que la distribución 9, 1, 1, 1 tiene la misma media pero deja tres grupos dependientes de una única especie. Si la pregunta es cuántas funciones desaparecerían al perder una especie escogida al azar, la primera distribución no pierde ningún grupo y la segunda lo pierde en tres de los doce casos posibles, una diferencia que el promedio de redundancia no registra.
El inventario tampoco describe si las pérdidas son independientes. Si las nueve especies del grupo numeroso compartieran hábitat o recurso, una perturbación que eliminara ese hábitat podría retirarlas juntas. Para estimar la continuidad funcional interesan, además del número de sustitutos, la distribución de sus vulnerabilidades y de las dependencias que las conectan, información que puede modificar por completo la interpretación de una aparente abundancia de alternativas.
El aplanamiento de una curva al aumentar la riqueza puede deberse a la redundancia o a otros mecanismos. Imaginemos una producción que se aproxima a un límite fijado por la luz disponible. Añadir especies deja de elevar esa producción porque todas encuentran el mismo techo energético, un resultado que puede parecerse a otro en el que las especies añadidas repiten exactamente las contribuciones de las anteriores. Para distinguirlos habría que variar el recurso limitante o medir otras funciones, ya que la forma de la curva describe una relación agregada que varias organizaciones internas pueden producir.
Cuánto estabiliza la diversidad de respuestas
Un modelo sencillo aísla el efecto de la covariación. Sean el rendimiento variable del proveedor y su participación en una capacidad total fija, con participaciones no negativas que suman uno. El rendimiento agregado es . Al mantener fija esa capacidad puede estudiarse cómo cambia la variabilidad cuando se reparte, sin confundir la diversificación con una simple multiplicación de recursos.
La varianza del resultado es
El primer término recoge las fluctuaciones de cada proveedor; el segundo, sus movimientos conjuntos. Si todos tienen la misma varianza , las participaciones son iguales y la correlación entre cualquier par es , la expresión se reduce a
donde es el número de proveedores. Se considerarán solo correlaciones entre cero y uno, con lo que se evita introducir combinaciones incompatibles con la matriz de covarianzas al cambiar el número de componentes. La fórmula supone rendimientos que se agregan linealmente y una estructura de correlación homogénea, por lo que los procesos con umbrales, las interacciones obligatorias o los proveedores cuyos pesos cambian durante la observación exigen modificarla.
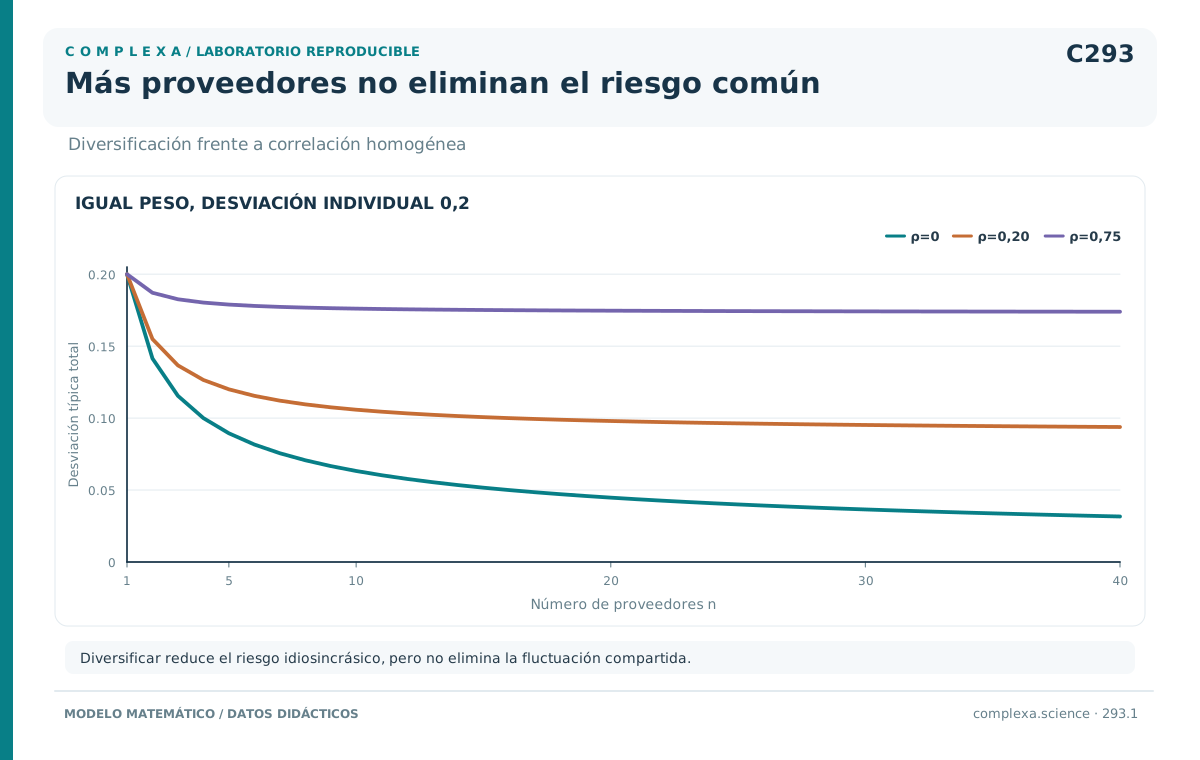
En un ejemplo numérico, cada rendimiento tiene media uno y desviación típica 0,2. Con un único proveedor el resultado conserva esa desviación. Si la capacidad se reparte entre cuatro proveedores sin correlación, la desviación baja a 0,1 y con dieciséis llega a 0,05. La media sigue siendo uno en todos esos casos, de manera que se ha reducido la variación alrededor de la media sin aumentar el rendimiento esperado.
Cuando la correlación común es 0,75, cuatro proveedores dan una desviación de aproximadamente 0,1803 y dieciséis, una de 0,175, porque añadir proveedores apenas reduce el componente de fluctuación compartido. Si todos responden exactamente igual (), la desviación permanece en 0,2 cualquiera que sea , ya que el riesgo que procede de una respuesta común no disminuye con el número de alternativas.
Una correlación nula, por otra parte, es distinta de la independencia. Dos variables pueden carecer de correlación lineal y mantener otras dependencias, relevantes para los sucesos extremos. La ecuación calcula una varianza. Para obtener la probabilidad exacta de quedar por debajo de una prestación mínima hace falta conocer más sobre la distribución conjunta de los rendimientos, una distinción que pesa sobre todo en sistemas en los que una interrupción breve es mucho más costosa que numerosas oscilaciones pequeñas.
La desigualdad de participaciones también reduce la diversificación efectiva. Si los rendimientos carecen de correlación y mantienen la misma varianza, queda . Con cuatro participaciones de 0,7, 0,1, 0,1 y 0,1, la suma de cuadrados es 0,52 y la desviación agregada es de aproximadamente 0,1442, frente a 0,1 con cuatro participaciones iguales. El inverso de esa suma, aproximadamente 1,92, indica cuántos proveedores igualmente ponderados producirían la misma varianza bajo estos supuestos y mide así una concentración de la contribución que el recuento de cuatro nombres oculta.
Las participaciones pueden cambiar después de una perturbación. Un proveedor pequeño que dispone de recursos para expandirse tiene una contribución potencial mayor que la indicada por su peso previo. Si carece de esa capacidad, su presencia apenas modifica la dependencia del dominante. Aplicada con pesos fijos, la fórmula describe la variación del sistema observado. Para estudiar la compensación dinámica se necesita una regla adicional que determine cómo cambian esos pesos y qué limita su aumento.
Con la hipótesis del seguro, Yachi y Loreau (1999) desarrollaron la relación entre diversidad y funcionamiento en ambientes fluctuantes. Su análisis separó la amortiguación de la variabilidad de un posible aumento del rendimiento medio. Este segundo efecto requiere una manera de combinar las contribuciones que favorezca a quienes rinden mejor bajo las condiciones presentes. En uno de sus casos límite la producción del sistema corresponde a la del mejor proveedor en cada momento y en otro corresponde al promedio, dos mecanismos que producen relaciones distintas entre diversidad y rendimiento.
La diferencia puede ilustrarse con dos condiciones ambientales igualmente frecuentes. Un proveedor produce 1,6 en la primera y 0,4 en la segunda; el otro, los valores inversos. Si cada uno ocupa la mitad de la capacidad y sus aportes se suman, el rendimiento es uno en ambos ambientes. Si fuera posible asignar toda la capacidad al mejor proveedor sin retrasos ni costes, el rendimiento sería 1,6 en ambos. La segunda regla incluye una capacidad de selección y reasignación mucho más exigente, de la que depende la mejora y que quedaría oculta si el resultado se atribuyera a la mera presencia de dos proveedores.
El reemplazo tiene restricciones de capacidad
Volvamos al sistema ficticio de tratamiento de agua, que ahora tiene tres equipos, P, Q y R, cada uno con una unidad de tiempo por intervalo. P puede realizar A, R puede realizar B y Q puede realizar cualquiera de las dos operaciones. Todos procesan una unidad de trabajo por unidad de tiempo cuando ejecutan una operación compatible. La demanda es de dos unidades de A y una de B. No hay almacenamiento previo y todas las operaciones deben completarse dentro del intervalo.
El sistema satisface la demanda asignando P y Q a A y dejando R en B. Como el catálogo de compatibilidades registra dos proveedores para cada operación, podría parecer que ambas funciones disponen de redundancia suficiente para soportar cualquier pérdida individual. Los tres equipos, sin embargo, trabajan a su capacidad máxima. Si desaparece P, solo Q puede hacer A y falta una unidad de esa operación. Si desaparece R, Q debe trasladarse a B y deja igualmente una unidad de A sin cubrir. Si desaparece Q, P y R completan dos unidades de las tres necesarias.
La compatibilidad se expresa mediante una matriz , igual a uno si el equipo puede realizar la operación e igual a cero en caso contrario. Si denota el tiempo asignado a esa combinación, un reemplazo viable debe cumplir simultáneamente cuando , para cada equipo y para cada operación, donde es la capacidad temporal disponible y la demanda. Las últimas sumas equivalen a unidades producidas porque hemos fijado todas las velocidades compatibles en uno.
En el ejemplo inicial, , y . Tras cualquier pérdida queda una capacidad total de dos para una demanda total de tres, una desigualdad que ninguna redistribución de tareas puede resolver. El fallo se debe a la falta de capacidad, cualquiera que sea el sustituto elegido, porque la posibilidad de cumplir una función y la disponibilidad de recursos para asumirla son datos diferentes.
Añadamos un cuarto equipo, S, que solo realiza A y dispone también de una unidad de tiempo. Con él todas las pérdidas individuales son tolerables bajo las reglas declaradas. Sin P, la operación A queda a cargo de Q y S mientras R se mantiene en B. Sin Q, la realizan P y S. Sin R, P y S cubren A y Q se ocupa de B. Sin S, permanece la asignación original. La nueva capacidad en A libera al equipo flexible Q para cubrir B cuando hace falta, de modo que S protege una operación que nunca ejecuta directamente.
Este efecto depende de una cadena de sustituciones que pasaría inadvertida para una lectura de la matriz limitada a buscar una copia directa de R. En sistemas con muchos componentes, donde la protección puede residir en combinaciones de reasignaciones, el problema consiste en encontrar una asignación factible después de cada pérdida relevante. Contar las entradas no nulas de una columna informa de las compatibilidades locales, pero deja sin resolver la competencia entre operaciones por los mismos proveedores.
Mantener S tiene un coste aunque permanezca inactivo en la asignación original. Si cada equipo requiere el mismo gasto de mantenimiento, la instalación pasa de sostener tres unidades de capacidad a sostener cuatro para completar tres unidades de trabajo, con lo que su utilización ordinaria baja del 100 % al 75 %. Calificar de desperdicio esa menor utilización, gracias a la cual puede absorberse una pérdida, exigiría ignorar los intervalos con fallos. Para comparar diseños económicamente harían falta, además, la frecuencia de esos intervalos y el coste de dejar trabajo sin completar.
También puede haber una restricción de acceso. Si Q posee capacidad para B pero carece de una conexión necesaria durante la emergencia, la asignación que parecía factible deja de serlo, por lo que esa conexión debe formar parte del modelo junto con su tiempo de activación. En organizaciones aparece la misma estructura al comparar competencias, disponibilidad y acceso a herramientas. En un estudio de servicios de salud, por ejemplo, habría que registrar además qué tareas están efectivamente autorizadas y qué continuidad exige cada prestación, información que el modelo abstracto necesita recibir de fuera para pronunciarse sobre la equivalencia entre profesionales.
La reserva debe sobrevivir hasta que se necesita
Los sustitutos biológicos no se guardan necesariamente en un almacén. Consumen recursos, compiten, se reproducen y pueden desaparecer durante períodos prolongados en los que su contribución es pequeña. La pregunta pasa a ser entonces qué mantiene presentes a componentes que parecen redundantes bajo las condiciones actuales. Una explicación de la sustitución necesita considerar la dinámica previa a la perturbación, además de lo que ocurriría si el sustituto estuviera disponible.
Loreau (2004) analizó esta dificultad mediante modelos de competencia de Lotka–Volterra. En las condiciones de esos modelos la redundancia estricta y la coexistencia estable no se combinan libremente, puesto que las diferencias que favorecen la coexistencia afectan también a las contribuciones funcionales. El argumento, que depende del modelo y del modo en que se vincula la función con la biomasa, es compatible con que dos especies se solapen funcionalmente, pero obliga a explicar qué diferencias, variación ambiental u otros mecanismos mantienen coexistiendo a los proveedores.
Una especie con poca biomasa en un año puede adquirir una contribución mayor en otro. Allan y colaboradores (2011) estudiaron siete años de producción de biomasa en el experimento de biodiversidad de Jena e identificaron, para cada año y parcela, un conjunto mínimo de especies que superaba el 50 % de la biomasa. A lo largo de los siete años se necesitaban, en promedio, más del doble de especies que en un único año para alcanzar ese umbral en todos los años considerados.
El resultado descansa en una operación estadística concreta, la comparación entre el conjunto de especies que alcanzaba el umbral en una fecha y la unión de los conjuntos necesarios en fechas diferentes, en la que una especie ausente del primer conjunto podía aparecer después. Además, la relación entre recambio de dominantes y mantenimiento de una biomasa alta dependía de la diversidad de grupos funcionales, así que el beneficio quedaba restringido a ciertos recambios. El alcance del estudio se limitaba a la producción de biomasa en esas comunidades y bajo ese umbral, sin extenderse a una identificación universal de especies prescindibles.
Una observación breve puede clasificar como redundante una capacidad que responde a una situación infrecuente. A la inversa, atribuirle un valor demostrado exige estimar la frecuencia y la magnitud de las condiciones relevantes, o formular escenarios explícitos cuando esa información falta, porque para cualquier capacidad puede imaginarse alguna circunstancia futura en la que sería útil. Las reservas se evalúan frente a perturbaciones definidas, puesto que una colección que protege frente a variaciones de temperatura puede quedar indefensa ante una sustancia que afecta a todos sus miembros.
El tiempo posterior a la pérdida requiere su propia medición. Si una población sustituta aumenta lentamente hasta compensar un flujo perdido, la función permanece por debajo de lo requerido durante todo ese intervalo. Cuando el componente que desapareció producía una unidad diaria y el sustituto tarda cuatro días en alcanzar esa tasa, la capacidad final nada dice del déficit acumulado, que puede cuantificarse integrando la diferencia entre la demanda y la producción efectivamente disponible durante la recuperación.
En un caso didáctico, la demanda adicional es una unidad diaria y el sustituto aumenta linealmente desde cero hasta una unidad en cuatro días. El déficit forma un triángulo de base cuatro y altura uno, cuya área equivale a dos unidades de trabajo sin completar. Si el proceso admite una reserva almacenada de dos unidades utilizables, esa reserva podría cubrirlo. Sin almacenamiento la prestación cae transitoriamente, aunque la trayectoria final sea la misma en ambos casos.
Resistencia, recuperación y fallos compartidos
La estabilidad temporal, la resistencia a una perturbación y la recuperación posterior son resultados distintos. Una serie puede fluctuar poco en condiciones ordinarias y sufrir una gran caída ante un evento inusual. Otra puede caer mucho y recuperarse deprisa. Como mecanismos diferentes pueden alterar cada uno de estos resultados, al estudiar el efecto de la diversidad es preciso identificar cuál se está midiendo.
Isbell y colaboradores (2015) analizaron datos de 46 experimentos de diversidad vegetal en pastizales y encontraron una mayor resistencia de la productividad ante eventos climáticos en las comunidades más diversas. En cambio, no detectaron una influencia de la biodiversidad sobre su medida de recuperación después de uno o dos años sin perturbación. La productividad había recuperado a menudo su nivel previo, o lo había sobrepasado, tanto a baja como a alta diversidad, de modo que, entre resistencia y recuperación, el efecto documentado de la diversidad corresponde solo a la primera.
Un modelo probabilístico de copias ayuda a examinar otra condición. Sean tres unidades compatibles, cualquiera de ellas con capacidad suficiente para cubrir toda la demanda, que fallan durante el intervalo de manera independiente con probabilidad . La probabilidad de que fallen todas es , por lo que la función permanece disponible con probabilidad 0,999. Esa cifra depende de dos condiciones incorporadas al cálculo, la independencia de los fallos y la suficiencia de una sola unidad.
Introduzcamos ahora un evento común que ocurre con probabilidad y elimina las tres unidades. Cuando ese evento no ocurre se mantienen los fallos individuales independientes con probabilidad 0,1, de manera que la probabilidad total de interrupción es
El término común domina el resultado. Las copias adicionales reducen los fallos independientes, pero dejan un límite inferior de interrupción igual a . Cambiar de ubicación, de fuente energética o de mecanismo podría disminuir ese riesgo compartido si esas diferencias afectan realmente al evento considerado, una condición que la diversidad nominal de marcas o especies deja sin comprobar.
Modifiquemos ahora la demanda sin introducir el evento común. Si cada una de las tres unidades procesa solo una unidad de trabajo y se necesitan dos, el sistema funciona cuando sobreviven dos o tres unidades. Con los mismos fallos independientes de probabilidad 0,1, la probabilidad de funcionamiento es , inferior a la del caso en que bastaba una unidad, con lo cual una cifra de fiabilidad calculada sin especificar la capacidad requerida puede corresponder a otro sistema.
Observar la sustitución y completar la asignación
Biggs y colaboradores (2020) revisaron la relación entre redundancia funcional y estabilidad o resiliencia ecológica. Su metaanálisis reunió 32 evaluaciones procedentes de 15 artículos y encontró una asociación media positiva, cuyo tamaño variaba con la manera de medir la redundancia y era mayor cuando se utilizaba la riqueza dentro de grupos funcionales. Los autores señalaron la necesidad de separar los efectos de riqueza y redundancia y de ampliar la evidencia experimental sobre funciones concretas.
La conservación de una función tras una pérdida es compatible con varios mecanismos. Los supervivientes pueden aumentar su actividad, crecer en abundancia o recibir menos competencia. También puede aparecer un proveedor por inmigración. Para atribuir el resultado a sustitución hay que seguir las contribuciones individuales y compararlas con una situación de referencia. Si el proveedor perdido apenas contribuía antes, la función pudo conservarse sencillamente porque la pérdida retiró poco flujo desde el comienzo, sin que mediara una gran capacidad compensatoria.
Un diseño informativo mide tanto la pérdida inicial como la compensación posterior. Registra la producción antes de la retirada, estima la contribución que se elimina y sigue la producción de los posibles sustitutos. Cuando es posible, incluye controles sometidos al mismo procedimiento sin retirar al proveedor. Las mediciones deben cubrir la ventana durante la cual se necesita la función, dado que una observación limitada al resultado final puede ocultar una interrupción y otra limitada al primer día puede pasar por alto una recuperación real.
La retirada puede, además, liberar el recurso que usaba el componente perdido. Si los supervivientes crecen gracias a esa liberación, se ha identificado un mecanismo concreto de compensación, siempre que pueda descartarse un cambio ambiental que habría elevado su actividad incluso sin retirada. Ambas posibilidades se separan midiendo el recurso y comparando con parcelas o unidades control. Sin esas mediciones, una correlación negativa entre dos contribuciones es un indicio insuficiente de que una población esté reemplazando causalmente a la otra.
Los rasgos sirven para seleccionar hipótesis y candidatos, mientras que la prueba funcional requiere una medición acorde con la pregunta. Con una matriz de compatibilidades, una tarea puede ensayarse bajo diferentes cargas. En el estudio de poblaciones interesa relacionar abundancias y actividad por individuo con el flujo agregado. Como un reemplazo podría aumentar la producción total y cambiar al mismo tiempo otros productos o requerimientos, medir esos cambios indica si se conserva la prestación definida o si se obtiene un resultado parecido a costa de otra función.
En el sistema de tratamiento, el cuarto equipo S basta para cubrir cualquier pérdida individual, pero queda por precisar en qué momento ocurre la pérdida. Supongamos que R deja de operar justo antes de comenzar un intervalo y que Q requiere medio intervalo para cambiar de A a B. P y S completan las dos unidades de A, pero durante el medio intervalo restante Q solo procesa media unidad de B. La asignación de largo plazo es factible y, aun así, falta media unidad en el primer intervalo. Habrá que disponer de esa cantidad almacenada, habilitar antes la conexión o aceptar el déficit, condiciones distintas que pueden comprobarse.
Si Q está preparado para cambiar de tarea sin demora dentro de la resolución temporal elegida, P y S procesan A durante todo el intervalo y Q procesa B. Al finalizar, las dos unidades de A y la unidad de B están terminadas. Aunque R sigue fuera de servicio, en el intervalo siguiente los tres equipos disponibles pueden repetir la misma asignación.
Referencias
Allan, E., Weisser, W. W., Weigelt, A., Roscher, C., Fischer, M., y Hillebrand, H. (2011). More diverse plant communities have higher functioning over time due to turnover in complementary dominant species. Proceedings of the National Academy of Sciences, 108(41), 17034–17039. https://doi.org/10.1073/pnas.1104015108
Biggs, C., Yeager, L. A., Bolser, D. G., Bonsell, C., Dichiera, A. M., Hou, Z., Keyser, S. R., Khursigara, A. J., Lu, K., Muth, A. F., Negrete, B., y Erisman, B. (2020). Does functional redundancy affect ecological stability and resilience? A review and meta-analysis. Ecosphere, 11(7). https://doi.org/10.1002/ecs2.3184
Edelman, G. M., y Gally, J. A. (2001). Degeneracy and complexity in biological systems. Proceedings of the National Academy of Sciences, 98(24), 13763–13768. https://doi.org/10.1073/pnas.231499798
Elmqvist, T., Folke, C., Nyström, M., Peterson, G., Bengtsson, J., Walker, B., y Norberg, J. (2003). Response diversity, ecosystem change, and resilience. Frontiers in Ecology and the Environment, 1(9), 488–494. https://doi.org/10.1890/1540-9295(2003)001[0488:RDECAR]2.0.CO;2
Isbell, F., et al. (2015). Biodiversity increases the resistance of ecosystem productivity to climate extremes. Nature, 526(7574), 574–577. https://doi.org/10.1038/nature15374
Loreau, M. (2004). Does functional redundancy exist? Oikos, 104(3), 606–611. https://doi.org/10.1111/j.0030-1299.2004.12685.x
Mouillot, D., Villéger, S., Parravicini, V., Kulbicki, M., Arias-González, J. E., Bender, M. G., Chabanet, P., Floeter, S. R., Friedlander, A. M., Vigliola, L., y Bellwood, D. R. (2014). Functional over-redundancy and high functional vulnerability in global fish faunas on tropical reefs. Proceedings of the National Academy of Sciences, 111(38), 13757–13762. https://doi.org/10.1073/pnas.1317625111
Yachi, S., y Loreau, M. (1999). Biodiversity and ecosystem productivity in a fluctuating environment: The insurance hypothesis. Proceedings of the National Academy of Sciences, 96(4), 1463–1468. https://doi.org/10.1073/pnas.96.4.1463