Un mapa de contactos puede servir para calcular por dónde circula una influencia, pero durante esa misma circulación los contactos pueden cambiar. Alguien deja de consultar a una persona con la que discrepa, una interacción frecuente refuerza una conexión o un individuo expuesto a un riesgo busca nuevos interlocutores. Cuando la siguiente ronda de actividad transcurre sobre una red que la anterior ya transformó en parte, un mapa mantenido fijo deja fuera una porción del mecanismo que se quiere explicar.
En una red adaptativa la estructura de las interacciones depende del estado o la actividad de sus componentes, cuya evolución queda a su vez modificada por esa estructura. Gross y Blasius (2008) reunieron bajo este enfoque modelos que se habían desarrollado en campos diferentes y que comparten el acoplamiento entre dos procesos, el cambio de los estados y el cambio de las conexiones. La palabra adaptativa designa solo ese acoplamiento, con independencia de que el resultado mejore la supervivencia, la coordinación o cualquier otra propiedad elegida por el observador.
Una red puede variar en el tiempo sin ser adaptativa respecto al proceso estudiado, como sucede cuando un horario de contactos fijado de antemano introduce la variación temporal. Si el horario se revisa según lo que ocurre durante los contactos, aparece una dependencia adicional. Identificarla exige definir qué actividad se observa, qué propiedad de la red responde y mediante qué regla se produce la modificación.
Dos variables que se modifican mutuamente
Representemos el estado de cada nodo por y las conexiones mediante una matriz . En una red simple no dirigida, si existe una conexión entre los nodos y ; en caso contrario, ambos valen cero. La diagonal es nula porque se excluyen las conexiones de un nodo consigo mismo. El estado completo del sistema incluye tanto los valores de los nodos como la matriz, ya que con uno solo de esos elementos la descripción dinámica queda incompleta.
En tiempo discreto podemos escribir
La función especifica cómo los contactos afectan a los estados y cómo los estados intervienen en la actualización de las conexiones. Tal como están escritas, ambas expresiones indican una actualización simultánea a partir del sistema anterior. Otra convención podría actualizar primero los estados y utilizar los nuevos valores para modificar la red, opción igualmente posible que, sin embargo, describe un proceso diferente cuando los cambios ocurren en una misma escala temporal.
La modificación estructural puede consistir en crear enlaces, eliminarlos o trasladar uno de sus extremos, o bien en cambiar su intensidad sin alterar la presencia del enlace. Qué cantidades se conservan depende de la regla. Trasladar un extremo conserva el número total de enlaces y cambia los grados de algunos nodos, mientras que crear o borrar enlaces puede alterar la capacidad total de interacción. Mantener fijo el grado de cada nodo requiere restricciones adicionales, porque la conservación del grado medio deja libres los grados individuales.
En una red no dirigida con nodos y enlaces el grado medio es . Si ambos tamaños se conservan, ese promedio permanece constante aunque algunos nodos acumulen contactos y otros los pierdan. Una serie temporal de grados medios puede así parecer completamente estable y ocultar una reorganización considerable, que se detecta observando también quién mantiene los enlaces, qué estados conectan y cómo se distribuyen entre componentes.
El acoplamiento introduce memoria estructural. Dos sistemas que llegaron a los mismos estados actuales mediante contactos distintos pueden evolucionar de forma diferente. Una población repartida por igual entre dos opiniones puede formar una red muy mezclada o dos grupos separados, con idéntico número de personas en cada opinión y oportunidades de influencia posteriores distintas, que solo pueden preverse si se conserva información sobre los enlaces.
Una regla completa para opiniones y contactos
Construyamos un ejemplo didáctico con seis nodos numerados del 1 al 6 y dos estados posibles, y , que representan opiniones binarias sin contenido específico. La red inicial es el ciclo formado por los enlaces 1–2, 2–3, 3–4, 4–5, 5–6 y 6–1, con seis enlaces y todos los nodos de grado dos. Los nodos 1, 2 y 3 tienen estado y los otros tres, estado .
Cada intento de actualización comienza escogiendo con probabilidad uniforme uno de los enlaces existentes y, también uniformemente, uno de sus extremos como nodo focal . El otro extremo es . Si ambos estados coinciden, el intento termina sin cambio. Si difieren, el nodo focal modifica su contacto con probabilidad o copia el estado de su vecino con probabilidad , donde pertenece al intervalo de cero a uno y permanece fijo durante cada ejecución.
Modificar el contacto significa retirar el enlace entre y y conectar con un nodo de su mismo estado. El candidato se elige uniformemente entre los nodos de ese estado que son distintos de y que todavía no están conectados con él, condición que excluye los autoenlaces y los enlaces duplicados. Si ese conjunto está vacío el intento termina sin cambios, ya que eliminar el enlace anterior y crear el nuevo forman una sola operación y la regla nunca deja al sistema con un enlace menos por una búsqueda fallida.
En la otra rama, copiar significa establecer manteniendo todos los enlaces. No hay cambios espontáneos de opinión ni incorporaciones de nuevos nodos. En cada intento se actualiza a lo sumo un nodo o un enlace. Como la selección inicial se hace entre enlaces, los nodos aislados permanecen en su estado hasta que alguna reconexión los alcance, convención que termina de especificar casos que de otro modo quedarían ambiguos al implementar el modelo.
La regla está inspirada en modelos de coevolución entre opiniones y contactos, como los de Holme y Newman (2006) y Vázquez, Eguíluz y San Miguel (2008), aunque sigue un procedimiento de muestreo propio. Nuestro ejemplo escoge enlaces de manera uniforme, mientras que el de Vázquez y colaboradores escoge primero un nodo y después uno de sus vecinos. Cuando los grados difieren, esas dos maneras de seleccionar interacciones asignan probabilidades distintas, por lo que los valores críticos publicados para una variante no pueden trasladarse directamente a la otra.
Llamaremos activo a un enlace cuyos extremos tienen opiniones diferentes. Sean la proporción de enlaces activos y la diferencia normalizada entre los números de nodos con cada opinión, dos medidas que separan la distribución de opiniones de la distribución de los contactos entre ellas. Inicialmente hay dos enlaces activos, 3–4 y 6–1, de modo que . Como la población está equilibrada, .
Dos desenlaces con la misma ausencia de desacuerdo local
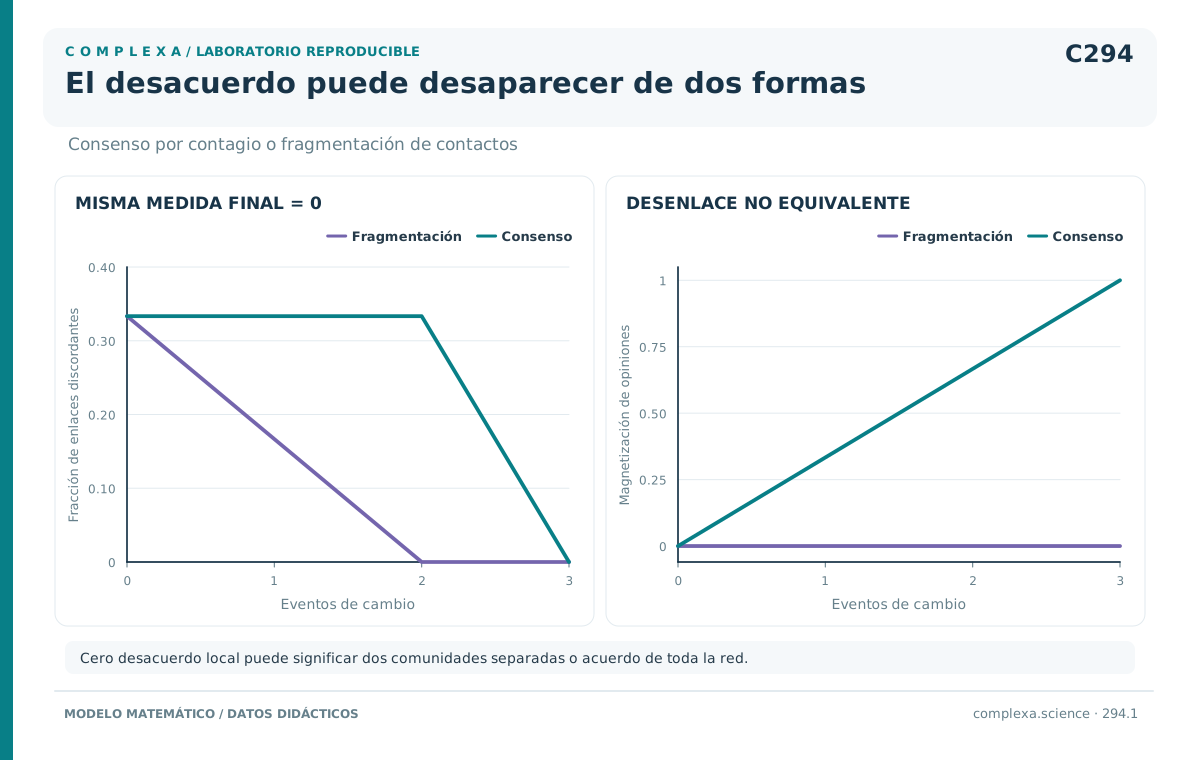
Sigamos una secuencia admisible en la rama de reconexión. Se escoge el enlace 3–4 con 3 como nodo focal, que puede abandonar a 4 y conectarse con 1, nodo que comparte su estado y todavía no era su vecino. Los nodos 1, 2 y 3 quedan formando un triángulo. Solo el enlace 6–1 sigue uniendo opiniones diferentes y baja de a . Ninguna persona ha cambiado de opinión y permanece en cero.
En el segundo cambio se escoge 6–1 con 6 como nodo focal y ese enlace se reemplaza por 6–4, con lo que los nodos 4, 5 y 6 forman otro triángulo. Ahora y sigue siendo . La red se ha dividido en dos componentes de tres nodos, cada uno internamente homogéneo. El desacuerdo entre personas de componentes distintos sigue existiendo, pero ya no atraviesa ningún enlace. Bajo las reglas declaradas cualquier enlace que se seleccione une estados iguales y no puede producirse otro cambio.
Desde el mismo ciclo inicial puede obtenerse otro desenlace. Si el nodo 4 copia al 3, pasa a . Después el 5 puede copiar al 4 y el 6 al 5, en una secuencia de tres cambios de estado, todos admisibles, que termina con los seis nodos en . La red conserva su ciclo original, con y . Esta trayectoria termina en consenso y la anterior en una separación de opiniones mediante fragmentación.
Las dos secuencias ilustran trayectorias posibles del mecanismo. Para ambas tienen probabilidad positiva, porque la tienen cada selección requerida y cada rama utilizada. La frecuencia con que aparece cada desenlace, en cambio, solo puede estimarse repitiendo ejecuciones y registrando su distribución.
Nuestra selección simétrica de extremos tiene otra consecuencia calculable. En un enlace activo, la copia puede aumentar en o reducirlo en la misma cantidad con probabilidades iguales. Como la reconexión deja intacto, el cambio esperado de , condicionado al estado completo de la red, es cero. Se conserva, por tanto, la media entre realizaciones del proceso, aunque cada nodo pueda cambiar de opinión y cada trayectoria apartarse del equilibrio inicial.
En el caso , con una red finita conectada y las reglas simétricas descritas, esa propiedad basta para calcular la probabilidad de consenso positivo. Si es dicha probabilidad, el valor medio final de es . Al igualarlo con el valor inicial se obtiene , que equivale a la proporción inicial de nodos positivos y vale un medio en nuestro ciclo equilibrado. Con reconexión pueden existir desenlaces fragmentados con valores intermedios de . Estos invalidan el cálculo anterior, que identificaba la media final usando únicamente los dos consensos posibles.
El ciclo inicial y los dos triángulos finales tienen la misma secuencia de grados, seis nodos de grado dos, además de conservar , y grado medio dos. La mayor componente, en cambio, pasa de contener toda la red a contener la mitad. Si el registro solo guardara grados o número de contactos, la fragmentación pasaría inadvertida; si solo guardara , la confundiría con el consenso.
Durante la trayectoria sí cambian los grados individuales. Tras la primera reconexión el nodo 1 tiene tres vecinos, el 4 solo uno y los demás conservan dos. La segunda operación devuelve a ambos un grado de dos. Quien comparara únicamente los instantes inicial y final podría concluir que ninguno perdió contactos, aunque durante el proceso la distribución fue desigual. Esa diferencia entre la trayectoria y la fotografía final tiene consecuencias cuando la actividad depende de la cantidad de contactos disponible en cada momento, porque una exposición transitoria puede producir un cambio de estado antes de que los grados recuperen sus valores anteriores.
La interpretación depende igualmente de lo que signifique el enlace. Si es un intercambio de argumentos, la fragmentación elimina oportunidades de discusión entre grupos; si es una cooperación necesaria para una tarea, puede impedir coordinaciones. Una disminución de indica únicamente que hay menos contactos entre estados distintos. Valorarla como beneficio o como pérdida exige relacionar esos contactos con una función concreta del sistema.
Los límites de un parámetro de adaptación
Cuando la red queda fija y solo operan copias de opinión. En nuestro ciclo, conectado y finito, el proceso alcanza finalmente el consenso con probabilidad uno, tras un número variable de intentos y con un resultado que puede favorecer a cualquiera de las dos opiniones. La conectividad inicial forma parte de esta afirmación, dado que en una red inicial desconectada cada componente podría alcanzar un consenso distinto.
Con las opiniones permanecen fijas. Cada reconexión exitosa retira un enlace activo y añade uno entre estados iguales, de modo que el número de enlaces activos disminuye exactamente en uno. Pueden faltar, sin embargo, destinos compatibles. En una red de cuatro nodos conectados todos con todos, dos de cada opinión, cada nodo ya está unido al único compañero de su mismo estado y carece de destinos nuevos admisibles. La red queda bloqueada con cuatro enlaces activos que nuestra regla no puede modificar.
Casos como este obligan a especificar qué ocurre cuando fracasa la búsqueda de un sustituto. La ausencia de enlaces activos es suficiente para detener el modelo, pero en el extremo también pueden existir estados bloqueados con enlaces activos. Admitir enlaces múltiples, borrar el contacto sin sustituirlo o buscar un nodo de cualquier opinión resolvería el bloqueo de otras maneras, a costa de cambiar el proceso, sus propiedades conservadas y la colección de estados finales.
Para valores intermedios compiten la modificación de opiniones y la modificación de contactos. Con nuestra regla, una reconexión exitosa reduce siempre en uno el número de enlaces activos, mientras que una copia puede disminuirlo o aumentarlo. Si un nodo con varios vecinos de su mismo estado adopta la opinión de un vecino minoritario, transforma varios contactos antes concordantes en discordantes. El efecto conjunto depende así del vecindario en que ocurre cada actualización y escapa a un simple recuento de cuántas hubo de cada tipo.
Supongamos un nodo de grado cuatro con tres vecinos de su estado y uno del estado contrario. Al copiar a este último, el número de enlaces activos incidentes pasa de uno a tres, es decir, aumenta en dos. Si tuviera tres vecinos contrarios y uno coincidente, la misma operación de copiar a un vecino contrario reduciría los enlaces activos de tres a uno. La regla individual es idéntica en ambos casos y lo que cambia es la composición local. Una descripción agregada necesita representar esas correlaciones para estimar correctamente la evolución de .
Vázquez y colaboradores (2008) obtuvieron en su modelo una transición entre regímenes de actividad y de fragmentación. Una aproximación homogénea predecía un valor crítico , donde es el grado medio y la probabilidad de reconexión de aquel modelo. Con la predicción es , pero sus simulaciones situaron la transición cerca de 0,38. La diferencia refleja correlaciones generadas por la propia reconexión que la aproximación representa de forma inadecuada, por lo cual la fórmula vale como estimación aproximada del umbral.
Al hablar de una fase activa también debe precisarse el tamaño del sistema. Una aproximación de tamaño infinito puede sostener una densidad estacionaria positiva de enlaces activos, pero en una realización finita las fluctuaciones pueden llevar al sistema a un estado absorbente después de una actividad prolongada. La duración de ese transitorio y su dependencia del tamaño son observables diferentes de la existencia de un equilibrio activo en las ecuaciones aproximadas.
La absorción depende de haber excluido los cambios espontáneos. Si una modificación del modelo admite que un nodo cambie de opinión sin copiar a un vecino, un triángulo homogéneo puede volver a generar enlaces activos y su inmovilidad anterior deja de ser definitiva. El nuevo proceso necesitaría una tasa o probabilidad explícita para esos cambios y obligaría a estudiar tiempos de permanencia y frecuencias de reactivación, puesto que las conclusiones de absorción obtenidas para una regla que prohibía esa transición ya no se le aplican.
La estructura cambia las oportunidades de transmisión
Gross, Dommar D’Lima y Blasius (2006) estudiaron una red adaptativa con estados susceptible e infectado y una dinámica de tipo SIS, en la que los individuos recuperados vuelven a ser susceptibles. La infección se transmite por los enlaces entre ambos estados, los infectados pueden recuperarse y los susceptibles pueden abandonar un enlace con un infectado para reconectarse con otro susceptible. Los números totales de nodos y de enlaces permanecen fijos, a diferencia de las cantidades de cada tipo de nodo y de enlace.
La reconexión modifica las oportunidades de infección sin necesitar una reducción del número total de contactos. Cada cambio de un enlace susceptible–infectado por otro susceptible–susceptible retira una vía inmediata de transmisión y, al mismo tiempo, redistribuye contactos hacia los susceptibles, de manera que si uno de ellos se infecta después lo hace dentro de una estructura que ya fue reorganizada. El riesgo posterior depende de esa historia, que la proporción actual de infectados no recoge.
Una comparación estática aísla la diferencia. Imaginemos ocho nodos, dos infectados y seis susceptibles, unidos por ocho enlaces. En una configuración los infectados se conectan entre sí y tienen un solo enlace hacia el conjunto susceptible. En la otra, cada infectado tiene tres contactos con susceptibles y ninguno con el otro infectado, con los enlaces restantes entre susceptibles. Ambas configuraciones son posibles como redes simples y tienen la misma prevalencia de 2/8 y el mismo grado medio dos, pero presentan uno y seis enlaces susceptibles–infectados, respectivamente.
Si cada enlace susceptible–infectado transmite con una tasa y los sucesos se modelan en tiempo continuo, la tasa total instantánea de nuevos contagios es multiplicada por el número de esos enlaces. Para una tasa didáctica por unidad de tiempo y enlace obtenemos 0,2 y 1,2. Son tasas instantáneas condicionadas a cada configuración, distintas del número de casos que se observaría a lo largo de un intervalo entero. Tras un contagio o una reconexión cambian los enlaces disponibles y las tasas deben recalcularse.
La comparación tampoco trata como eventos diferentes dos infecciones del mismo susceptible. Los relojes de transmisión de sus enlaces son riesgos que compiten por un único cambio de estado. En cuanto se infecta, todos sus enlaces dejan de ser oportunidades de infectarlo. Sumar tasas es válido para la intensidad del siguiente suceso mientras el estado permanece fijo. Sumar probabilidades de infección de un intervalo largo ignorando su solapamiento daría otro cálculo.
Denotemos por el número de infectados y por el número de enlaces entre estados distintos. Si cada infectado se recupera con tasa , el cambio medio instantáneo del número de infectados, condicionado a la configuración actual, es , ya que cada infección añade uno, cada recuperación resta uno y una reconexión no cambia directamente . Con las dos configuraciones anteriores tienen una tasa total de recuperación de 0,2 y cambios medios instantáneos de cero y un infectado por unidad de tiempo, respectivamente.
La expresión es exacta para las tasas declaradas, pero no cierra una ecuación solo en términos de . Hace falta conocer , que a su vez varía cuando un susceptible se infecta. Todos sus enlaces cambian entonces de tipo y el efecto neto depende de la composición de su vecindario. Aparecen así relaciones entre triples y conjuntos mayores. Una aproximación de pares interrumpe esa dependencia mediante hipótesis adicionales cuya utilidad se evalúa comparando sus predicciones con la dinámica que conserva la estructura completa.
El modelo de Gross y colaboradores produjo regímenes en los que coexisten estados sanos y endémicos estables, así como regiones con oscilaciones bajo ciertas condiciones. Parte del análisis utiliza una aproximación de pares, que estima relaciones entre triples de nodos a partir de cantidades agregadas y cuyos resultados se compararon con simulaciones de la red. Los regímenes obtenidos son propiedades de ese mecanismo y de sus parámetros, sujetas a hipótesis precisas sobre la identificación de estados y la reconexión.
La posibilidad de dos estados estables implica que unas mismas reglas pueden sostener desenlaces diferentes según las condiciones iniciales. En un régimen de ese tipo, reducir temporalmente la infección podría cambiar la estructura de contactos y llevar el sistema a otra región de atracción, algo que solo podría establecerse siguiendo ambas variables durante la intervención y después de retirarla. El modelo da forma a esa pregunta. Responderla para una población humana y una enfermedad concretas, o evaluar una intervención real, requiere mecanismos de contacto e información propios de la población estudiada.
Cambiar la intensidad sin borrar enlaces
La adaptación también puede actuar sobre pesos continuos. En ese caso la existencia de un enlace binario describe apenas una parte de una interacción cuya intensidad cambia con la actividad. Aoki y Aoyagi (2009) estudiaron osciladores cuyas fases y fuerzas de conexión evolucionan conjuntamente. Según las reglas de adaptación consideradas aparecen comportamientos colectivos diferentes, incluidos estados en los que pesos y fases continúan variando.
Una ecuación didáctica muestra cómo un peso almacena información sobre la actividad reciente. Sean y actividades comprendidas entre cero y uno, con un peso que inicialmente está en ese mismo intervalo. Definamos
con , medido en unidades de tiempo inversas. El peso se aproxima al producto de las actividades y se mantiene entre cero y uno, con una escala de relajación determinada por la constante . Se trata de una construcción pedagógica, demasiado simple para describir por sí sola la plasticidad de una sinapsis y distinta del modelo de osciladores citado.
Cuando el producto de actividades es constante e igual a , la solución es . Con , y , el peso alcanza aproximadamente 0,5793 después de cinco unidades de tiempo. Si entonces el producto de actividades pasa a cero, el peso empieza a decaer, pero cinco unidades más tarde vale todavía aproximadamente 0,2131, un resto de la actividad pasada que persiste durante un intervalo aunque el estímulo que reforzó la conexión ya haya desaparecido.
Para completar una red adaptativa, ese peso debe intervenir a su vez en la evolución de los nodos, por ejemplo modulando cuánto contribuye la actividad de a la entrada que recibe . Unos pesos que se calculan y almacenan sin intervenir sobre ninguna dinámica darían una memoria de actividad, pero la realimentación quedaría abierta. Faltaría la flecha causal que va de los pesos a los nodos y el modelo incorporaría un solo sentido del acoplamiento.
Nuestra regla mantiene los pesos no negativos, con lo que deja fuera las conexiones inhibitorias. Tampoco impone un presupuesto total de peso por nodo. Si se añadiera una normalización que mantuviera fija la suma de los pesos de cada nodo, reforzar una conexión reduciría la participación relativa de otras y habría competencia entre enlaces incluso si sus reglas locales de crecimiento fueran similares. Esa normalización formaría parte del mecanismo y debería aparecer en las ecuaciones utilizadas para calcularlo.
Qué reloj utiliza cada proceso
La relación entre escalas temporales admite simplificaciones, siempre que se examine qué se conserva al simplificar. Si las opiniones cambian mucho más deprisa que los contactos, puede estudiarse primero su evolución en una red casi fija y actualizar después los enlaces. En el caso inverso, cuando la estructura cambia muy deprisa, podría intentarse sustituirla por una descripción promedio. Si la reconexión es adaptativa, ese promedio dependerá de los estados actuales; una red promedio independiente de ellos suprimiría parte de la realimentación.
La separación de escalas falla cerca de procesos lentos o de transiciones en los que crece el tiempo de relajación. Un parámetro de adaptación pequeño deja de asegurarla si la dinámica que se suponía rápida también se vuelve lenta. En el análisis de su modelo, Aoki y Aoyagi (2009) mostraron un caso en que la disminución de los pesos vuelve comparables escalas que inicialmente parecían separadas, con lo cual la validez de la aproximación tiene que juzgarse según las tasas efectivas a lo largo de toda la trayectoria.
En nuestro ejemplo, el parámetro decide entre dos ramas mutuamente excluyentes durante un contacto discordante, así que aumentarlo reduce la frecuencia relativa de copias en esos intentos y une dos decisiones que podrían variar por separado. Herrera y colaboradores (2011) desarrollaron un marco con probabilidades independientes para el cambio de estado y la reconexión. Al distinguir ambos procesos pueden explorarse situaciones en las que los dos son frecuentes o los dos son lentos, posibilidades que una única elección entre ramas no representa de la misma manera.
La interpretación del tiempo cambia también si se omiten los intentos sin efecto. Escoger solo enlaces activos acelera el proceso registrado cuando quedan pocos desacuerdos, en comparación con muestrear todos los enlaces y conservar los intentos concordantes. Para comparar duraciones hay que fijar si el reloj cuenta intentos, cambios efectivos o tiempo físico. En nuestro ejemplo cuenta cada intento, incluso el que termina sin cambios, por lo que la secuencia de dos reconexiones que conduce a los triángulos puede incluir muchos intentos intermedios sin efecto.
Reconstruir el mecanismo a partir de observaciones
La semejanza entre vecinos admite varias explicaciones. Pueden haber cambiado por influencia mutua, haberse conectado porque ya compartían características o responder a condiciones comunes. Shalizi y Thomas (2011) demostraron que, bajo estructuras causales con homofilia latente, el efecto de influencia no es identificable de forma no paramétrica a partir de datos observacionales. Una característica no medida puede afectar tanto a la formación de relaciones como a la conducta posterior.
El orden temporal ayuda a descartar algunas explicaciones, pero el problema persiste. Que la conducta de un vecino preceda a la propia deja abierta la posibilidad de una causa común persistente que influyó antes en la relación entre ambos. Sostener una interpretación causal requiere supuestos sustantivos sobre esas causas, mediciones que las representen adecuadamente o variaciones externas justificadas, requisitos que siguen vigentes aunque se ajuste un modelo dinámico con muchos parámetros.
La observación de los enlaces debe ser independiente de la conclusión que se quiere extraer. Cuando una conexión funcional se define a partir de la correlación entre dos series de actividad, un cambio de actividad puede modificar la conexión estimada sin que haya cambiado interacción física alguna. En investigación cerebral, por ejemplo, el vínculo anatómico, una interacción postulada y una dependencia estadística calculada responden a preguntas distintas sobre qué se está adaptando.
Un registro longitudinal útil conserva los estados, los enlaces y las oportunidades de contacto con resolución suficiente para ordenar cambios plausibles, además de los nodos que dejan de observarse. Una relación ausente puede haber terminado, haberse vuelto infrecuente o simplemente no haber quedado registrada dentro de la ventana elegida. Si el procedimiento de medida hace aparecer como aisladas a las personas menos activas, el análisis puede atribuir a una regla de reconexión un cambio que procede de la observación.
En una simulación, el papel de cada regla puede examinarse mediante comparaciones controladas entre una variante que conserva la reconexión selectiva, otra que admite destinos de cualquier opinión y una tercera que mantiene fija la red. Con las restantes tasas declaradas y ejecuciones repetidas desde condiciones iniciales comparables, las diferencias en fragmentación o duración pueden atribuirse al mecanismo cambiado dentro del modelo. Trasladar esa atribución computacional a datos observados es otra tarea, en la que debe comprobarse si las personas o los componentes reales disponen de las opciones que el modelo les concede.
En el ejemplo de seis nodos, una serie que guardara únicamente la proporción de opiniones positivas sería una línea constante durante la fragmentación. Guardar solo la ausencia final de enlaces activos llevaría a confundirla con el consenso. El registro completo muestra primero la desaparición de 3–4 y la aparición de 3–1, después la desaparición de 6–1 y la aparición de 6–4, con las seis opiniones intactas. Al final cualquier intento encuentra dos extremos del mismo estado. Los dos triángulos quedan detenidos porque la regla exige un enlace discordante para iniciar un cambio y ya no queda ninguno.
Referencias
Aoki, T., y Aoyagi, T. (2009). Co-evolution of phases and connection strengths in a network of phase oscillators. Physical Review Letters, 102, 034101. https://doi.org/10.1103/PhysRevLett.102.034101
Gross, T., y Blasius, B. (2008). Adaptive coevolutionary networks: A review. Journal of the Royal Society Interface, 5(20), 259–271. https://doi.org/10.1098/rsif.2007.1229
Gross, T., Dommar D’Lima, C. J., y Blasius, B. (2006). Epidemic dynamics on an adaptive network. Physical Review Letters, 96, 208701. https://doi.org/10.1103/PhysRevLett.96.208701
Herrera, J. L., Cosenza, M. G., Tucci, K., y González-Avella, J. C. (2011). General coevolution of topology and dynamics in networks. EPL, 95, 58006. https://doi.org/10.1209/0295-5075/95/58006
Holme, P., y Newman, M. E. J. (2006). Nonequilibrium phase transition in the coevolution of networks and opinions. Physical Review E, 74, 056108. https://doi.org/10.1103/PhysRevE.74.056108
Shalizi, C. R., y Thomas, A. C. (2011). Homophily and contagion are generically confounded in observational social network studies. Sociological Methods & Research, 40(2), 211–239. https://doi.org/10.1177/0049124111404820
Vázquez, F., Eguíluz, V. M., y San Miguel, M. (2008). Generic absorbing transition in coevolution dynamics. Physical Review Letters, 100, 108702. https://doi.org/10.1103/PhysRevLett.100.108702