COMPLEXA · Ciencias de la Complejidad y Teoría del Caos
Módulo 20. Procesos colectivos sobre redes y transiciones
192.1. Una infección cambia el significado de los contactos
Una red de contactos describe oportunidades de transmisión. Para convertirla en un modelo epidémico hay que definir estados, tasas, duración de contactos y reglas de cambio, e indicar si una persona recuperada puede volver a infectarse y si las relaciones permanecen durante el proceso. Estas decisiones producen dinámicas diferentes sobre el mismo grafo.
El modelo SIR distingue susceptibles, infectados y recuperados o retirados. En su versión básica, la recuperación impide una nueva infección durante el horizonte estudiado. El modelo SIS devuelve a la persona recuperada al estado susceptible. Esa diferencia permite cadenas de reinfección que no existen en el SIR elemental y cambia el significado de persistencia.
El estado infectado puede corresponder a la capacidad de contagiar según una regla idealizada, mientras que el registro empírico puede detectar síntomas o resultados de pruebas en otros momentos. Si se comparan predicciones con datos, hay que modelar esa relación entre estados y observaciones. La curva de casos notificados no equivale automáticamente a la cantidad de personas capaces de transmitir.
En una población homogénea, todos los individuos tienen en promedio oportunidades de contacto equivalentes. Una red permite representar diferencias de grado, repetición de contactos y restricciones de acceso. Dos personas con igual susceptibilidad biológica pueden tener exposiciones distintas por sus relaciones. Dos redes con igual número medio de contactos pueden producir brotes diferentes debido a su organización.
Pastor-Satorras y Vespignani (2001) estudiaron cómo la heterogeneidad de conectividad modifica la propagación en modelos de red. Newman (2002) desarrolló herramientas para analizar epidemias sobre redes aleatorias. Los resultados de ambos trabajos deben leerse con los supuestos de cada modelo, especialmente al pasar del límite de población grande a poblaciones finitas.
El capítulo desarrollará tasas de transmisión, aproximaciones de independencia y probabilidades de brote. Un ejemplo pequeño mostrará que una misma probabilidad marginal de transmitir por enlace puede acompañarse de dependencias distintas entre destinos. Esa precisión hará falta al relacionar epidemias, ramificación y percolación.
192.2. Un proceso estocástico sobre una red conocida
Consideremos una red no dirigida, fija y binaria. Cada enlace entre una persona susceptible y una infectada transmite a tasa ; cada persona infectada se recupera a tasa . Las tasas corresponden a relojes exponenciales en tiempo continuo y tienen unidades de inverso de tiempo. La red indica quién puede infectar a quién durante la ventana. La unidad temporal debe constar junto a cada tasa para que el cálculo pueda reproducirse.
En el modelo SIS, sea el indicador de infección del nodo . Si el nodo tiene varios vecinos infectados, sus tasas de exposición se suman bajo el supuesto de procesos de transmisión independientes condicionados al estado. Mientras permanece susceptible, su tasa instantánea de infección es .
La evolución exacta de la probabilidad marginal es
La ecuación contiene probabilidades conjuntas. Saber cuánto tiempo está infectado cada nodo por separado no determina con qué frecuencia un enlace une un susceptible y un infectado. Los estados de vecinos pueden correlacionarse porque uno contagió al otro, porque comparten exposiciones o porque la recuperación modifica las oportunidades.
Las ecuaciones para pares contienen probabilidades de ternas, las de ternas contienen cuartetos y así sucesivamente. Esta jerarquía explica por qué se usan aproximaciones de cierre. Un modelo de pocos indicadores puede ser computacionalmente conveniente, pero hay que reconocer qué dependencias deja fuera su reducción.
En SIR, el estado recuperado modifica la exposición futura. Un enlace hacia una persona ya recuperada no produce una infección nueva bajo la regla básica. La población susceptible se agota de forma localizada y las rutas de transmisión dejan de ser oportunidades renovables. En SIS, una recuperación puede reabrir esa posibilidad.
La simulación exacta del proceso continuo puede seleccionar el próximo evento según la suma de tasas y el tipo de transición correspondiente. Es exacta respecto del proceso matemático especificado; no garantiza que los relojes exponenciales, la red fija o las tasas uniformes representen correctamente una enfermedad real.
También pueden usarse pasos discretos, pero entonces hay que definir probabilidades y orden de actualización. Una tasa no es directamente una probabilidad por paso. Para un reloj de tasa constante, la probabilidad de al menos un evento durante un intervalo es uno menos una exponencial; si en un mismo paso pueden ocurrir varios eventos que cambian el estado, hay que tratarlos de forma coherente.
192.3. Qué aporta y qué pierde una aproximación por nodos
Una aproximación habitual sustituye la probabilidad conjunta por el producto de marginales. En SIS resulta
La aproximación trata como independientes los estados de los extremos al calcular la exposición. Mantiene las diferencias entre nodos y la matriz completa, pero pierde las correlaciones dinámicas. Su precisión puede ser distinta en cada red y en cada fase del brote. Aunque la red se conozca en detalle, el cierre sigue siendo aproximado.
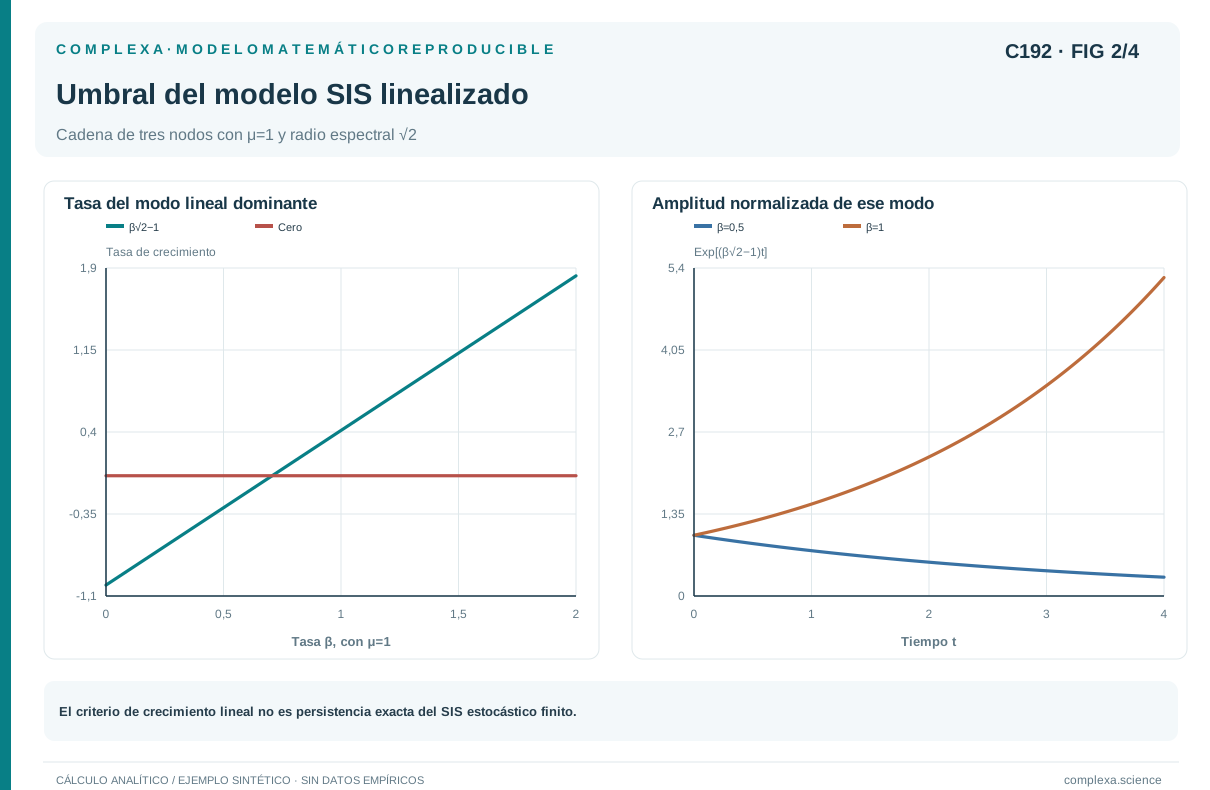
Cerca del estado sin infección se omiten los términos cuadráticos y queda el sistema lineal
El criterio de crecimiento de esta aproximación es , donde es el radio espectral de la adyacencia. El capítulo anterior mostró cómo interpretar esa competencia entre producción y pérdida. El autovector principal indica la forma del modo inicialmente más amplificado dentro del modelo lineal.
Sin condiciones adicionales, este criterio no es un umbral exacto de persistencia para toda epidemia estocástica finita. En SIS sin importaciones, el estado con todos los nodos susceptibles es absorbente; en una población finita y con tasas positivas de recuperación, el proceso termina llegando a él con probabilidad uno. Una fase que parece endémica durante mucho tiempo puede ser un régimen cuasiestacionario.
La aproximación da también una cota. La probabilidad de que un nodo sea susceptible y su vecino esté infectado no supera la probabilidad de infección del vecino; por ello, la ecuación lineal acota por arriba el crecimiento de las marginales bajo las condiciones del proceso. Si ese sistema decae, las probabilidades de infección también quedan controladas por una dinámica decreciente.
Superar el criterio lineal elimina esa garantía de decaimiento rápido, pero no asegura un brote macroscópico. El modo dominante puede estar localizado en pocos nodos, la infección puede extinguirse por azar y las correlaciones pueden modificar la evolución. Deben distinguirse el crecimiento de una aproximación, la duración de una realización y la proporción de población afectada.
Al comparar con simulaciones conviene informar, además del promedio, probabilidades de extinción, duración y tamaño condicionado a la supervivencia durante una ventana. Un promedio bajo puede mezclar muchas extinciones tempranas con unos pocos episodios grandes. Esas distribuciones tienen implicaciones distintas de las de una trayectoria determinista única.
192.4. Heterogeneidad de grados y exposición por enlaces
Un individuo elegido al azar tiene una distribución de grado distinta de la de un individuo alcanzado siguiendo un enlace. Los nodos de grado alto tienen más extremos de enlace y se encuentran con mayor frecuencia. En una red aleatoria sin correlaciones adicionales, la probabilidad de llegar a grado es proporcional a .
Esta ponderación entra en las aproximaciones por clases de grado. Una persona de grado alto tiene más oportunidades de adquirir la infección y, una vez infectada, puede generar más exposiciones. La doble participación del grado produce expresiones que dependen de su segundo momento, además de su media.
En una aproximación heterogénea de campo medio para SIS sobre una red no correlacionada, el umbral adimensional suele expresarse como
La fórmula pertenece a esa aproximación y a su forma de mezclar contactos. No debe confundirse con una identidad válida para cualquier red con esos grados ni con el criterio de ramificación de SIR, porque el papel de la reinfección y la estructura de las correlaciones cambian entre modelos.
Si una familia ideal de redes tiene un segundo momento que aumenta sin límite al crecer el tamaño, esa expresión tiende a cero. En una red finita, el grado máximo y todos los momentos empíricos son finitos. La conclusión asintótica no significa que una transmisión arbitrariamente pequeña produzca siempre un brote grande en una población concreta.
Las correlaciones entre grados modifican las oportunidades de transmisión. Si los nodos muy conectados se relacionan principalmente entre sí, una infección puede concentrarse en esa región; si se conectan con muchas hojas, la estructura de retorno y extensión es diferente. Una distribución marginal de grados no especifica esos patrones.
La temporalidad también altera la interpretación del grado. Tener cien contactos distintos durante un año no equivale a tenerlos disponibles a la vez durante un periodo infeccioso de pocos días. El grado agregado puede sobreestimar las rutas temporalmente accesibles. La duración y el orden de los encuentros deben compararse con las escalas de transmisión y recuperación.
Las diferencias de actividad pueden coexistir con diferencias de susceptibilidad o duración infecciosa. Si esas variables se correlacionan, una aproximación que usa solo grados puede atribuir a la topología efectos que proceden de otra heterogeneidad. El modelo debe incluir las variables pertinentes a la pregunta y conservar la incertidumbre sobre las no observadas.
Una comparación idealizada permite separar media y heterogeneidad. En una población donde todos tienen grado cuatro, la media de grados es cuatro y el segundo momento es dieciséis. En otra, la mitad tiene grado dos y la otra mitad grado seis; la media sigue siendo cuatro, pero el segundo momento sube a veinte. Bajo la aproximación SIS anterior, los umbrales del cociente de tasas serían un cuarto y un quinto, respectivamente. La población más heterogénea tiene un umbral menor dentro de ese modelo.
Para SIR, el grado excedente medio sería tres en la primera población y cuatro en la segunda. Los umbrales de transmisibilidad de la aproximación arborescente serían un tercio y un cuarto. Las cuatro cifras no miden lo mismo, ya que dos corresponden a un cociente de tasas en SIS y dos a una probabilidad de transmisión en SIR. La diferencia procede tanto del proceso de recuperación como del recuento de oportunidades nuevas.
La comparación presupone redes aleatorias con la mezcla pertinente y tamaños suficientemente grandes. Dos redes particulares construidas con esas secuencias no tienen por qué reproducir exactamente los umbrales, ya que podrían diferir en comunidades, ciclos cortos o distribución de contactos temporales. El ejercicio identifica el efecto que el modelo atribuye a la heterogeneidad cuando mantiene controladas las demás condiciones.
192.5. De una tasa a una probabilidad de transmisión
En SIR interesa a menudo la probabilidad de que un enlace transmita antes de que la fuente se recupere. Si el tiempo de transmisión es exponencial de tasa y la recuperación es exponencial independiente de tasa , la competencia entre ambos relojes da
La cantidad es adimensional y se denomina transmisibilidad en ese modelo. No coincide con la tasa ni con su cociente con la recuperación. Una tasa pequeña durante mucho tiempo puede producir una probabilidad apreciable; una tasa alta durante un periodo muy corto puede tener otro resultado.
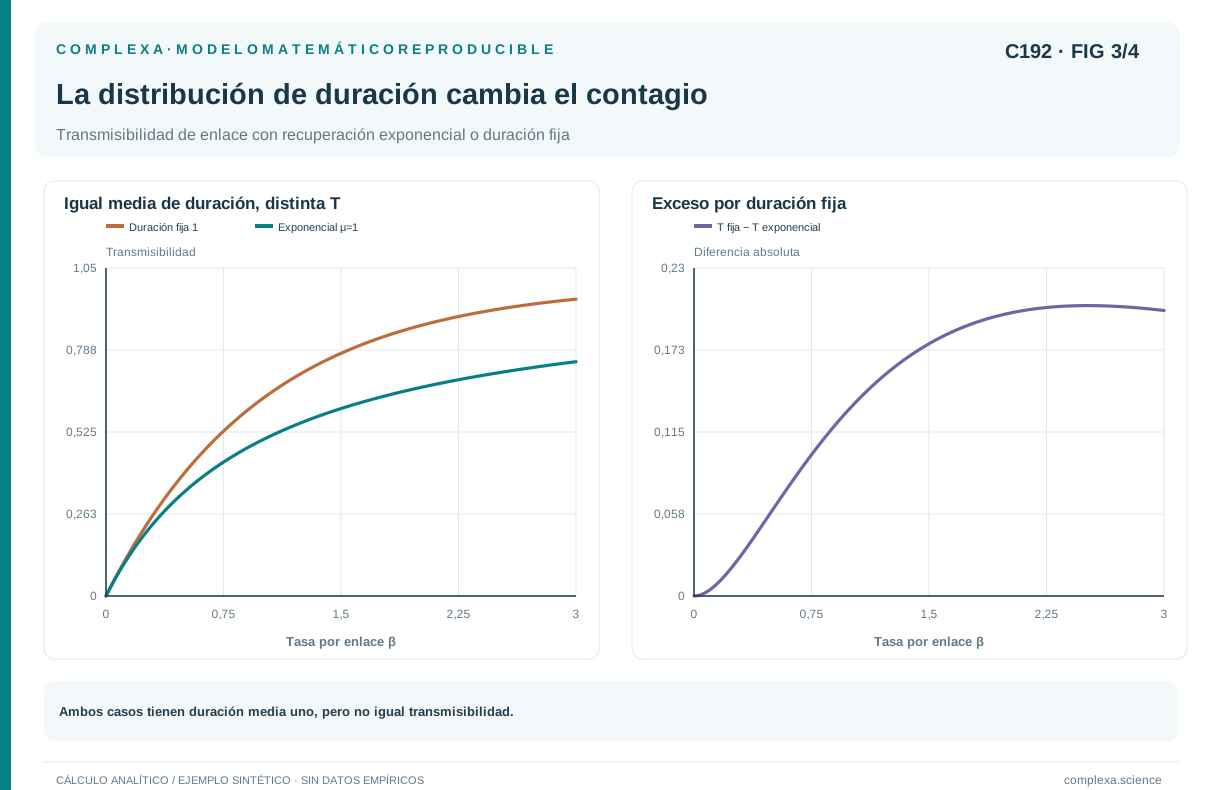
Si la duración infecciosa es una constante , la probabilidad de transmitir por un enlace de tasa es . Si la duración es una variable aleatoria , hay que promediar esa expresión, de modo que
Reemplazar la duración por su media no suele dar la misma probabilidad. Dos poblaciones con igual duración media pueden tener transmisibilidades diferentes bajo la misma tasa.
La transmisión también puede depender del enlace. Contactos de duración, intensidad o contexto distintos requieren tasas o probabilidades distintas. En una red dirigida, la probabilidad de transmisión de una persona a otra puede diferir de la inversa. Una matriz simétrica de contactos no obliga a que las susceptibilidades y capacidades de contagio sean simétricas.
El cálculo presupone que el enlace está disponible durante el periodo relevante. Si el contacto termina antes de la recuperación o comienza después de parte del periodo infeccioso, cambia la ventana de exposición. Si existen periodos latentes, la persona infectada puede no transmitir inmediatamente. Esas modificaciones deben incorporarse a la distribución temporal.
También debemos distinguir transmisión potencial y transmisión realizada. Un enlace puede tener capacidad de transmitir, pero su destino podría haber sido infectado antes por otra fuente o estar ya recuperado. Esta competencia entre rutas, que una probabilidad por enlace no recoge, aparece al estudiar el brote completo.
Estos detalles explican por qué la estimación de transmisibilidad requiere alinear contactos y estados. Que dos casos estén conectados no establece quién transmitió a quién ni cuánto riesgo correspondía al enlace. El modelo observacional debe considerar tiempos, fuentes alternativas y cobertura del registro.
Podemos comprobar el efecto de la duración con dos distribuciones de igual media. Si la duración es exactamente una unidad y la tasa por enlace es uno, la transmisibilidad vale aproximadamente 0,6321. Si la duración es exponencial con media uno, vale un medio. El promedio temporal es idéntico, pero en el segundo modelo una fracción de recuperaciones muy tempranas reduce oportunidades. Los periodos largos no compensan linealmente esa pérdida porque una probabilidad de transmisión nunca supera uno.
Matemáticamente, la función exponencial negativa es convexa en la duración. Su esperanza es al menos el valor que toma en la duración media; por ello, entre distribuciones con esa media, una duración constante maximiza esta transmisibilidad particular. El argumento no permite ordenar cualquier par de distribuciones comparando solo sus varianzas; una ordenación más general requiere condiciones sobre cómo difieren sus distribuciones.
192.6. Una duración compartida produce dependencia
Consideremos una estrella con un nodo central infectado y dos hojas susceptibles. Cada enlace transmite con tasa uno y la fuente se recupera con tasa uno. Los relojes de transmisión hacia las hojas son independientes, pero ambos compiten con el mismo tiempo de recuperación del nodo central.
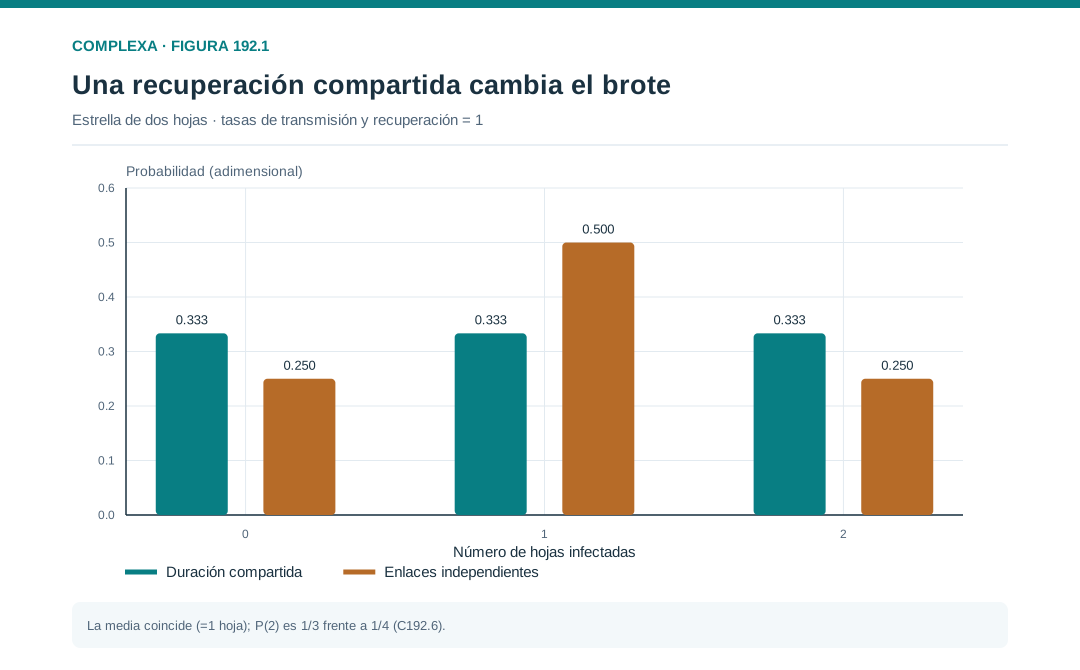
La probabilidad marginal de infectar cada hoja es un medio. Sería tentador tratar ambas transmisiones como independientes y calcular la probabilidad de infectar a las dos como un cuarto. Ese paso es incorrecto porque una recuperación tardía aumenta a la vez las oportunidades de ambos enlaces.
Condicionado a una duración infecciosa , cada transmisión ocurre con probabilidad y ambas son independientes. Al integrar sobre una duración exponencial de tasa uno se obtiene
La probabilidad de no infectar a ninguna es también un tercio, porque exige que ninguno de los dos relojes de transmisión actúe antes de la recuperación. La probabilidad restante, un tercio, corresponde a infectar exactamente una hoja. La distribución del número de transmisiones es uniforme entre cero, uno y dos.
Si los enlaces se abrieran de manera independiente con probabilidad un medio, las probabilidades serían un cuarto, un medio y un cuarto. Ambos modelos tienen una transmisión esperada, pero distribuciones diferentes. El tamaño final del brote, incluida la fuente, tiene media dos en ambos casos y distinta variabilidad.
Kenah y Robins (2007) analizaron por qué algunas equivalencias entre epidemias y percolación independiente necesitan más cuidado cuando las transmisiones comparten una duración infecciosa aleatoria. Que las transmisiones sean independientes condicionadas a un parámetro o tiempo compartido no implica que lo sean después de promediarlo.
La dependencia desaparece en esta construcción si fijamos la duración y mantenemos relojes de transmisión independientes. También pueden definirse modelos directamente en términos de probabilidades independientes por enlace. Esos modelos son legítimos, aunque parten de supuestos distintos de los del proceso con recuperación aleatoria compartida.
Al usar resultados de percolación hay que comprobar qué cantidades se conservan (umbral de crecimiento, tamaño medio, probabilidad de epidemia o distribución completa de tamaños). Que una correspondencia funcione para una de esas cantidades no garantiza que funcione para todas. La auditoría debe especificar el alcance de cada equivalencia.
En el modelo específico analizado por Kenah y Robins, la percolación independiente conserva el umbral, la media de tamaños por debajo del umbral y la fracción final de una epidemia grande, pero en general no conserva la probabilidad de que esa epidemia ocurra. Por eso la fracción afectada condicionada a un episodio grande no debe confundirse con el promedio incondicional sobre todos los brotes, incluidos los que se extinguen pronto.
192.7. Ramificación temprana y agotamiento posterior
En una red grande, dispersa y aproximadamente arborescente a escala local, las primeras generaciones de SIR pueden aproximarse mediante ramificación. Una persona infectada al seguir un enlace tiene un grado sesgado por el número de extremos. Como uno de sus enlaces ya se usó para llegar a ella, le quedan aproximadamente grado menos uno oportunidades nuevas.
Si la transmisibilidad es homogénea y se cumplen las condiciones pertinentes de independencia entre ramas, el número reproductivo de esa aproximación es
La condición de crecimiento es que supere uno. El factor de grado excedente procede de la exploración de la red; la transmisibilidad fija qué fracción esperada de esas oportunidades produce infección. La persona inicial, elegida de otra manera, puede tener una distribución de descendencia distinta de la de quienes se alcanzan por transmisión.
El criterio usa una media, pero la extinción depende de toda la distribución de descendencia. El ejemplo de la estrella ya mostró que compartir transmisibilidad marginal y número esperado de infecciones no determina la variabilidad.
La aproximación funciona mejor antes de que las ramas se encuentren. Cuando dos fuentes intentan infectar a la misma persona, contar ambos intentos como casos nuevos sobrestima el crecimiento. Los triángulos y otros ciclos cortos aumentan esas oportunidades de redundancia, aunque también pueden generar exposiciones repetidas relevantes para otros mecanismos.
A medida que avanza un brote SIR, disminuye la población susceptible y cambia su distribución sobre la red. Los nodos con más exposición pueden infectarse antes y dejar una población restante con oportunidades distintas. La reducción de la transmisión efectiva depende de la fracción global de susceptibles y también de dónde están.
En SIS, las recuperaciones reponen susceptibles y permiten recorridos de ida y vuelta, de modo que la aproximación de grado excedente de SIR no se traslada sin cambios. Las reinfecciones, las correlaciones de pares y la persistencia local pueden adquirir importancia. Usar una fórmula conocida fuera de su proceso de derivación puede producir un umbral de apariencia precisa y significado incorrecto.
El capítulo siguiente desarrollará la ramificación como objeto propio. Aquí sirve para identificar un régimen de validez, el de la expansión temprana con pocas colisiones entre rutas. Fuera de ese régimen necesitamos modelos que incluyan agotamiento, estructura local y cambios temporales de las oportunidades.
La persona inicial y las generaciones posteriores también pueden tener medias diferentes aunque todos los grados sean iguales. En una red localmente arborescente de grado cuatro y transmisibilidad de tres décimas, una fuente inicial dispone de cuatro destinos y produce en promedio 1,2 infecciones. Cada persona alcanzada después dispone de solo tres destinos nuevos, porque uno de sus enlaces conduce a la fuente que la infectó. Su descendencia media es nueve décimas y la ramificación es subcrítica.
Por tanto, que la primera fuente genere en promedio más de un caso no demuestra crecimiento sostenido. En el modelo de árbol, la suma esperada de casos, incluida esa fuente, es uno más 1,2 multiplicado por la serie geométrica de razón nueve décimas, es decir, trece. La esperanza puede ser apreciable aunque la extinción sea segura. El cálculo pertenece al modelo sin colisiones entre ramas; en una población finita, los contactos repetidos y el agotamiento pueden modificarlo.
Esta distinción ayuda a diseñar comparaciones de brotes introducidos de maneras diferentes. Una introducción elegida uniformemente entre personas, otra concentrada en nodos de alta actividad y otra que llega siguiendo contactos no tienen la misma distribución inicial. Para atribuir diferencias al mecanismo de transmisión hay que conservar o modelar esa selección de fuentes.
192.8. Tipos de contacto y matrices de próxima generación
Cuando existen tipos de individuos o contextos, el crecimiento puede describirse mediante una matriz de próxima generación. La entrada es el número esperado de nuevas infecciones de tipo producidas por una persona infectada de tipo , en una población inicialmente susceptible y bajo la definición temporal del modelo.
La matriz integra contacto, transmisión y duración infecciosa. Su radio espectral determina el criterio de crecimiento de la aproximación de varios tipos. La media simple de sus entradas o de sus sumas de columnas no cumple ese papel en general, porque las generaciones modifican la composición de tipos.
Consideremos la matriz
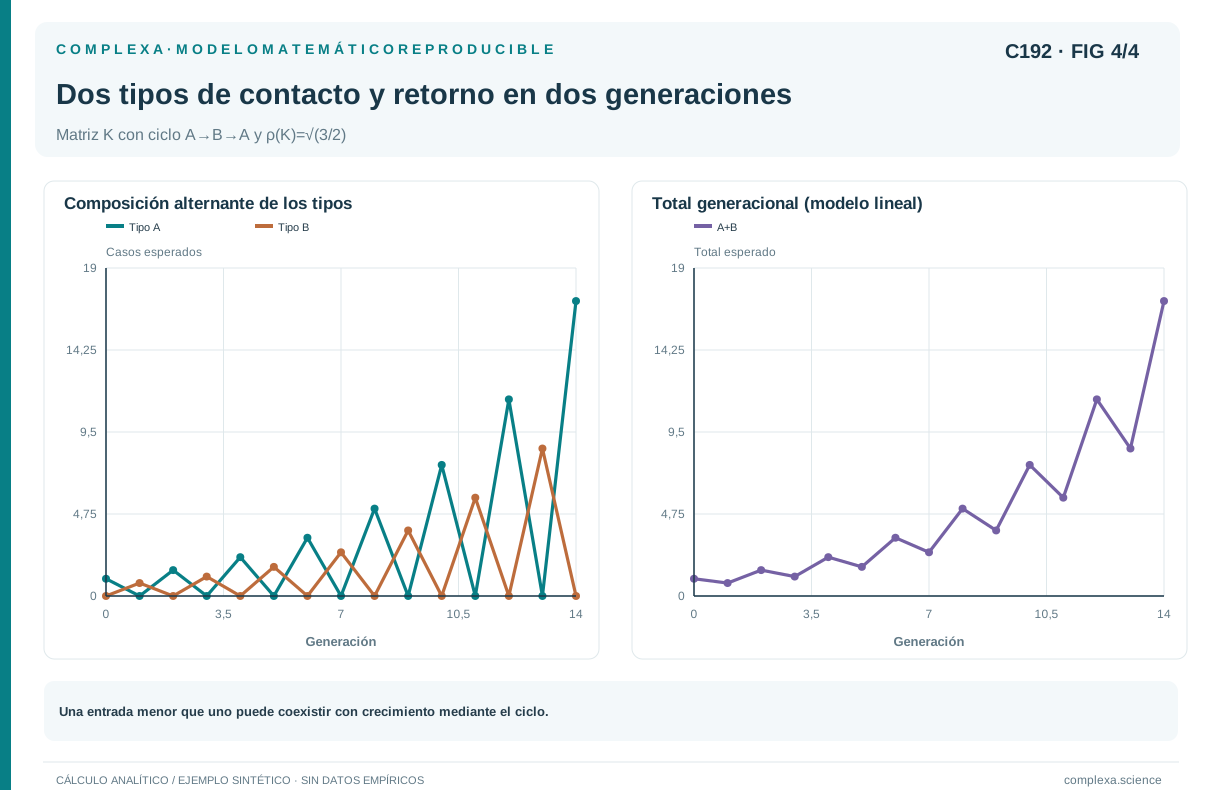
Una infección de tipo A produce en promedio tres cuartos de una infección de tipo B; una de tipo B produce dos de tipo A. En dos generaciones, cada tipo se multiplica por un factor de tres medios. El radio espectral es la raíz de tres medios, aproximadamente 1,225, por lo que la aproximación es supercrítica.
El tipo A produce menos de un caso directo en promedio y, aun así, participa en un ciclo de transmisión creciente. Evaluar cada tipo por separado perdería el retorno a través del otro. En este ejemplo, sin transmisiones dentro de un mismo tipo, la composición alterna entre generaciones; el crecimiento se aprecia con claridad al considerar pares de generaciones.
La definición del tipo puede corresponder a grado, edad, ubicación o papel de contacto. Debe ser lo bastante informativa para que los valores esperados tengan sentido y lo bastante simple para estimarse con los datos disponibles. Dividir en muchas categorías produce matrices grandes con entradas poco determinadas.
Si las intervenciones modifican contactos, susceptibilidad o duración, cambian entradas distintas de la matriz. Comparar esas modificaciones requiere costos y restricciones explícitos. Una reducción porcentual idéntica en dos entradas puede tener efectos diferentes sobre el crecimiento, según su posición en los ciclos de transmisión.
La matriz describe la fase inicial bajo condiciones dadas; el tamaño final y la respuesta de comportamiento requieren información adicional. Cuando cambian las oportunidades o la distribución de susceptibles, puede ser necesario actualizarla o usar un modelo dinámico más completo. Una cifra reproductiva resume un régimen y no sustituye a la trayectoria completa.
192.9. Contactos observados, comportamiento y validación
Una red de proximidad, una encuesta de contactos y un registro de interacciones digitales describen objetos diferentes. La proximidad física puede ser una oportunidad de exposición, pero su relación con la transmisión depende del mecanismo. Un mensaje digital puede transportar información sobre una conducta y carecer de relación directa con una infección biológica. El significado del enlace debe preceder al modelo.
Las personas pueden modificar sus contactos al enfermar, percibir riesgo o responder a medidas colectivas. La red deja entonces de ser un soporte fijo y pasa a formar parte de la dinámica. Eliminar enlaces cuando aparecen síntomas puede reducir la transmisión y, al mismo tiempo, introducir retrasos de detección. Una red observada durante un brote ya puede reflejar esa adaptación.
La omisión de contactos afecta las predicciones de manera desigual. Perder un enlace entre regiones puede ocultar una ruta de introducción; perder uno redundante dentro de un grupo puede cambiar menos la accesibilidad. La observación parcial de los capítulos anteriores reaparece aquí como incertidumbre sobre el proceso, además de la estructura.
La validación debe separar los datos de ajuste de los de evaluación. Un modelo puede reproducir la curva agregada con combinaciones diferentes de tasas, contactos y duración, de modo que esa concordancia no identifica necesariamente cada parámetro. La información sobre tiempos de generación, distribución de casos por grupos o contactos observados puede ayudar a discriminar explicaciones.
La evaluación también debe incluir la variabilidad estocástica. Comparar una trayectoria simulada con una curva empírica puede confundir una realización afortunada con un buen modelo. Conviene examinar distribuciones predictivas y resultados relevantes, como el comienzo, la duración, el alcance y el reparto de infecciones entre grupos.
Los cambios de detección pueden alterar la curva registrada sin que cambie en igual medida la transmisión. Un aumento de pruebas o una modificación del criterio de notificación afecta el número observado de casos. El modelo de observación debe acompañar al modelo epidemiológico cuando se pretende interpretar esos cambios.
Estas consideraciones exigen seleccionar los detalles que pueden cambiar la respuesta a la pregunta. Un modelo sencillo bien delimitado puede ser útil para comparar mecanismos; una representación detallada sin parámetros identificables puede dar una precisión aparente que los datos no sostienen.
192.10. Una lectura completa del resultado epidémico
El análisis debe comenzar por fijar el significado de los estados susceptible, infectado y recuperado, así como el periodo en que la red se considera válida. Después se definen tasas, distribuciones de duración y reglas de exposición. Solo entonces puede elegirse una aproximación y evaluarse qué dependencias omite.
Los umbrales espectrales, de campo medio y de ramificación responden a construcciones relacionadas, pero diferentes. La linealización por nodos usa la adyacencia y una independencia aproximada. El campo medio por grados integra la heterogeneidad bajo supuestos de mezcla. La ramificación de SIR cuenta oportunidades nuevas mediante el grado excedente. Ninguna fórmula debe trasladarse sin revisar su proceso de origen.
El ejemplo de duración compartida muestra que una probabilidad por enlace no determina toda la distribución del brote. El de varios tipos muestra que una reproducción menor que uno dentro de una etapa puede formar parte de un ciclo creciente. Ambos obligan a estudiar la organización de las dependencias, además de los promedios.
Una conclusión proporcionada distingue crecimiento inicial, probabilidad de extinción, persistencia durante una ventana y tamaño final. También separa los resultados del proceso ideal de las inferencias sobre datos observados. Esa distinción permite comparar modelos sin atribuir toda la dinámica epidémica a una única cifra.
Las redes amplían lo que puede explicarse sobre contactos heterogéneos, siempre que el modelo respete su significado y su temporalidad. En los próximos capítulos desarrollaremos las herramientas de ramificación y percolación que permiten organizar esas predicciones y reconocer dónde dejan de ser aproximaciones adecuadas.
Referencias
- Kenah, E., y Robins, J. M. (2007). Second look at the spread of epidemics on networks. Physical Review E, 76, 036113. DOI.
- Newman, M. E. J. (2002). Spread of epidemic disease on networks. Physical Review E, 66, 016128. DOI.
- Pastor-Satorras, R., y Vespignani, A. (2001). Epidemic spreading in scale-free networks. Physical Review Letters, 86, 3200–3203. DOI.