COMPLEXA · Ciencias de la Complejidad y Teoría del Caos
Módulo 20. Procesos colectivos sobre redes y transiciones
193.1. Seguir descendientes para comprender propagación
Una infección puede generar otras infecciones, una activación puede desencadenar nuevas activaciones y una falla puede provocar fallas adicionales. En las primeras etapas, cuando las ramas apenas se encuentran y los recursos todavía no se agotan, estos procesos pueden aproximarse mediante una estructura de descendencia en la que cada evento produce un número aleatorio de eventos posteriores.
Un proceso de ramificación abstrae esa reproducción y deja en segundo plano la identidad concreta de los participantes. La simplificación permite estudiar cuándo la actividad se extingue, cuándo puede persistir y cómo se distribuye el número total de eventos. Sus resultados dependen de supuestos precisos sobre independencia, homogeneidad y disponibilidad de destinos.
El modelo de Galton–Watson organiza la actividad en generaciones discretas. Cada individuo o evento produce una cantidad entera no negativa de descendientes, independientemente de los demás y con la misma distribución. La palabra «individuo» puede designar una persona, una célula o una unidad de actividad; su significado debe fijarse en la aplicación.
No toda propagación sobre una red se ajusta a este modelo. Si dos fuentes activan al mismo nodo, si un recurso se consume o si una persona necesita varias exposiciones, la descendencia de las ramas puede dejar de ser independiente. En esos casos la ramificación aproxima solo un régimen del sistema completo.
Su utilidad está en separar cuestiones que los promedios suelen mezclar. La actividad media puede crecer aunque muchas realizaciones desaparezcan pronto. Un proceso puede extinguirse con certeza y tener un tamaño total esperado infinito. Dos mecanismos con la misma descendencia media pueden presentar probabilidades de supervivencia diferentes.
Desarrollaremos esas distinciones mediante distribuciones sencillas y cálculos explícitos. Después examinaremos las avalanchas, sus leyes de escala y los problemas de observación. El objetivo es reconocer qué evidencia permite relacionar una secuencia de eventos con un mecanismo de ramificación y qué conclusiones quedarían pendientes.
193.2. Generaciones, descendencia y crecimiento medio
Sea el número de individuos de la generación , con una fuente inicial . Cada individuo produce una variable de descendencia , con probabilidades . La evolución es
Si una generación queda vacía, todas las posteriores también lo están; en este modelo sin entradas externas, la extinción es absorbente. Añadir inmigración o impulsos continuos produce otro proceso y cambia la interpretación de una secuencia que parece persistente.
Denotemos por la media de descendencia y por su varianza, cuando existen. Condicionado a la generación actual, la media de la siguiente es . Al promediar se obtiene
Si la media es menor que uno, la esperanza disminuye geométricamente; si supera uno, crece; si es exactamente uno, permanece constante. Estas afirmaciones describen un promedio sobre realizaciones y no indican que cada trayectoria siga una curva geométrica.
La varianza condicional de la siguiente generación es . Combinando la variación dentro y entre generaciones se obtiene una recurrencia que incluye tanto la aleatoriedad reproductiva como la dispersión acumulada. En el caso crítico, con una fuente y varianza finita, la varianza de es .
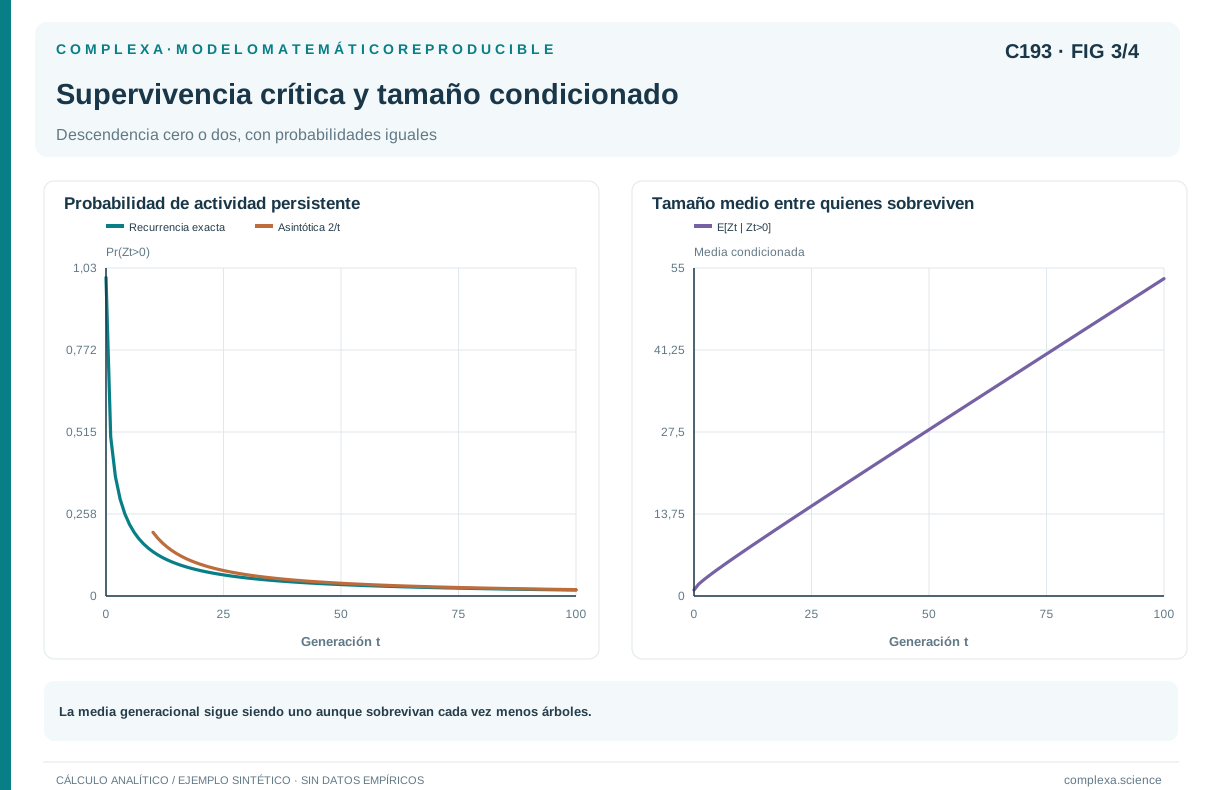
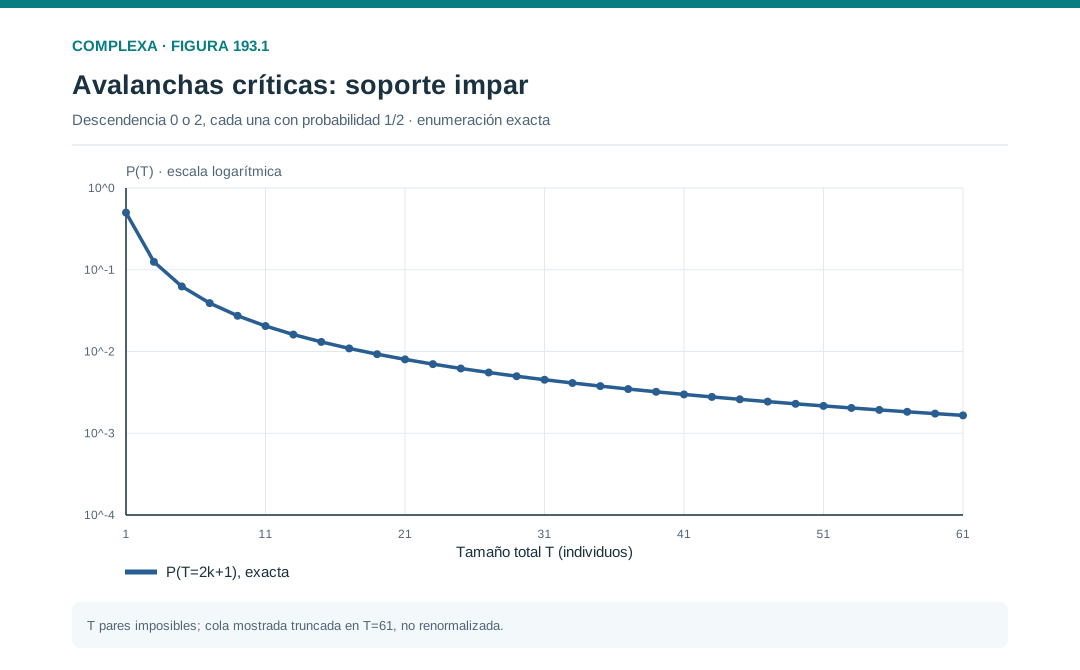
Por tanto, una media constante puede acompañarse de una dispersión creciente. En un proceso crítico ordinario, cada vez más realizaciones han desaparecido y las que sobreviven sostienen poblaciones mayores. El promedio igual a uno no describe una realización típica con una unidad de actividad constante.
Conviene separar el caso determinista en que cada individuo produce exactamente un descendiente. Ese caso también tiene media uno, pero nunca se extingue ni fluctúa. Muchos resultados críticos requieren excluir esta degeneración y suponer variabilidad reproductiva. Una etiqueta basada solo en la media no recoge todas las condiciones del teorema.
Si hay varias fuentes iniciales y sus descendencias son independientes, las poblaciones se suman. La media se multiplica por el número de fuentes y la probabilidad de extinción conjunta depende de que desaparezcan todas. En una red real, la independencia entre fuentes puede fallar cuando sus ramas compiten por los mismos destinos.
Un cálculo de dos generaciones muestra cuán diferente puede ser el promedio de la experiencia de una realización. Usemos la descendencia cero o dos con probabilidades dos quintos y tres quintos. En la primera generación la media es 1,2 y la varianza 0,96. En la segunda, la media sube a 1,44, pero la probabilidad de estar ya extinto es 0,496; casi la mitad de las realizaciones está vacía.
Entre las que siguen activas, el número medio de individuos es 1,44 dividido por 0,504, aproximadamente 2,857; ese promedio condicionado supera con creces al promedio sobre todas las fuentes iniciadas. Si un registro comienza a observar solo después de detectar actividad sostenida, puede parecer que cada fuente produce más población de la que corresponde al conjunto original.
La varianza de la segunda generación, 2,5344, se obtiene sumando la variabilidad de reproducción dentro de una generación de tamaño dado y la variabilidad del propio tamaño de esa generación. Separar ambas contribuciones muestra por qué una descripción que reemplaza todos los tamaños por sus medias pierde dispersión acumulada.
193.3. Calcular la probabilidad de extinción
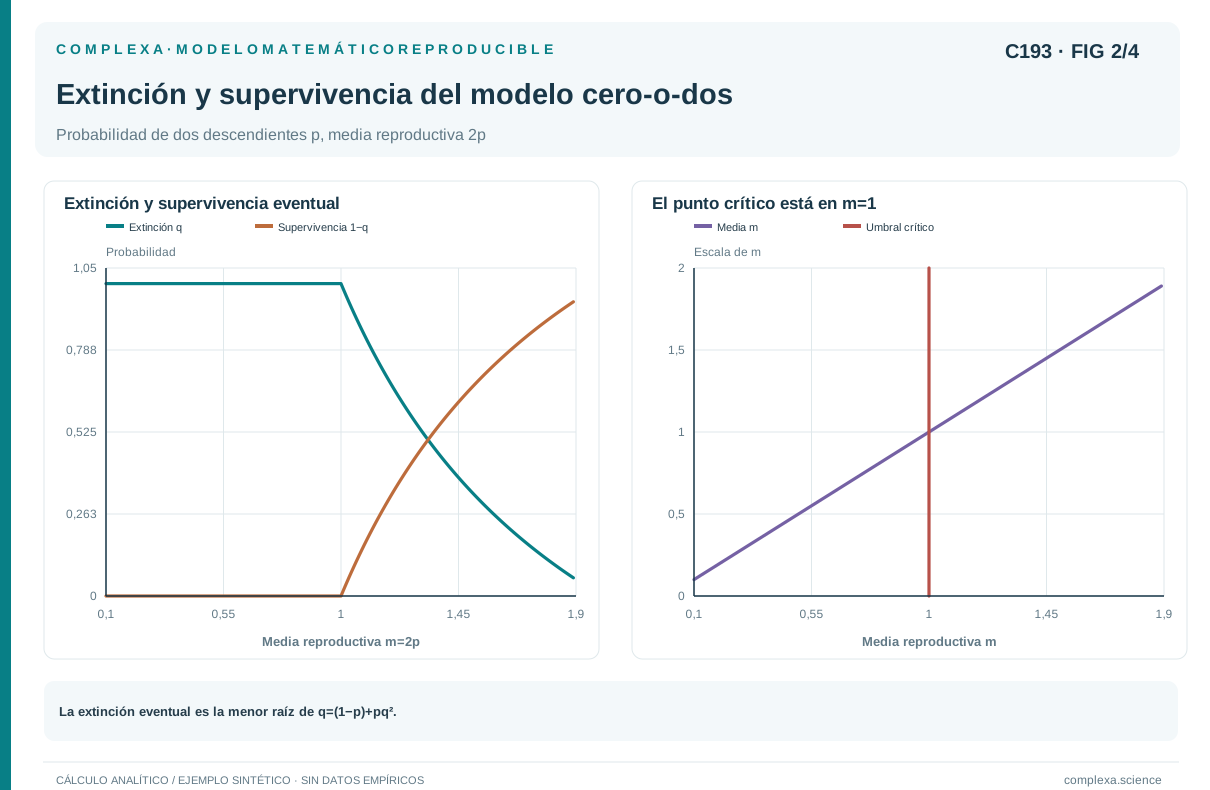
La función generadora de la descendencia es
Si la probabilidad de extinción de una rama es , una fuente que produce descendientes se extingue finalmente cuando se extinguen las ramas. Bajo independencia, esa probabilidad es . Al promediar sobre la descendencia se obtiene la ecuación
La probabilidad de extinción es la menor solución en el intervalo entre cero y uno. La solución uno siempre existe porque las probabilidades suman uno, pero puede haber otra menor. El álgebra no distingue entre las raíces; elegir la correcta exige considerar el proceso.
Una forma constructiva comienza con y aplica . Cada término es la probabilidad de que la población ya esté vacía en la generación correspondiente. La sucesión crece y converge a la probabilidad de extinción eventual. El procedimiento sirve también para distribuciones sin solución cerrada.
Bajo las condiciones ordinarias del modelo y excluyendo la descendencia determinista igual a uno, una media no mayor que uno conduce a extinción con probabilidad uno. Si la media supera uno, hay una probabilidad positiva de supervivencia. Cuando ningún individuo puede producir cero descendientes, la extinción es imposible; ese caso también debe reconocerse al interpretar las raíces.
Retomemos la descendencia cero o dos con probabilidades dos quintos y tres quintos. La media es 1,2 y la ecuación de extinción es
Sus raíces son uno y dos tercios. La extinción ocurre con probabilidad dos tercios y la supervivencia indefinida con probabilidad un tercio. Pese al crecimiento medio positivo, la mayoría de las realizaciones se extingue.
Si la descendencia fuera Poisson con la misma media 1,2, la función generadora sería una exponencial y la probabilidad de extinción sería aproximadamente 0,6863. Con igual media, la diferencia respecto de dos tercios procede del resto de la distribución. Un número reproductivo permite clasificar el régimen bajo sus supuestos, pero no determina por completo la probabilidad de brote.
El número de fuentes cambia la probabilidad de observar supervivencia sin modificar la regla de reproducción. Con cuatro fuentes independientes en el ejemplo de descendencia binaria supercrítica, la probabilidad de que todas se extingan es dos tercios elevado a la cuarta potencia, igual a dieciséis ochenta y unavos. La probabilidad de que sobreviva al menos una es entonces aproximadamente 0,8025, aunque el parámetro reproductivo de cada rama sigue siendo 1,2.
Una mayor frecuencia de episodios persistentes puede deberse así a más introducciones, incluso si no cambió la dinámica interna. La comparación requiere conocer cuántas fuentes iniciaron cada episodio y si sus descendencias pudieron considerarse independientes. Si varias ramas se unen sobre los mismos nodos, la potencia de probabilidades deja de describir la situación. Si las introducciones ocurren en momentos diferentes, también hay que alinear sus horizontes de seguimiento antes de decidir que desaparecieron o sobrevivieron.
193.4. Tamaño total y una esperanza engañosa
El tamaño total de una cascada iniciada por una fuente es
Incluye la fuente inicial. Si el proceso sobrevive indefinidamente, el total es infinito en el modelo ideal; en una población finita, esa posibilidad se sustituye por restricciones de recursos, colisiones o un horizonte de observación.
En el régimen subcrítico, las esperanzas forman una serie geométrica y su suma es
La fórmula muestra que una media reproductiva inferior a uno puede producir un tamaño esperado grande cuando se aproxima a la unidad. Con media nueve décimas el total esperado es diez; con media noventa y nueve centésimas, cien.
La variabilidad puede ser todavía mayor. Si la varianza de descendencia es finita, el total subcrítico cumple
Para descendencia Poisson de media nueve décimas, la varianza total es novecientos y la desviación estándar, treinta, tres veces la media. Con media 0,99, la varianza es novecientos noventa mil. Un promedio calculado a partir de pocas cascadas puede cambiar mucho cuando aparece un episodio grande.
En el caso crítico no degenerado, la extinción tiene probabilidad uno, pero el tamaño total esperado es infinito. La suma asigna a los episodios muy grandes un peso suficiente para que la esperanza diverja, aunque ningún episodio individual tenga que ser infinito con probabilidad positiva.
Esta propiedad es matemática y depende de un modelo sin límite de recursos. Una red finita, una duración máxima o una capacidad de registro producen cortes. Una divergencia teórica no debe interpretarse como una cantidad física infinita observada. Lo relevante es cómo cambian el rango de tamaños y sus momentos al aumentar los límites del sistema.
El tamaño total tampoco determina la duración. Una cascada puede alcanzar muchos individuos en pocas generaciones o mantener una actividad pequeña durante mucho tiempo. Para estudiar avalanchas conviene conservar ambos resúmenes por separado y examinar su relación bajo el modelo propuesto.
La fórmula de la varianza total puede derivarse sin sumar explícitamente todas las generaciones. El árbol completo contiene la raíz y tantos subárboles independientes como descendientes tenga esa raíz. Cada subárbol se distribuye como el árbol original. Al condicionar al número de descendientes, la esperanza total es uno más ese número multiplicado por el tamaño medio de un subárbol. Promediar recupera la ecuación de la media y su solución geométrica.
Para la varianza aparecen de nuevo dos contribuciones. La primera es la media de descendientes multiplicada por la varianza de un subárbol. La segunda es la varianza de descendientes multiplicada por el cuadrado del tamaño medio de un subárbol. Despejar la varianza total produce el denominador cúbico de la expresión anterior. La derivación usa independencia entre subárboles y finitud de los momentos en el régimen subcrítico.
Este razonamiento permite localizar qué falla cuando hay competencia por recursos. Si los subárboles comparten destinos, sus tamaños ya no son independientes y aparecen covarianzas. Si el ambiente modifica simultáneamente todas las ramas, también cambia la descomposición. Una fórmula de momentos es útil precisamente porque muestra qué relaciones se omitieron; trasladarla a otro mecanismo exige comprobar esas relaciones antes de sustituir un valor de reproducción.
193.5. Un proceso crítico que solo produce tamaños impares
Tomemos descendencia cero o dos con igual probabilidad. La media y la varianza valen uno. Cada individuo se detiene o se divide en dos ramas, por lo que el árbol resultante es binario completo.
Si individuos se dividen, hay hojas y el tamaño total es . Por tanto, los tamaños pares son imposibles. Esta restricción combinatoria debe conservarse al comparar una fórmula asintótica con frecuencias discretas.
El número de árboles ordenados de esa forma es un número de Catalan. Cada árbol con individuos tiene probabilidad , de modo que
Las probabilidades de tamaños uno, tres, cinco y siete son un medio, un octavo, un dieciseisavo y cinco sobre ciento veintiocho. Los episodios pequeños son frecuentes, pero la cola permite tamaños mucho mayores.
La aproximación asintótica de los coeficientes combinatorios produce una disminución proporcional a la potencia menos tres medios del tamaño, evaluada sobre los tamaños impares permitidos. La cola acumulada, en cambio, disminuye como una potencia de exponente menos un medio.
La periodicidad del soporte afecta constantes y representaciones. Un histograma que incluya ceros en todos los tamaños pares no debe analizarse como si esas ausencias fueran fluctuaciones de una distribución continua. Agrupar intervalos puede ocultar la restricción, que sigue presente en el modelo generador.
La misma construcción permite entender la duración. Sea la probabilidad de seguir activo en la generación . La recurrencia de extinción da
Cuando la supervivencia es pequeña, la disminución por generación es proporcional a su cuadrado y se obtiene el comportamiento asintótico . La probabilidad de terminar en una generación concreta decae, asintóticamente, como el inverso del cuadrado de la duración. Tamaño, supervivencia y duración puntual tienen exponentes diferentes.
Este ejemplo muestra por qué una afirmación sobre leyes de escala debe indicar la variable, si se grafica probabilidad puntual o acumulada y qué valores están permitidos. Una cifra aislada de exponente omite parte esencial del resultado.
193.6. Descendencia Poisson y el corte lejos de criticidad
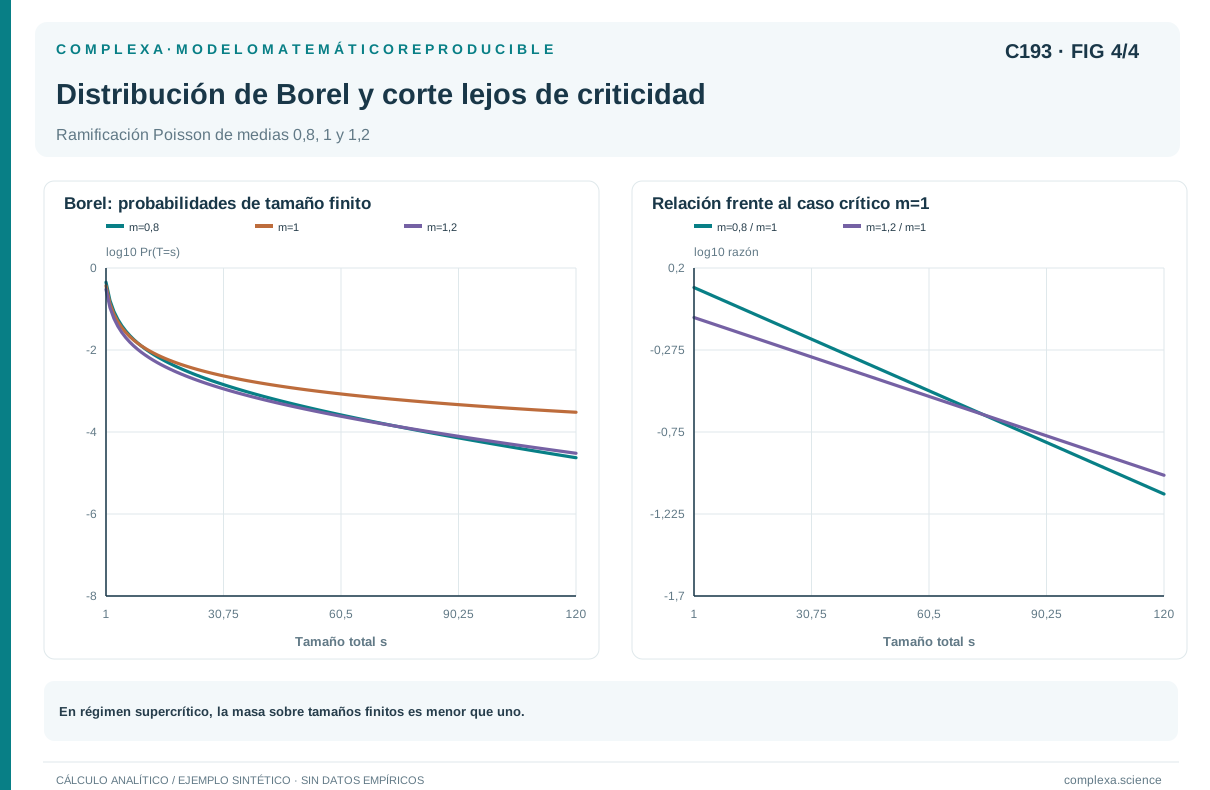
Con descendencia Poisson de media , la distribución del tamaño total finito tiene la forma de Borel
En el régimen subcrítico o crítico, estas probabilidades suman uno. En el supercrítico suman la probabilidad de extinción y queda masa en un total infinito dentro del modelo ideal. Omitir esa distinción convertiría una distribución defectiva sobre tamaños finitos en una distribución normalizada incorrectamente.
Una identidad general de Dwass (1969) relaciona la probabilidad del total con la suma de variables de descendencia
Para variables Poisson independientes, su suma es Poisson de media y la fórmula de Borel se obtiene directamente. La identidad traduce el tamaño de un árbol de descendencia en el recorrido de una suma aleatoria, sin necesidad de simular cada árbol por separado.
Aplicando la aproximación de Stirling al factorial se obtiene
En criticidad, el factor exponencial vale uno y permanece la potencia menos tres medios. Fuera de ese punto, el factor entre corchetes es menor que uno y aparece un corte exponencial en la distribución de tamaños finitos. El prefactor de potencia puede seguir siendo visible durante un rango limitado.
Si la media es uno menos una pequeña cantidad positiva, el logaritmo del factor de corte comienza con menos la mitad del cuadrado de esa diferencia. La escala característica de tamaños crece así aproximadamente como el inverso de su cuadrado. Un proceso cercano al punto crítico puede parecer compatible con una potencia durante un tramo amplio sin estar exactamente en él.
La aproximación supone descendencia Poisson y tamaños grandes. Otros modelos con varianza finita comparten algunos exponentes críticos bajo condiciones apropiadas, pero no todas las constantes ni correcciones. Distribuciones de descendencia con colas muy amplias, dependencias o restricciones espaciales pueden cambiar el comportamiento.
La forma completa admite una comparación más exigente que ajustar únicamente una pendiente. Podemos evaluar probabilidades de episodios pequeños, localización del corte y cambios de momentos cuando se modifica la media. Si el mecanismo es correcto, esas cantidades deben variar de manera coherente.
En criticidad, la distribución Poisson permite tamaños uno, dos y tres con probabilidades aproximadas 0,3679, 0,1353 y 0,0747. El modelo binario crítico asignaba probabilidad un medio al tamaño uno y prohibía todos los tamaños pares. Ambos tienen media y varianza reproductivas iguales a uno y comparten el exponente asintótico, pero difieren en las frecuencias pequeñas y en el soporte del total.
Esta comparación sugiere evaluar la región de tamaños pequeños y las restricciones combinatorias además de la cola. Los eventos frecuentes pueden contener información sobre el mecanismo que una pendiente extrema conserva de forma muy incompleta. Si el modelo prohíbe tamaños observados de manera fiable, la discrepancia merece una explicación antes de interpretar como confirmación una coincidencia aproximada del exponente.
193.7. Qué significa observar una avalancha
Una avalancha se define mediante una regla para agrupar actividad. En registros temporales puede delimitarse como una secuencia de intervalos activos separada por intervalos vacíos. El tamaño puede contar eventos, participantes distintos o actividad integrada. La duración puede medirse en intervalos o en tiempo físico. Estas decisiones forman parte del objeto observado.
Un mismo conjunto de eventos puede producir distribuciones distintas al cambiar el ancho de los intervalos. Intervalos muy pequeños fragmentan secuencias relacionadas; intervalos grandes fusionan episodios independientes. Si hay actividad externa continua, puede desaparecer la separación natural entre una cascada y la siguiente.
Beggs y Plenz (2003) estudiaron avalanchas neuronales en circuitos neocorticales y describieron regularidades de sus tamaños y propagación bajo condiciones experimentales específicas. Ese trabajo impulsó una extensa investigación sobre organización colectiva. Que un registro concreto muestre regularidades no implica que toda actividad cerebral siga un proceso crítico de ramificación.
Touboul y Destexhe (2010) mostraron que ciertos procedimientos de observación y análisis de dinámicas estocásticas pueden producir distribuciones que parecen leyes de potencia sin requerir la interpretación de criticidad autoorganizada. La comparación obliga a evaluar mecanismos alternativos y la sensibilidad al procesamiento, además de una pendiente gráfica.
El muestreo parcial puede perder eventos intermedios y dividir una cascada real en varias observadas. También puede reducir artificialmente el número de descendientes asignados a cada evento. Una reproducción aparente estimada por debajo de uno puede reflejar cobertura incompleta, además de un proceso subcrítico.
La asignación de descendientes plantea otra dificultad, porque en un registro de actividad no siempre sabemos qué evento causó cuál. Contar toda actividad del intervalo siguiente como descendencia del actual puede incluir entradas comunes, actividad espontánea y efectos de otras regiones. El cociente entre actividad consecutiva es un estadístico temporal que solo informa indirectamente sobre el árbol causal.
Una auditoría debe registrar definición de evento, umbral de detección, tamaño de intervalo, cobertura y tratamiento de periodos silenciosos. Después puede comparar modelos completos de generación y observación. Solo así se distingue una propiedad de la dinámica de otra introducida al segmentar el registro.
193.8. Estimar reproducción sin ignorar la selección
Si observamos directamente la descendencia de muchos individuos bajo condiciones homogéneas, su promedio estima la media reproductiva. Si solo tenemos tamaños de generaciones, una estimación puede ponderar cada transición por el número de individuos expuestos. Promediar sin ponderación los cocientes entre generaciones da el mismo peso a grupos de tamaños muy diferentes y requiere tratar los ceros.
La selección de episodios supervivientes cambia la muestra. Condicionar a que la actividad siga presente durante muchas generaciones favorece trayectorias que tuvieron descendencias altas al comienzo. Estimar una reproducción típica solo con ellas puede sobrestimar la del conjunto de procesos iniciados.
También hay un efecto contable al observar únicamente árboles completos. Un árbol con tamaño total contiene exactamente relaciones de descendencia. Si sumamos todos los descendientes y dividimos por todos los individuos del árbol, obtenemos uno menos el inverso del tamaño, siempre menor que uno.
En un conjunto de episodios completos, el cociente agrupado es uno menos el número de episodios dividido por la suma de sus tamaños. Ese valor inferior a uno lo imponen la forma de selección y el cierre de cada árbol; afirmar que el mecanismo generador es subcrítico requiere otra evidencia.
Un proceso supercrítico observado solo cuando se extingue tiene una distribución de descendencia condicionada diferente. En el ejemplo con probabilidades dos quintos de cero y tres quintos de dos, la extinción tiene probabilidad dos tercios. Condicionar a extinción transforma las probabilidades en tres quintos de cero y dos quintos de dos; la media condicionada es ocho décimas.
Por tanto, los episodios finitos de un proceso que puede sobrevivir indefinidamente pueden parecer generados por una reproducción subcrítica. Para inferir el mecanismo original hace falta conocer qué episodios quedaron fuera, cómo se censuró el registro y qué significa que una actividad no haya terminado dentro de la ventana.
Los intervalos de incertidumbre deben incorporar la dependencia y la selección. Tratar todas las generaciones como observaciones independientes ignora que forman parte del mismo árbol. El remuestreo por episodios puede ser adecuado en algunos diseños, mientras que la dependencia entre episodios o un impulso externo común requiere otro nivel de modelación.
La estimación mejora cuando se comparan simultáneamente reproducción, extinción, tamaños y duraciones. Un parámetro ajustado a uno de esos resúmenes debe producir predicciones para los restantes. Las discrepancias ayudan a identificar qué supuesto de ramificación deja de describir los datos.
La transformación por extinción puede escribirse para cualquier distribución con probabilidad de extinción positiva. La probabilidad original de producir cierto número de descendientes se multiplica por la probabilidad de que se extingan todas esas ramas y se divide por la probabilidad de extinción de la fuente. Para un número k de descendientes, el factor resultante es la probabilidad de extinción elevada a k menos uno. La ecuación de punto fijo garantiza que las nuevas probabilidades sumen uno.
La media condicionada es la derivada de la función generadora evaluada en la probabilidad de extinción. En el ejemplo binario resulta ocho décimas, como calculamos directamente. Si la extinción tuviera probabilidad cero, este condicionamiento no estaría definido. Si ya fuera segura, la transformación conservaría la distribución original.
Esta identidad distingue el condicionamiento a extinción eventual del condicionamiento a supervivencia hasta un tiempo finito. Un registro que termina antes de que algunos episodios concluyan contiene censura; eliminar esos episodios como si no existieran cambia la población estudiada. Conviene conservar su información parcial y usar un modelo que incorpore la ventana de observación.
193.9. Varias clases, recursos y encuentros entre ramas
La descendencia puede depender del tipo de evento. Una activación en una región puede producir eventos en otra con probabilidades distintas de las internas. En un proceso de varios tipos, una matriz contiene el número esperado de descendientes de cada tipo producidos por una fuente de cada tipo. Bajo condiciones de irreducibilidad apropiadas, el criterio de crecimiento se expresa mediante su radio espectral.
Las probabilidades de extinción se convierten en un sistema de funciones generadoras, una por tipo. Igual que la media escalar no determinaba toda la supervivencia, la media matricial no determina sus soluciones, que dependen también de las distribuciones conjuntas de descendientes entre tipos.
Si el ambiente cambia entre generaciones, todos los individuos pueden experimentar simultáneamente condiciones favorables o desfavorables. Esa variación compartida rompe la descripción de descendencia idéntica e independiente a través del tiempo. Una media global de reproducción puede ocultar el efecto de secuencias prolongadas de condiciones adversas.
Los recursos finitos introducen retroalimentación. A medida que crece la actividad, disminuyen los destinos disponibles o aumenta la competencia. La descendencia deja de tener la misma distribución para todos los tamaños. Un modelo de ramificación puede describir la fase inicial y sobrestimar la expansión posterior.
Los encuentros entre ramas producen otra desviación. Dos individuos pueden intentar activar el mismo destino; contar ambos como descendientes nuevos duplica una unidad. En una red con ciclos cortos, esas colisiones aparecen antes. También puede haber activación cooperativa, en la que dos exposiciones juntas generan un evento que ninguna habría producido por separado.
La reinfección o reactivación permite visitar nodos anteriores, de modo que el tamaño contado como número de eventos puede superar el número de participantes distintos. Un registro que mezcla ambas definiciones puede presentar una cola amplia por repetición temporal, aunque el conjunto de nodos involucrados sea pequeño.
Estas extensiones mantienen la ramificación como referencia y permiten localizar qué regularidad describe y dónde necesita modificarse. Una explicación útil conserva la fase o escala donde las ramas actúan aproximadamente de manera independiente y compara después el efecto de las restricciones que aparecen al crecer.
193.10. Evaluar una explicación de criticidad
Una explicación basada en ramificación crítica debe especificar unidades, generaciones y distribución de descendencia. Después debe justificar por qué las ramas pueden tratarse como independientes y por qué la media se aproxima a uno. Si se propone autoorganización, hace falta además un mecanismo que lleve el sistema hacia ese régimen, algo que un parámetro elegido durante el ajuste no explica.
Las predicciones deben incluir más que un exponente de tamaño. Probabilidad de extinción, duración, corte por tamaño finito y respuesta a cambios de condiciones son contrastes adicionales. Las relaciones entre esos resultados dependen de la clase de modelo y pueden fallar aunque una recta logarítmica parezca convincente.
Los ejemplos del capítulo permiten interpretar esas diferencias. Una media supercrítica puede coexistir con muchas extinciones; una media crítica puede producir extinción segura y esperanza total divergente; una observación condicionada a episodios completos puede parecer subcrítica. Ninguna de estas propiedades se detecta mirando solo la actividad media.
La evidencia se fortalece cuando un mismo mecanismo explica varios resúmenes y conserva sus predicciones al modelar el procedimiento de observación. Si modelos alternativos producen resultados semejantes, deben mantenerse como posibilidades. La criticidad es una hipótesis sobre organización y dinámica, con consecuencias concretas que permiten examinarla.
Referencias
- Beggs, J. M., y Plenz, D. (2003). Neuronal avalanches in neocortical circuits. The Journal of Neuroscience, 23(35), 11167–11177. DOI.
- Dwass, M. (1969). The total progeny in a branching process and a related random walk. Journal of Applied Probability, 6(3), 682–686. DOI.
- Touboul, J., y Destexhe, A. (2010). Can power-law scaling and neuronal avalanches arise from stochastic dynamics? PLOS ONE, 5(2), e8982. DOI.