Año 2 · Módulo 16: Física estadística: microestados, equilibrio y transiciones · Manejo formal guiado
156.1. Una población tiene un promedio, pero no vive dentro de él
Imaginemos una población de células en la que algunas se dividen, otras mueren y otras compiten por un recurso limitado. Si conocemos el número inicial de células y las tasas de esos eventos, podemos construir un modelo de las trayectorias de la población. También podemos preguntar por el tamaño promedio que se observaría al repetir el proceso muchas veces. La segunda descripción es más breve, pero el promedio de una interacción no suele equivaler a la interacción evaluada en los promedios. Cuando dos células deben encontrarse para competir, la frecuencia de esos encuentros depende de cuántas parejas están disponibles y de cómo se distribuyen. El mismo número medio puede acompañarse de estructuras de dependencia completamente distintas.
El modelo de Ising del capítulo 155 es un ejemplo. Su magnetización media y su energía dependen de los espines, pero el promedio de los productos de espines vecinos no se obtiene necesariamente multiplicando sus promedios. La aproximación de campo medio sustituye esos productos por cantidades más sencillas, una decisión que puede alterar incluso la existencia de una transición de fase. El mismo problema reaparece en epidemias, reacciones químicas, redes neuronales y poblaciones ecológicas; cambia la interpretación de las variables, pero la estructura matemática de la dificultad es muy parecida.
Llamaremos momento al valor esperado de una potencia o producto de variables aleatorias. Para una variable , el primer momento es y el segundo momento bruto es . La varianza es . Para dos variables, la covarianza indica qué parte del producto medio no se explica por los promedios por separado. Una descripción solo con medias prescinde de todas esas cantidades, salvo que puedan recuperarse por otras vías.
Un cierre de momentos es una regla que expresa momentos de orden superior mediante otros de orden inferior. Puede ser exacto para una clase concreta de procesos o aproximado a partir de hipótesis sobre la distribución. Por ejemplo, el cierre gaussiano usa la estructura de momentos de una distribución normal; un cierre de pares en una red supone alguna forma de independencia condicional entre los extremos de una tripleta. Los dos procedimientos tienen limitaciones diferentes; llamar a ambos simplemente campo medio oculta las decisiones estadísticas que cada uno requiere.
Estas aproximaciones son útiles porque una población con miles de individuos puede generar un espacio de estados enorme, mientras que unas pocas ecuaciones para medias y varianzas permiten estudiar tendencias, respuestas paramétricas y, en ocasiones, la posibilidad de equilibrio. El peligro es que una ecuación cerrada puede ser matemáticamente impecable y representar mal extinciones, heterogeneidad espacial o fluctuaciones críticas. El objetivo de este capítulo es aprender a derivar las ecuaciones exactas antes de decidir qué aproximar.
156.2. Del proceso de saltos a una ecuación exacta para el promedio
Consideremos un proceso de Markov en tiempo continuo cuyo estado es un vector de cantidades enteras, como números de partículas o individuos de distintas clases. Cada evento posible cambia el estado mediante un vector y ocurre con una intensidad que depende del estado actual. En un intervalo pequeño , la probabilidad de que ocurra el evento es aproximadamente , siempre que el proceso tenga las condiciones regulares necesarias. Las intensidades deben ser no negativas y las transiciones deben respetar el dominio físico de los estados.
La acción del generador sobre una función es
Bajo las condiciones de integrabilidad apropiadas, la evolución esperada satisface la identidad . Si elegimos como observable la propia variable de estado, el incremento por evento es simplemente , por lo que obtenemos
Esta igualdad es exacta, pero todavía no es necesariamente una ecuación cerrada. A la derecha aparecen esperanzas de intensidades que pueden depender de productos o potencias de las variables. Sustituir inmediatamente por sería una aproximación adicional. La linealidad de la esperanza garantiza , pero no garantiza ni permite, en general, introducir la esperanza dentro de una función no lineal.
Estudiemos primero un caso en que el promedio sí se cierra exactamente. Supongamos llegadas de individuos a tasa constante independiente de la población presente y muertes individuales a tasa , de manera que el total de muertes ocurre a intensidad . Los dos eventos son con intensidad y con intensidad . La identidad del generador conduce a
No hicimos ninguna hipótesis de población grande; si el proceso está bien definido, la ecuación es exacta incluso para una población media pequeña. La varianza también satisface , sin depender de un tercer momento. En equilibrio estacionario, , una propiedad compatible con la distribución de Poisson de ese proceso. Esa coincidencia entre media y varianza procede del modelo de inmigración y muerte; otros modelos de población no tienen por qué cumplirla.
Que el promedio obedezca una ecuación diferencial determinista no implica que las trayectorias individuales lo sean; aquí cada realización fluctúa y puede alcanzar cero temporalmente. La ecuación de la media puede cerrarse porque las tasas son afines, pero los eventos siguen siendo estocásticos y su incertidumbre tiene una evolución propia. Para interpretar datos individuales necesitamos algo más que , aunque el promedio esté calculado exactamente.
156.3. La no linealidad abre una jerarquía de momentos
Añadamos competencia entre parejas de individuos. Si cada pareja no ordenada produce una eliminación con intensidad proporcional a , donde es una escala de tamaño, el número de parejas disponibles es . Conservemos las llegadas con intensidad y las muertes individuales con intensidad . La competencia incorpora el evento con intensidad . Esta construcción mantiene las tasas no negativas para estados enteros no negativos y evita contar una pareja dos veces.
La evolución exacta de la media es
La primera igualdad muestra el segundo momento bruto y la segunda, explícitamente, la varianza. Si dos poblaciones comparten pero una tiene fluctuaciones mayores, en este modelo esa población tendrá un ritmo esperado de competencia mayor, porque su número esperado de parejas también es mayor. El número medio de individuos no determina cuánto pesa la parte convexa de la tasa cuando repetimos la experiencia.
Un cierre elemental consiste en descartar y, para poblaciones grandes, también la corrección lineal . Si definimos una densidad , queda
Esa ecuación es razonable en un límite de sistema grande bajo hipótesis sobre la escala de las fluctuaciones. No es exacta a tamaño finito, porque sustituye un número aleatorio de parejas por el cuadrado de una densidad promedio. El término omitido puede ser pequeño frente a cuando es grande y la varianza crece solo proporcionalmente a ; puede dominar la corrección cuando las poblaciones son escasas o la distribución tiene colas amplias.
Intentemos mejorar el modelo calculando la varianza. Para un proceso de saltos escalar con incrementos , la identidad exacta es
Los términos con expresan la variabilidad introducida por eventos individuales; los términos de covarianza describen cómo las intensidades dependen del estado. En la competencia por parejas surge , que depende del tercer momento . Si escribimos una ecuación para ese momento, generalmente aparecerá uno de cuarto orden. La sucesión continúa y forma una jerarquía de momentos, que no se resuelve solo calculando más derivadas.
Podemos cortar la jerarquía con una hipótesis de cierre explícita. Una aproximación gaussiana, por ejemplo, reemplazaría el tercer momento bruto por . Esa expresión se deduce de que el tercer momento central de una normal es cero. Usarla no implica que tenga una distribución normal; una variable de conteo solo toma enteros no negativos, mientras que una normal puede asignar probabilidad a valores negativos. La aproximación deberá contrastarse con simulaciones o, cuando sea posible, con la ecuación maestra.
156.4. En una red, la interacción depende de quién está junto a quién
Consideremos ahora una dinámica epidémica idealizada sobre una red fija de contactos. Cada nodo tiene un estado binario , que vale cero si el nodo es susceptible y uno si está infectado. Un infectado se recupera a tasa y un susceptible se infecta desde cada vecino infectado a tasa por enlace. La matriz de adyacencia vale uno si existe enlace y cero si no lo hay. Por definición, la intensidad de infección del nodo es , una cantidad que se anula cuando el propio nodo ya está infectado.
Aplicando el generador al estado del nodo obtenemos
La ecuación es exacta para el proceso SIS especificado. Las probabilidades de infección individuales no bastan para conocer su evolución porque la transmisión requiere un enlace susceptible-infectado. La esperanza es precisamente la probabilidad conjunta de esa pareja. Si suponemos independencia de los extremos, reemplazamos por . El resultado es un cierre de campo medio de nodos, frecuente por su economía computacional.
¿Qué se pierde con esa sustitución? Imaginemos dos nodos con . Si son independientes, y la probabilidad de encontrar al primero susceptible y al segundo infectado es . Si ambos estados están perfectamente correlacionados, la probabilidad conjunta de dos infectados puede ser y la configuración susceptible-infectado no aparece. Con anticorrelación perfecta, la probabilidad de dos infectados es cero y la configuración que permite contagio tiene probabilidad . Las mismas prevalencias individuales producen así flujos de transmisión diferentes, de modo que la covarianza de los extremos es aquí una variable dinámica relevante.
En una red regular de grado , si suponemos que todos los nodos comparten una prevalencia y que las parejas son independientes, se obtiene . El equilibrio positivo aparece formalmente cuando . La ecuación puede servir como una aproximación temprana de crecimiento o para orientar parámetros, pero su umbral no describe exactamente el proceso finito, que tiene un estado absorbente sin infectados. En redes heterogéneas, los grados, las comunidades y las concentraciones de enlaces alteran la dinámica; usar un único puede borrar la estructura más importante.
Podemos mejorar el cierre incorporando probabilidades de pares. Al derivar una ecuación para , aparecen términos que involucran tripletas como . Una aproximación habitual de cadena abierta escribe la probabilidad de una tripleta mediante las probabilidades de sus dos pares, condicionadas al estado del nodo central. En forma esquemática, , siempre que . Esta fórmula equivale a suponer independencia condicional de los extremos dado el estado del nodo central. Si existe el triángulo de contactos o una causa común correlaciona los extremos, esa suposición requiere especial cautela.
156.5. El Ising dinámico muestra exactamente dónde entra el campo medio
El modelo de Ising puede equiparse con una dinámica de inversiones aleatorias que preserve la distribución de Boltzmann en equilibrio. Una regla conocida es la dinámica de Glauber. Para un sitio , con espín , vecinos y una escala de frecuencia , tomemos la tasa de inversión
La tasa es no negativa y el cociente entre tasas de transiciones inversas satisface la relación de balance detallado correspondiente al Hamiltoniano. En una inversión, el incremento de es . Por ello su promedio satisface exactamente
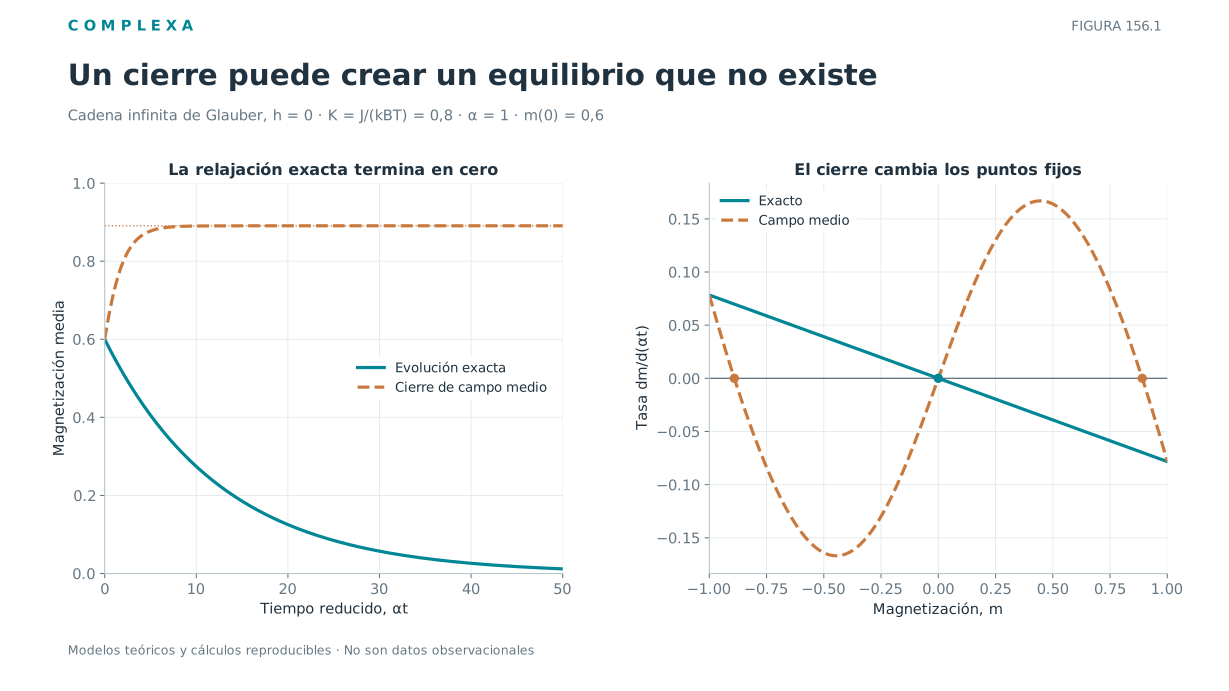
La operación difícil es el promedio de la tangente hiperbólica. Reemplazarlo por la tangente hiperbólica del campo medio da, para un sistema espacialmente uniforme de coordinación , . Hemos recuperado en el equilibrio la ecuación aproximada del capítulo anterior, pero ahora con una regla temporal explícita. El paso decisivo, ahora visible, es tratar como si fuera , cuando en general no lo es.
En una cadena unidimensional sin campo, cada sitio tiene dos vecinos, y , que solo pueden sumar . Para esas tres posibilidades se verifica la identidad exacta
Por tanto, aun sin suponer independencia, las ecuaciones para los primeros momentos se cierran linealmente y quedan
En un estado espacialmente homogéneo, esto da . Para toda temperatura positiva, , de manera que una perturbación pequeña decae. El cierre de campo medio , en cambio, predice un cambio de estabilidad cuando , es decir, una transición espuria. El resultado exacto de la cadena coincide con la ausencia de orden espontáneo encontrada mediante la matriz de transferencia.
En este contraste, el modelo microscópico y la regla de inversión son los mismos, pero los dos tratamientos del promedio dan predicciones cualitativamente distintas. El cierre exacto funciona en esta geometría y a campo nulo gracias a una identidad especial de las variables binarias. No debe extrapolarse sin demostración a redes con más vecinos o a campos generales, donde la tangente hiperbólica depende de más combinaciones de espines y la jerarquía puede reabrirse.
156.6. Supuestos de los cierres gaussianos, de Poisson y de pares
Una familia de cierres intenta describir la distribución de los conteos con una forma paramétrica. Si suponemos que los momentos superiores se comportan como los de una distribución normal, todos los cumulantes centrales de orden mayor que dos son cero. Para una variable con media y varianza , esto conduce a y . En sistemas que permanecen cerca de un estado macroscópico estable y presentan fluctuaciones moderadas, estas expresiones pueden ser útiles. Cerca de un umbral de extinción, o ante distribuciones muy sesgadas o multimodales, la hipótesis puede fallar de manera evidente.
La familia de cierres de Poisson usa una distribución característica de eventos de conteo independientes. Una variable de Poisson tiene y momentos factoriales , . Esas identidades simplifican las tasas de reacciones entre parejas o tríos. Si un mecanismo de regulación genera, en cambio, distribuciones subdispersas, con varianza inferior a la media, o episodios explosivos con varianza mayor, el cierre de Poisson impondrá una relación inexistente. Debe examinarse qué momentos se quieren aproximar y si las ecuaciones cerradas son compatibles con las relaciones supuestas.
Otros cierres adoptan distribuciones lognormales o gamma para mantener la positividad de variables continuas, mientras que los sistemas de conteo pueden requerir aproximaciones discretas o restricciones adicionales. Garantizar la positividad tampoco resuelve todo el problema, porque una distribución aproximada con soporte adecuado puede reproducir mal la probabilidad de cero o la cola superior. Si el observable de interés es una tasa de extinción o la probabilidad de superar un umbral, pequeñas discrepancias en esas regiones pueden pesar más que una excelente reproducción de la media.
Los cierres de pares son de otra naturaleza. Conservan ciertas dependencias locales y aproximan distribuciones conjuntas de mayor orden sin requerir necesariamente una distribución paramétrica global. En una red, conocer las probabilidades de los estados de los extremos de un enlace permite describir mejor el flujo de eventos que dependen del contacto. Para escribir una ecuación cerrada de pares necesitamos tratar las tripletas; la fórmula condicional mencionada antes es una opción. Su validez depende de la topología de la red, el mecanismo de interacción y la formación de agrupamientos. En redes trianguladas, las dependencias entre extremos pueden persistir aun condicionando al estado del nodo central.
Hay además una cuestión de realizabilidad. Si es un conteo, una ecuación de varianza no debería producir valores negativos. Si es una probabilidad, debe permanecer entre cero y uno. Las aproximaciones algebraicas no conservan automáticamente estas restricciones. Una integración numérica impecable de una ecuación cerrada puede generar una varianza negativa si el cierre es incompatible con la evolución. Antes de interpretar una bifurcación o un equilibrio conviene verificar los dominios permitidos, las relaciones entre momentos y las cantidades conservadas por la dinámica original.
Ningún cierre es el mejor en abstracto; el criterio depende del régimen y del observable que interesa. Un cierre simple puede estimar bien una media lejos de una transición y fallar en la correlación espacial. Uno más elaborado puede mejorar los primeros dos momentos a costa de inestabilidad o de parámetros difíciles de identificar. Elegir un cierre para obtener ecuaciones manejables es, a la vez, formular una hipótesis científica que requiere contraste.
La comparación de Schnoerr, Sanguinetti y Grima (2015) mostró que el dominio de parámetros con resultados físicamente admisibles depende del sistema y del cierre empleado. En varios ejemplos, los cierres normal y de Poisson superaron al lognormal, aunque ninguno mantuvo validez general. Antes de interpretar sus predicciones deben comprobarse la estabilidad, la positividad y la consistencia con simulaciones estocásticas de referencia.
156.7. Por qué el campo medio funciona a veces en sistemas grandes
La aproximación determinista tiene una justificación sólida para algunas familias de procesos cuando el tamaño del sistema crece. Supongamos que el número de individuos escala como y que las intensidades de eventos están construidas para producir cambios de densidad de orden por evento. Bajo condiciones regulares y lejos de regiones singulares, la densidad estocástica puede concentrarse alrededor de una trayectoria que obedece una ecuación determinista. Las fluctuaciones típicas relativas suelen decrecer como , aunque la escala precisa depende del proceso.
La expansión en tamaño de sistema de van Kampen escribe esquemáticamente . La función describe la evolución macroscópica y las fluctuaciones alrededor de ella. En el primer orden se recuperan ecuaciones de velocidad deterministas; en el siguiente puede aparecer una aproximación lineal del ruido para la covarianza. La idea no exige que cada trayectoria fluctúe poco en número absoluto; la desviación típica puede crecer como mientras su proporción respecto del total decrece.
Las hipótesis pueden fallar. Cerca de un punto crítico, la longitud de correlación puede aumentar y los eventos dejar de ser suficientemente independientes para el escalamiento habitual. En sistemas con varios atractores, pueden producirse transiciones raras entre regiones metastables que una ecuación determinista no anticipa. Si el número de individuos de una subpoblación se aproxima a cero, las fluctuaciones relativas dejan de ser pequeñas aun cuando otras poblaciones sean enormes. Un resultado asintótico válido sobre intervalos temporales finitos tampoco garantiza una descripción correcta para tiempos arbitrariamente largos.
Un proceso de nacimiento y muerte con extinción ilustra esta última limitación. Consideremos nacimientos de un individuo a tasa , muertes espontáneas a tasa y muertes por competencia a tasa , con y . La ecuación exacta de la media es
Al tomar el límite macroscópico obtenemos la aproximación , con equilibrio positivo . Sin embargo, el proceso de conteo finito tiene un estado absorbente en cero, porque, una vez extinguida la población, los nacimientos a tasa proporcional a no pueden reiniciarla. Bajo las condiciones habituales del modelo finito, la extinción acaba ocurriendo con probabilidad uno en un horizonte suficientemente largo, aunque un estado cuasiestacionario pueda persistir durante mucho tiempo si es grande.
Por eso los límites de tamaño infinito y tiempo infinito pueden no conmutar. Mantener primero una población grande y observarla durante un intervalo moderado revela el equilibrio positivo determinista; dejar transcurrir un tiempo ilimitado en la población finita conduce a la absorción. Quien decida usar campo medio debe declarar cuál de esas preguntas se está haciendo. Confundir una distribución cuasiestacionaria con un equilibrio estacionario genuino cambia el significado de las predicciones sobre persistencia.
156.8. Validar un cierre sin confundir ajuste con mecanismo
Una comprobación rigurosa comienza por especificar el proceso microscópico, con sus estados, transiciones, intensidades y restricciones. Después se deducen las ecuaciones exactas de los momentos mediante el generador, antes de introducir cualquier aproximación. Así se identifica con precisión qué términos modifica una regla de cierre. Si aparecen covarianzas, conviene escribirlas explícitamente para que no queden escondidas dentro de un producto de promedios.
El paso siguiente es elegir los observables. Puede interesar la trayectoria media, el máximo esperado, la varianza, la probabilidad de extinción, un tiempo de primer paso o una correlación entre vecinos. Que un cierre reproduzca bien la primera de esas cantidades no implica que sea mejor para las demás. Un modelo diseñado para estimar prevalencias medias puede fracasar al inferir probabilidades de brotes raros. En reacciones químicas con números pequeños, las colas de la distribución pueden controlar eventos que el promedio casi no percibe.
La simulación estocástica exacta de Gillespie da una referencia cuando las intensidades permiten implementarla y el coste es aceptable. Se simulan eventos con sus tiempos de espera y sus probabilidades condicionadas al estado. Para validar el cierre se comparan los momentos estimados a partir de muchas trayectorias con las soluciones de las ecuaciones aproximadas. Debe distinguirse el error de Monte Carlo del sesgo sistemático del cierre; aumentar el número de simulaciones reduce el primero, pero no corrige el segundo.
En sistemas pequeños podemos mejorar la referencia resolviendo directamente la ecuación maestra, que describe la evolución de la probabilidad de cada estado y, con ella, la de todos los momentos. Aunque el número de estados suele crecer rápidamente, resolverla puede ser viable en un sistema de dos nodos o de unos pocos reactivos. Una coincidencia exacta sobre un modelo reducido es una prueba fuerte de la derivación y de la implementación; no garantiza que el cierre conserve su precisión en sistemas mayores, pero permite detectar errores algebraicos que una comparación cualitativa pasaría por alto.
La validación debería examinar también propiedades estructurales. Si existe una ley de conservación, la aproximación debe respetarla o explicar por qué se rompe. Una tasa no negativa no debería convertirse en una probabilidad negativa tras integrar las ecuaciones. La sensibilidad al tamaño del sistema y a las condiciones iniciales merece atención, porque muchos cierres se diseñan alrededor de una distribución aproximadamente unimodal; si cambia la forma de la distribución, un buen ajuste inicial puede deteriorarse en etapas posteriores.
Cuando un cierre reproduce los datos, todavía queda una pregunta de identificación. Varias combinaciones de intensidades y dependencias microscópicas pueden generar la misma curva media, de modo que un buen ajuste es compatible con interacciones distintas de las postuladas. Para distinguir mecanismos necesitamos observables adicionales, datos longitudinales o perturbaciones. El problema es más serio al trasladar aproximaciones de poblaciones físicas a variables clínicas o sociales, donde los estados y contactos pueden observarse solo en parte.
156.9. Caso resuelto del error de independencia en una red de dos nodos
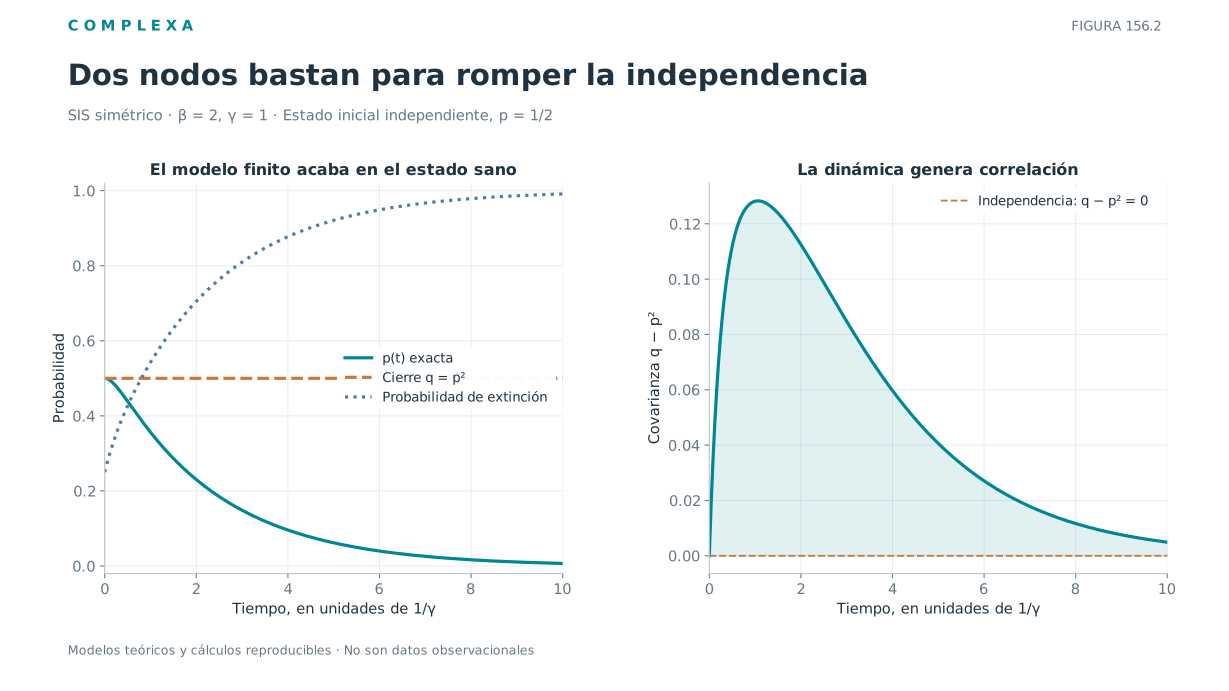
Examinemos una red de exactamente dos nodos conectados por un único enlace. Cada uno puede estar infectado o susceptible, por lo que hay cuatro estados posibles (, , y ). Adoptaremos el proceso SIS de la sección 156.4, con infección por enlace a tasa y recuperación por nodo a tasa . Supongamos condiciones iniciales simétricas, de manera que ambos nodos tengan la misma probabilidad marginal de infección . Definamos también .
La probabilidad de que el nodo uno esté susceptible mientras el otro está infectado es . Si ocurre una infección desde esa configuración, aumentan tanto la prevalencia marginal del nodo uno como la probabilidad de dos infectados. Desde puede recuperarse cualquiera de los dos, lo que disminuye . La ecuación maestra conduce al sistema exacto
La simetría permite cerrar el sistema de forma exacta con estas dos variables; no hay que aproximar ninguna tripleta, porque la red solo tiene dos nodos. El cierre de independencia, en cambio, toma y reduce la descripción a .
Tomemos y , en unidades inversas de tiempo, con dos estados iniciales independientes e idénticos de probabilidad . Por independencia inicial, . Sustituyendo en las ecuaciones exactas, obtenemos , mientras que . Por tanto, la segunda derivada de en el instante inicial es
Aunque la prevalencia comienza con derivada cero, se curva de inmediato hacia abajo; para tiempos pequeños, . La ecuación de campo medio, en cambio, predice ; con , la solución permanece fija en para siempre. La diferencia, que no se debe a ningún error numérico, procede de mantener el supuesto de independencia una vez iniciada la dinámica.
En el proceso finito, por otra parte, el estado es absorbente. Desde cualquier configuración con infectados hay una probabilidad positiva de que se produzcan recuperaciones antes de nuevas infecciones, de modo que la cadena acaba extinguiéndose con probabilidad uno. En consecuencia, cuando . El equilibrio positivo de la ecuación aproximada es, en este caso, un artefacto de la descripción continua finita. El campo medio puede ser útil para poblaciones grandes en ciertos intervalos; este ejemplo identifica con precisión una pregunta que el campo medio no puede responder correctamente aquí.
Un cierre puede ser exacto en el instante inicial y fallar inmediatamente porque la dinámica genera correlaciones. Verificar únicamente las condiciones iniciales, o ajustar la primera derivada de un promedio, no establece la validez de la aproximación. Para comprender el resultado hay que mirar qué estructura estadística produce la interacción a medida que transcurre el tiempo.
156.10. Reducir sin borrar las causas del comportamiento colectivo
Las ecuaciones de campo medio y los cierres de momentos son herramientas de reducción. El punto de partida correcto es un modelo definido al nivel de eventos o interacciones; la reducción debe indicar qué observables conserva, cuáles aproxima y bajo qué condiciones. Los procesos lineales de inmigración y muerte mostraron que una media puede cerrarse exactamente. La competencia entre parejas introdujo la varianza en esa misma ecuación. Las interacciones sobre redes exigieron conocer pares y la dinámica de pares pudo requerir tripletas. Esa progresión no es arbitraria, porque cada mecanismo involucra una estructura estadística distinta.
En el Ising dinámico, una cadena unidimensional sin campo tiene una identidad binaria que cierra la ecuación de magnetización de forma exacta. La aproximación más usual de campo medio, al cambiar el orden entre promedio y función no lineal, introduce una transición que la dinámica y el equilibrio exactos no tienen. En el sistema SIS de dos nodos, la independencia inicial no persiste; la ecuación aproximada produce un equilibrio positivo mientras el proceso exacto termina absorbido en cero. Estos ejemplos dan una base concreta para desconfiar de predicciones cualitativas obtenidas de un cierre no verificado.
Una reducción puede ser científicamente preferible a conservar toda la complejidad microscópica cuando facilita calcular un observable relevante con error controlado. El criterio es la relación entre la información retenida y el propósito, cualquiera que sea el número de ecuaciones eliminadas. Una aproximación de primer momento puede ser suficiente para predecir el valor medio de una variable bien mezclada en un régimen estable. Si la pregunta trata de extinción, propagación en una red o incertidumbre alrededor de una transición, probablemente se necesitarán correlaciones, distribuciones o simulaciones explícitas.
La dimensión temporal también limita la simplificación. Un agregado de estados microscópicos que obedecen una dinámica de Markov no tiene por qué seguir siendo markoviano. La variable macroscópica puede retener memoria de estados ocultos aunque el proceso completo no la tenga. En tal situación, forzar una ecuación autónoma para un promedio introduce una hipótesis adicional de separación de escalas o mezcla rápida. Si esa hipótesis no puede sostenerse, quizá sea más apropiado usar variables auxiliares, términos de memoria o una descripción estocástica reducida.
Los próximos capítulos desarrollarán transiciones de fase y parámetros de orden. Cerca de una transición pueden crecer precisamente las fluctuaciones y correlaciones que el campo medio suele omitir. Antes de interpretar una bifurcación de ecuaciones aproximadas como una propiedad universal del sistema real conviene verificar cómo cambian sus resultados con tamaño, conectividad y método de cierre. Un promedio puede describir bien a un colectivo en un régimen y volverse engañoso en otro.
Referencias
- van Kampen, N. G. (2007). Stochastic Processes in Physics and Chemistry (3.ª ed.). North-Holland/Elsevier. https://doi.org/10.1016/B978-0-444-52965-7.X5000-4
- Gardiner, C. W. (2004). Handbook of Stochastic Methods for Physics, Chemistry and the Natural Sciences (3.ª ed.). Springer.
- Gillespie, D. T. (1977). Exact stochastic simulation of coupled chemical reactions. The Journal of Physical Chemistry, 81(25), 2340–2361. https://doi.org/10.1021/j100540a008
- Glauber, R. J. (1963). Time-dependent statistics of the Ising model. Journal of Mathematical Physics, 4(2), 294–307. https://doi.org/10.1063/1.1703954
- Keeling, M. J. (1999). The effects of local spatial structure on epidemiological invasions. Proceedings of the Royal Society B, 266(1421), 859–867. https://doi.org/10.1098/rspb.1999.0716
- Singh, A., y Hespanha, J. P. (2011). Approximate moment dynamics for chemically reacting systems. IEEE Transactions on Automatic Control, 56(2), 414–418. https://doi.org/10.1109/TAC.2010.2088631
- Schnoerr, D., Sanguinetti, G., y Grima, R. (2017). Approximation and inference methods for stochastic biochemical kinetics—a tutorial review. Journal of Physics A: Mathematical and Theoretical, 50, 093001. https://doi.org/10.1088/1751-8121/aa54d9
- Schnoerr, D., Sanguinetti, G., y Grima, R. (2015). Comparison of different moment-closure approximations for stochastic chemical kinetics. The Journal of Chemical Physics, 143(18), 185101. https://doi.org/10.1063/1.4934990