Módulo 28. Juegos evolutivos y cooperación
271.1. El éxito de una variante depende de quién la rodea
Una variante puede aumentar cuando es rara y perder su ventaja cuando se vuelve común. Esa posibilidad aparece cuando su contribución reproductiva depende de los tipos con los que interactúa. La aptitud deja entonces de ser un número fijo asignado a cada variante y se convierte en una función de la composición poblacional.
Pensemos en dos maneras de competir por un recurso. Una implica escalar el conflicto; la otra evita enfrentamientos costosos. Escalar puede resultar ventajoso frente a individuos que ceden y costoso cuando muchos rivales también escalan, de modo que el éxito de una conducta depende de la frecuencia de las demás.
La teoría evolutiva de juegos da un lenguaje para estudiar esa dependencia. Define estrategias, interacciones, resultados y una regla que conecta resultados con reproducción o transmisión. No requiere que los organismos conozcan la teoría ni calculen conscientemente una respuesta óptima.
Maynard Smith y Price usaron ideas de teoría de juegos para analizar conflictos animales y la persistencia de estrategias bajo competencia [1]. El interés de ese enfoque está en estudiar consecuencias individuales de interacción sin asumir que un comportamiento se mantiene porque beneficia globalmente a la especie.
En este módulo, una estrategia será una regla que determina acciones en condiciones especificadas. Puede ser una acción fija, una respuesta a señales o una política condicionada por experiencias previas. La definición debe indicar qué información usa.
Una acción y una estrategia no son lo mismo. Cooperar en un encuentro es una acción. Cooperar únicamente después de recibir cooperación es una estrategia que puede producir acciones diferentes según la historia. La evolución de frecuencias de estrategias requiere distinguir esas reglas.
También debemos separar el resultado del encuentro y la aptitud. Un beneficio energético, un recurso obtenido o una puntuación experimental no equivale automáticamente a descendencia esperada. La transformación entre ambos forma parte del modelo.
Comenzaremos con juegos de dos estrategias y encuentros por parejas. Estos ejemplos permitirán calcular aptitudes dependientes de frecuencia, identificar tipos de interacción y reconocer qué cambia al modificar el emparejamiento.
La pregunta central será cómo modifica una estrategia, al cambiar su frecuencia, el ambiente de interacción que determina su propio éxito. Esa retroalimentación conecta evolución, cooperación y dinámica de poblaciones. Para formularla hay que seguir las consecuencias de los encuentros y los cambios que esos encuentros producen en las oportunidades de la generación siguiente.
271.2. Leer una matriz sin confundir a los participantes
Una matriz de pagos resume resultados de encuentros. Las filas corresponden a la estrategia del individuo focal y las columnas a la de su interlocutor. Cada entrada indica solo el resultado del focal, sin sumarle el del otro participante.
Consideremos estrategias A y B y una matriz general
Si A encuentra A, recibe a. Si A encuentra B, recibe b. Si B encuentra A, recibe c. Si B encuentra B, recibe d. En un juego simétrico, ambos participantes usan el mismo conjunto de estrategias y sus pagos se obtienen intercambiando papeles.
La simetría del juego no exige que la matriz sea simétrica. Los pagos b y c pueden diferir, porque en un encuentro entre A y B cada participante puede obtener un resultado distinto. Confundir esas dos nociones dejaría fuera muchas de las interacciones interesantes.
El pago puede ser una ganancia neta por encuentro y puede ser negativo si hay un costo respecto de una referencia. Sin embargo, una cantidad negativa no puede usarse directamente como número esperado de descendientes en una actualización reproductiva discreta.
Por eso conviene escribir una transformación de pago a aptitud. Una posibilidad es sumar un componente basal positivo y multiplicar el pago por una intensidad; otra es usar una función exponencial. Elegir una u otra puede modificar la dinámica.
También hay que definir cuántos encuentros ocurren. Una suma de pagos aumenta con el número de interacciones, mientras que un promedio no lo hace de la misma manera. Si algunos individuos tienen más contactos, ambas convenciones pueden dar resultados muy distintos.
Una matriz supone que los resultados pertinentes pueden resumirse por las estrategias de los dos participantes. Si importan recursos compartidos, historia, posiciones o terceros, hay que ampliar el estado o usar otro tipo de juego.
No debemos interpretar cada entrada como una constante universal, ya que puede depender del ambiente y de parámetros como el valor del recurso o el costo del conflicto.
Una buena lectura comienza por las unidades y los papeles. Antes de calcular equilibrios, debemos saber quién recibe cada pago, qué mide y cómo se conecta con el proceso poblacional. Un error en esa etapa puede dejar intacta la aritmética y cambiar por completo la interpretación.
271.3. De encuentros aleatorios a aptitud media
Supongamos una población grande en la que A tiene frecuencia x y los encuentros se forman al azar. La probabilidad de encontrar A es x y la de encontrar B es uno menos x. El pago esperado de cada estrategia es
La diferencia entre ambos pagos es una función lineal de x. Su signo indica qué estrategia recibe mayor pago esperado bajo esa composición. Si la transformación a aptitud es la misma y estrictamente creciente para ambas, conserva ese orden.
La media poblacional de pagos pondera cada estrategia por su frecuencia
Esta media puede cambiar cuando cambia x, aunque la matriz permanezca fija, porque la población modifica la distribución de encuentros que produce sus resultados. La dependencia de frecuencia surge de la mezcla, incluso si las reglas individuales no cambian.
Si cada individuo participa en pocos encuentros, sus resultados realizados pueden variar mucho alrededor de la media. Una dinámica determinista basada en pagos esperados aproxima ciertas condiciones, pero no describe todas las fluctuaciones.
También hay que examinar la independencia. Si los mismos individuos interactúan repetidamente o comparten condiciones locales, las probabilidades de encuentro pueden no coincidir con las frecuencias globales. El supuesto de mezcla aleatoria tendrá que revisarse.
Podemos comprobar los límites. Cuando x es cero, un A raro encuentra casi exclusivamente B y recibe aproximadamente b; cuando x es uno, un B raro encuentra casi exclusivamente A y recibe aproximadamente c. Esas comparaciones ayudan a estudiar la invasión.
Sin embargo, la selección no hace aparecer un tipo ausente. Preguntar si podría invadir supone que se introduce mediante mutación, migración o una perturbación experimental.
La media poblacional tampoco es necesariamente una función que la evolución maximiza. Si las interacciones generan conflictos de intereses, una estrategia puede aumentar su frecuencia mientras reduce el resultado promedio. El mecanismo favorece contribuciones relativas; no hay un objetivo colectivo impuesto desde fuera.
Esta separación entre éxito individual y promedio será necesaria para estudiar la cooperación. Antes de llegar a ese problema, conviene ver un ejemplo donde la propia frecuencia cambia el signo de la ventaja.
271.4. Un conflicto con ventaja de la estrategia rara
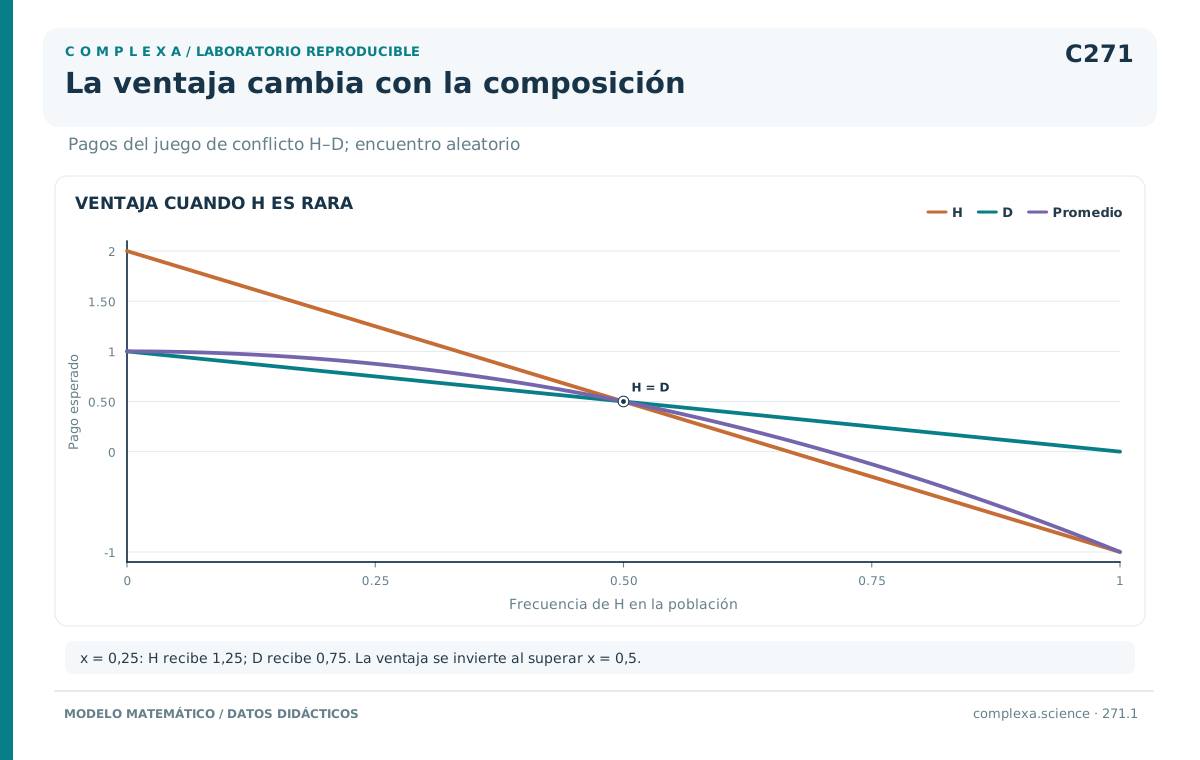
Definamos dos estrategias, H y D. H escala un conflicto y D evita una escalada sostenida. Un recurso tiene valor dos y un enfrentamiento entre dos H implica un costo esperado que deja a cada uno un pago de menos uno.
Si H encuentra D, H obtiene dos y D obtiene cero. Si dos D se encuentran, cada uno recibe uno. La matriz para el individuo focal es
Las etiquetas tradicionales de halcón y paloma son recordatorios de las reglas del juego. No describen especies completas ni tipos morales de persona; un organismo podría expresar conductas diferentes según la información o el contexto.
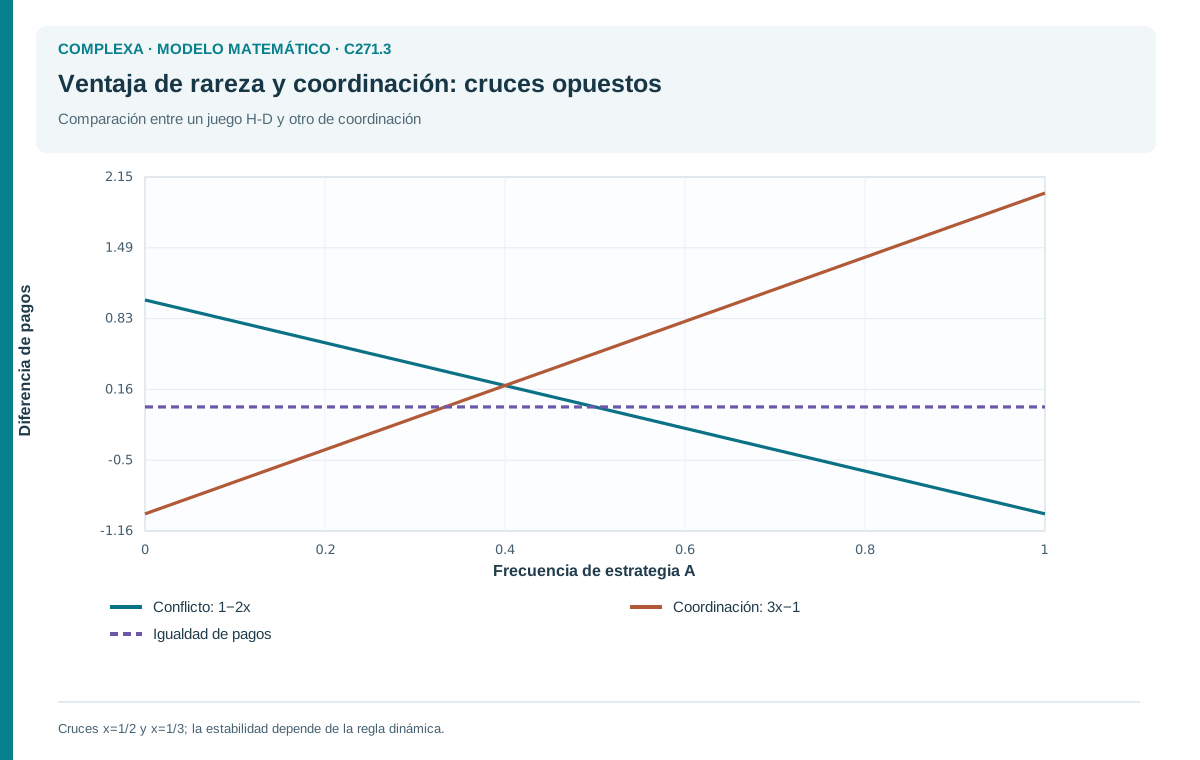
Si x es la frecuencia de H, los pagos esperados son dos menos tres veces x para H y uno menos x para D. La diferencia es uno menos dos veces x. H obtiene más cuando su frecuencia es menor que un medio; D obtiene más cuando H supera ese valor.
En x igual a un medio, ambos reciben 0,5. La igualdad de pagos define una composición donde ninguna estrategia tiene ventaja inmediata sobre la otra bajo mezcla aleatoria. Todavía debemos especificar la dinámica para estudiar cómo se llega a esa composición.
Con x igual a un cuarto, H recibe 1,25 y D recibe 0,75. Con x igual a tres cuartos, H recibe menos 0,25 y D recibe 0,25. El mismo comportamiento cambia de ventaja según los interlocutores disponibles.
La explicación es mecánica. Cuando H es raro, encuentra muchos D y obtiene el recurso con frecuencia; cuando es común, aumentan los encuentros costosos entre H. No hace falta que los individuos ajusten conscientemente sus decisiones para que cambien los pagos esperados.
El promedio poblacional es uno menos dos veces x al cuadrado. En la mezcla igualitaria vale 0,5; en una población de D vale uno. La composición de pagos iguales no maximiza el promedio de este juego.
Una situación resistente a cambios de frecuencia puede tener un resultado colectivo menor que otra que sería invadida. La estabilidad y la eficiencia son propiedades diferentes y requieren criterios distintos.
El ejemplo permite estudiar la coexistencia determinista, aunque la igualdad de pagos no elimina la deriva; una población finita sin mutación puede perder una estrategia por azar.
La caída del promedio puede comprobarse en una actualización concreta. Con frecuencia inicial de H igual a un cuarto, el pago medio es 0,875. Después de la actualización reproductiva que calcularemos a continuación, H alcanza trece dividido por cuarenta y seis y el pago medio del juego baja aproximadamente a 0,8403.
H aumentó porque recibió más que D en la composición anterior. Al aumentar, cambió la distribución de encuentros y elevó la frecuencia de conflictos costosos. La ventaja relativa que impulsa el cambio y el resultado promedio posterior son cantidades distintas.
Una población compuesta solo por D obtiene el mayor promedio de este ejemplo. Sin embargo, un H introducido en baja frecuencia encuentra casi exclusivamente D y recibe aproximadamente dos, mientras que los residentes reciben cerca de uno. Esa composición de alto rendimiento puede ser invadida bajo la regla especificada.
No debemos traducir el resultado a una valoración moral de los individuos. El modelo compara consecuencias de reglas de interacción; sus etiquetas no explican motivaciones ni justifican conductas humanas. Para aplicar una comparación semejante a otro sistema habría que definir sus acciones, costos, beneficios y transmisión con evidencia propia.
271.5. Convertir pagos en reproducción
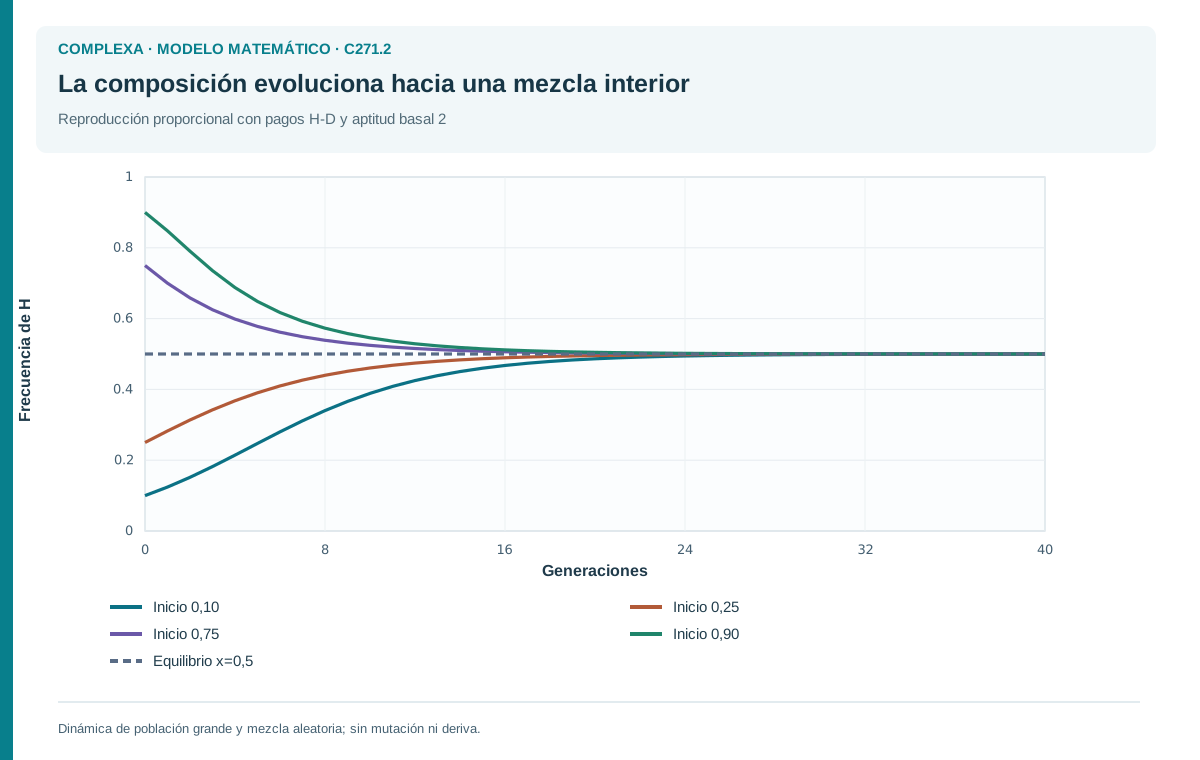
Para construir una actualización discreta, sumemos dos unidades basales a los pagos anteriores. Las aptitudes serán cuatro menos tres veces x para H y tres menos x para D, ambas positivas en todo el intervalo de frecuencias.
Si la reproducción es proporcional a la aptitud y la transmisión es fiel, la frecuencia siguiente de H es
Con x igual a un cuarto, las aptitudes son 3,25 y 2,75. La aptitud media es 2,875 y la frecuencia siguiente de H es trece dividido por cuarenta y seis, aproximadamente 0,282609. H aumenta.
Con x igual a tres cuartos, las aptitudes son 1,75 y 2,25. La media es 1,875 y la frecuencia siguiente es 0,7, de modo que H disminuye. Ambos movimientos son compatibles con una tendencia hacia la mezcla interior.
La igualdad de pagos en x igual a un medio se conserva al sumar el mismo componente basal. Las aptitudes de ambas estrategias son 2,5 y la frecuencia permanece en un medio. Lo que el componente basal puede alterar es la velocidad del cambio.
Si en vez de sumar dos sumamos diez, desde x igual a un cuarto obtenemos aptitudes 11,25 y 10,75. La frecuencia siguiente es quince dividido por cincuenta y ocho, aproximadamente 0,258621. La ventaja sigue apuntando en la misma dirección, pero el cambio es menor.
Una diferencia fija de pagos equivale a una diferencia reproductiva relativa menor cuando el componente basal es grande. Por tanto, conservar el orden de estrategias no garantiza conservar la trayectoria temporal de una actualización discreta.
Multiplicar todas las aptitudes por un mismo factor positivo sí deja intacta esta actualización de frecuencias, porque ese factor se cancela en numerador y denominador. Aun así, podría alterar la abundancia absoluta si el modelo también describe crecimiento.
Una transformación exponencial produce siempre aptitudes positivas, pero cambia las razones entre ellas de otra manera. Para intensidades pequeñas puede aproximar ciertas transformaciones lineales; fuera de ese régimen, la equivalencia no debe suponerse.
La regla de reproducción debe declararse antes de interpretar una simulación. Usar directamente pagos negativos como probabilidades o corregirlos de manera distinta en cada generación puede introducir un proceso no previsto.
El juego define los resultados de interacción; la dinámica, cómo esos resultados modifican las frecuencias. Mantener ambos componentes separados permite identificar qué conclusión depende de cada uno.
271.6. Dominancia, coordinación y coexistencia
Los juegos de dos estrategias pueden mostrar patrones cualitativos diferentes. Una estrategia domina estrictamente a otra si obtiene mayor pago frente a cualquiera de los dos interlocutores. En la matriz general, A domina si a supera c y b supera d.
En ese caso, bajo mezcla aleatoria, A tiene mayor pago para cualquier frecuencia interior. Una transformación común creciente conserva esa ventaja. En una población finita, de todos modos, el resultado sigue siendo probabilístico, sobre todo cuando A comienza con pocas copias.
Un juego de coordinación tiene otra estructura. Consideremos pagos dos para A frente a A, cero para A frente a B, cero para B frente a A y uno para B frente a B. Cada estrategia obtiene más cuando encuentra suficientes individuos de su mismo tipo.
Los pagos esperados son dos veces x para A y uno menos x para B. Se igualan cuando x es un tercio. Por encima, A tiene ventaja; por debajo, la tiene B. La mezcla interior es un umbral que separa las direcciones de cambio.
En el juego de conflicto anterior, cada estrategia podía aprovechar su rareza y la dirección de la selección favorecía la mezcla. En la coordinación, ser raro puede resultar una desventaja.
Las condiciones iniciales pueden determinar hacia qué extremo se dirige una dinámica. Dos poblaciones con la misma matriz pero frecuencias iniciales distintas pueden acabar dominadas por estrategias diferentes.
También hay casos límite donde los pagos se igualan en un extremo o en todo el intervalo. Una igualdad puede producir neutralidad, estabilidad débil u otras situaciones que requieren examinar la dinámica. No conviene clasificarlas usando únicamente etiquetas pensadas para desigualdades estrictas.
Estas categorías solo resumen los signos de las diferencias de pago. La mutación, el emparejamiento no aleatorio y los cambios ambientales pueden modificar los equilibrios o impedir la absorción.
La clasificación orienta las preguntas. Si hay dominancia, preguntamos qué mantiene a la estrategia desfavorecida. Si hay coordinación, investigamos umbrales y condiciones iniciales. Si hay ventaja de rareza, estudiamos coexistencia y fluctuaciones.
El cálculo de pagos permite reconocer el problema antes de atribuir una interpretación social. Una misma acción puede participar en juegos distintos según costos, beneficios y estructura de interacción.
271.7. Emparejamiento y estructura poblacional
La aptitud dependiente de frecuencia depende de los pagos y de quién encuentra a quién. Si las estrategias se agrupan espacialmente o interactúan preferentemente con semejantes, las probabilidades condicionales de encuentro cambian.
Para A, la probabilidad de encontrar A puede ser distinta de la frecuencia global x; para B, puede ser otra. Debemos usar esas probabilidades condicionales al calcular pagos esperados.
La asociación puede proceder de parentesco, dispersión limitada, elección de pareja, instituciones o historia de interacción. Esos mecanismos no son equivalentes aunque produzcan patrones de encuentro similares en una observación.
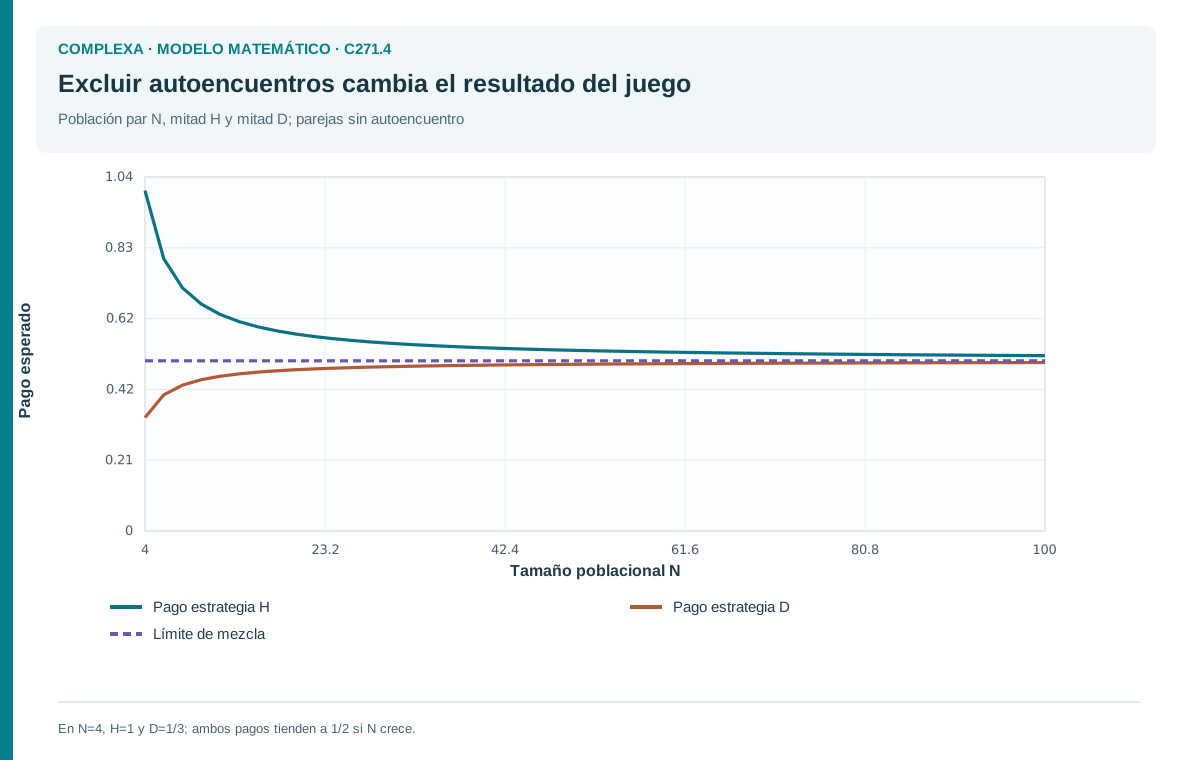
En poblaciones pequeñas también importa la exclusión de autoencuentros. Consideremos cuatro individuos, dos H y dos D, con el juego de conflicto anterior. Cada individuo encuentra uniformemente a uno de los otros tres.
Un H tiene entre sus posibles interlocutores un H y dos D. Su pago esperado es menos uno dividido por tres más cuatro dividido por tres, igual a uno. Un D encuentra dos H y un D, de modo que recibe un tercio.
Si usáramos directamente la frecuencia global un medio como probabilidad de encuentro, asignaríamos a ambos pago 0,5. La diferencia surge de que el individuo focal no puede encontrarse consigo mismo y su tipo modifica la composición de los otros tres.
En poblaciones grandes esa corrección puede ser pequeña; en ejemplos finitos puede cambiar comparaciones relevantes. Especificar el muestreo con o sin autoencuentro evita atribuir a la selección diferencias que proceden del modo de emparejar.
La estructura espacial añade posiciones. Dos poblaciones con iguales cantidades de estrategias pueden tener patrones de vecindad diferentes y producir pagos distintos. El conteo global puede dejar de ser un estado suficiente para predecir la siguiente actualización.
La regla que transforma el éxito local en reproducción también puede interactuar con la estructura. Nacer antes de morir, reemplazar vecinos o competir globalmente no generan necesariamente el mismo proceso. Con la misma red, el resultado evolutivo puede cambiar según esa regla.
Por eso, constatar que los cooperadores se encuentran entre sí puede identificar un patrón favorable, pero una explicación de la cooperación basada en asociación necesita describir cómo se produce y se mantiene esa asociación.
271.8. Estrategias condicionadas y más de dos alternativas
Una estrategia puede usar información sobre tamaño, estado, parentesco o encuentros previos. En ese caso, además de clasificar las acciones visibles, debemos identificar la regla que relaciona señales con decisiones.
Dos individuos pueden cooperar en un ensayo y tener estrategias diferentes. Uno coopera siempre; otro coopera solo porque recibió una señal favorable. Para distinguirlos necesitamos condiciones donde sus reglas produzcan acciones distintas.
La representación mediante matriz puede seguir siendo útil si cada estrategia es una regla completa y podemos calcular su resultado esperado frente a otra. Sin embargo, esos pagos incorporarán probabilidades de señales, errores y duraciones de interacción.
Con tres o más estrategias aparecen posibilidades que no caben en una sola línea de frecuencias. Un ejemplo es la dominancia cíclica, en la que A supera a C, C supera a B y B supera a A, de modo que ninguna estrategia gana frente a todas.
Una matriz de pagos de suma cero para ese patrón es
Si las tres estrategias tienen frecuencia un tercio, sus pagos esperados son cero. Si A tiene frecuencia un medio y B y C un cuarto cada una, los pagos son cero para A, un cuarto para B y menos un cuarto para C.
La estrategia más abundante no recibe necesariamente el mayor pago. Su abundancia puede crear oportunidades para otra, que a su vez modifica las oportunidades de la tercera. La retroalimentación puede producir trayectorias que requieren analizar el sistema completo.
No inferiremos aquí ciclos estables únicamente a partir de la matriz. La forma de las trayectorias depende de la dinámica, de las perturbaciones y de posibles diferencias en los pagos. El ejemplo muestra por qué comparar estrategias de dos en dos puede ser insuficiente.
Las estrategias mixtas introducen otra distinción. Un individuo puede aleatorizar entre acciones, mientras que una población puede contener individuos de estrategias puras en ciertas proporciones. Bajo algunos supuestos producen pagos medios similares, pero sus consecuencias frente a correlaciones o repetición pueden diferir.
Al ampliar el juego debemos tener presente qué entidad se reproduce o se transmite. Si las acciones cambian rápidamente dentro de individuos mientras las reglas se transmiten lentamente, ambas escalas necesitan una descripción explícita.
La diferencia entre mezcla individual y mezcla poblacional puede verse en el juego H–D. Una población con mitad de individuos H y mitad D puede producir los mismos pagos medios por encuentro que individuos que eligen H con probabilidad un medio en cada ocasión, si los encuentros y las elecciones son independientes.
Sin embargo, en la primera población cada individuo mantiene su regla pura entre encuentros, mientras que en la segunda sus acciones pueden cambiar. Si los interlocutores recuerdan comportamientos, eligen con quién interactuar o responden a la reputación, esa diferencia puede modificar oportunidades futuras.
Incluso sin memoria, la distribución de resultados acumulados por individuo puede diferir cuando existen correlaciones persistentes entre tipo y acción. Un promedio por encuentro no conserva toda la información sobre la variación individual.
Para decidir si ambas representaciones son intercambiables, debemos preguntar qué observa la selección o el mecanismo de transmisión. Si depende de resultados acumulados, riesgos de pérdidas extremas o supervivencia durante una secuencia, las distribuciones pueden importar además de la media.
La equivalencia matemática bajo encuentros independientes tiene, por tanto, un alcance delimitado. No autoriza a identificar automáticamente una proporción poblacional con una probabilidad de decisión de cada organismo.
271.9. Medir juegos en sistemas reales
Una matriz empírica requiere observar resultados bajo combinaciones de estrategias y condiciones comparables. Asignar números que reproduzcan el comportamiento que queremos explicar es insuficiente, porque los pagos deben conectarse con variables medibles.
En microorganismos, un resultado puede ser crecimiento bajo una composición inicial. En animales, puede ser acceso a recursos, supervivencia o reproducción. En un experimento humano, una ganancia monetaria es una consecuencia del diseño y no debe identificarse automáticamente con aptitud biológica.
Una serie de frecuencias permite estimar ventajas relativas bajo ciertos modelos, pero puede no separar pagos, emparejamiento y transmisión, porque distintas combinaciones de esos componentes pueden producir trayectorias parecidas.
Un diseño informativo manipula frecuencias iniciales y mide cambios en los resultados de cada estrategia. Si el éxito relativo cambia de signo al variar la composición, ese cambio es evidencia de dependencia de frecuencia bajo las condiciones del ensayo.
También conviene medir los encuentros reales. Una dependencia aparente puede proceder de un cambio en la asociación entre individuos aunque los pagos de un encuentro dado sigan iguales. Registrar solamente frecuencias globales puede ocultar esa diferencia.
Los costos y beneficios pueden variar con la densidad total además de con la frecuencia. Una población con diez por ciento de una estrategia puede comportarse de manera distinta si contiene cien individuos o un millón. Frecuencia y abundancia son variables separadas.
Las réplicas permiten estimar fluctuaciones y evaluar si la dinámica determinista resulta adecuada. Una predicción de coexistencia puede corresponder a una distribución amplia en poblaciones pequeñas, con pérdidas ocasionales de estrategias.
Identificar estrategias también requiere cuidado, porque una clasificación basada en la conducta observada puede cambiar con el ambiente. Si los individuos ajustan sus acciones, el cambio de frecuencias de acciones no demuestra reproducción diferencial de reglas.
El análisis debe declarar qué se ha medido directamente y qué se ha inferido. Esa transparencia permite comparar juegos sin confundir una matriz teórica, una estimación experimental y una explicación evolutiva completa.
Otra prueba es repetir las mismas combinaciones de estrategias a distintas densidades. Si cambia el resultado aun cuando las probabilidades de encuentro se mantienen, la matriz necesita incorporar densidad o recursos. El efecto atribuido a frecuencia podría estar mezclando dos variables que covarían en el diseño original.
También puede ser útil separar las tasas de encuentro de las consecuencias por encuentro. Una estrategia que consigue más recursos porque interactúa más veces no tiene necesariamente una ventaja en cada interacción. Ambas vías pueden aumentar la reproducción, pero responden de manera distinta a cambios en la estructura de contactos.
Cuando se ajusta una matriz a trayectorias, conviene examinar si sus entradas están identificadas. Las frecuencias pueden informar sobre diferencias relativas sin determinar un componente común de pagos. Atribuir significado biológico a cada número requiere información adicional.
Sin exigir que todo sistema se reduzca perfectamente a una matriz, estas comprobaciones permiten reconocer cuándo la aproximación captura la pregunta y cuándo hay que ampliar el modelo para conservar el mecanismo.
271.10. La interacción convierte la composición en una causa
Los juegos evolutivos describen situaciones donde el resultado de una estrategia depende de las otras estrategias presentes. La composición poblacional modifica los encuentros, los encuentros modifican las contribuciones y esas contribuciones pueden cambiar la composición.
Una matriz permite organizar pagos, pero necesita una regla de emparejamiento y una transformación a aptitud. La dinámica poblacional añade transmisión, reproducción, mutación y tamaño. Ningún componente aislado determina todas las consecuencias.
Los ejemplos muestran tres patrones distintos (ventaja persistente, coordinación y ventaja de rareza) e indican que la igualdad de pagos, la estabilidad y la eficiencia colectiva son propiedades diferentes. Una población puede dirigirse hacia una composición que no maximiza su resultado promedio.
Las estrategias no requieren cálculo consciente y no deben confundirse con acciones individuales. Una regla condicionada puede producir comportamientos diversos, mientras que una misma acción puede proceder de reglas distintas.
La estructura de interacción y la historia modifican las posibilidades. La exclusión de autoencuentros, el agrupamiento y las condiciones iniciales pueden alterar resultados aun cuando los pagos básicos permanezcan iguales.
El próximo capítulo desarrollará la dinámica del replicador, cuya ecuación permitirá convertir diferencias de aptitud en cambios de frecuencia y estudiar estabilidad, límites y trayectorias. Mantendremos la separación entre lo que define el juego y lo que define el proceso evolutivo que actúa sobre él.
Referencias
[1] Maynard Smith, J., y Price, G. R. (1973). The logic of animal conflict. Nature, 246, 15–18. DOI.