Módulo 28. Juegos evolutivos y cooperación
1. Persistir, resistir y recuperarse
Una población puede conservar durante mucho tiempo la misma composición por razones muy diferentes. Tal vez las estrategias presentes obtengan pagos semejantes. Tal vez una de ellas sea ventajosa, pero la transmisión ocurra lentamente. También puede faltar la variante capaz de desplazar a las demás. Para decidir si hay estabilidad evolutiva, además de observar la persistencia, necesitamos especificar qué perturbación estamos considerando y cómo respondería el sistema.
Una perturbación puede introducir individuos con otra estrategia, modificar temporalmente sus frecuencias o alterar los pagos del juego. Estas operaciones no son equivalentes. La resistencia frente a una pequeña introducción de mutantes no garantiza resistencia frente a un cambio ambiental que transforme los beneficios. Del mismo modo, recuperarse después de una fluctuación pequeña no implica recuperarse después de una sustitución masiva de la población.
La noción clásica de estrategia evolutivamente estable, habitualmente abreviada ESS por sus iniciales inglesas, se formuló para estudiar la resistencia a invasores raros [1]. Considera una estrategia residente y pregunta si cualquier alternativa suficientemente escasa obtiene un pago inferior al de los residentes en la población perturbada. La comparación se hace dentro de un juego especificado, con un conjunto de estrategias admisibles y una regla de encuentro determinada.
La estabilidad dinámica plantea otra pregunta, la de si las trayectorias permanecen cerca del estado original o regresan a él cuando alteramos ligeramente el estado de una ecuación de evolución. Aquí la respuesta depende de la dinámica. El replicador continuo, una actualización discreta y un proceso estocástico finito pueden producir respuestas distintas a partir de pagos semejantes. Hay relaciones matemáticas entre ESS y algunas dinámicas, pero esas relaciones necesitan sus propios supuestos.
En este capítulo trabajaremos principalmente con juegos simétricos de dos participantes y pagos bilineales. Simétrico significa que ambos jugadores disponen de los mismos papeles estratégicos y que intercambiar sus posiciones intercambia sus pagos correspondientes. No exige que la matriz de pagos sea simétrica respecto de su diagonal. La precisión es necesaria porque algunas propiedades dinámicas requieren una matriz simétrica, mientras que la definición de ESS no la necesita.
El objetivo será aprender a formular una prueba de invasión, distinguir los casos de igualdad y reconocer los límites de la conclusión. Una estrategia estable puede producir pagos bajos, coexistir con otras soluciones estables o desaparecer por fluctuaciones en una población pequeña. La estabilidad responde solo a una comparación concreta.
2. La comparación entre residentes y mutantes
Representemos una estrategia residente mediante el vector p y una estrategia mutante mediante q. Sus componentes indican probabilidades de elegir las acciones disponibles. En una población formada por una proporción uno menos épsilon de residentes y una proporción épsilon de mutantes, la estrategia media de los compañeros es
Si el pago de una estrategia a frente a otra b se escribe como u(a,b), los residentes obtienen u(p,x subíndice épsilon) y los mutantes u(q,x subíndice épsilon). La definición exige que, para cada q diferente de p, exista un intervalo de frecuencias mutantes positivas suficientemente pequeñas en el que el pago residente sea estrictamente mayor. El tamaño de ese intervalo expresa una barrera de invasión.
La palabra «rara» no significa inexistente. Cuando épsilon es exactamente cero, los mutantes no se encuentran entre sí y solo podemos comparar su pago frente a residentes. Cuando épsilon es pequeño pero positivo, algunos encuentros ocurren entre mutantes. Esos encuentros pueden decidir el resultado si la primera comparación produce un empate. Ignorarlos elimina una parte esencial de la definición.
En un juego matricial el pago es la forma bilineal
Por ello, la diferencia de pagos en la población perturbada puede escribirse como
La expresión separa los encuentros con residentes y con mutantes. Si el primer corchete es positivo, domina para invasiones suficientemente pequeñas. Si es negativo, el mutante tiene ventaja desde el inicio y p no es evolutivamente estable. Si vale cero, la respuesta depende del segundo corchete.
Esta descomposición también aclara qué información se necesita. Medir únicamente el pago de q frente a p basta para descartar estabilidad cuando el mutante supera al residente; un empate, en cambio, exige observar cómo interactúa cada estrategia con q.
El conjunto de alternativas también condiciona el resultado. Una estrategia puede resistir a dos mutantes ensayados y ser vulnerable a un tercero. Cuando un modelo afirma estabilidad frente a todas las estrategias mixtas construidas a partir de ciertas acciones, su conclusión sigue limitada a ese espacio. Introducir memoria, reconocimiento de compañeros o nuevas acciones amplía el problema y puede cambiar la respuesta.
La comparación describe consecuencias de interacciones y de transmisión diferencial, por lo que los organismos no necesitan calcular estas desigualdades. En aplicaciones culturales, sin embargo, habrá que justificar que los pagos influyan en la adopción de estrategias de la manera supuesta. La estabilidad de la matriz no exime de investigar el proceso que actualiza la población.
3. Las dos condiciones y el papel del empate
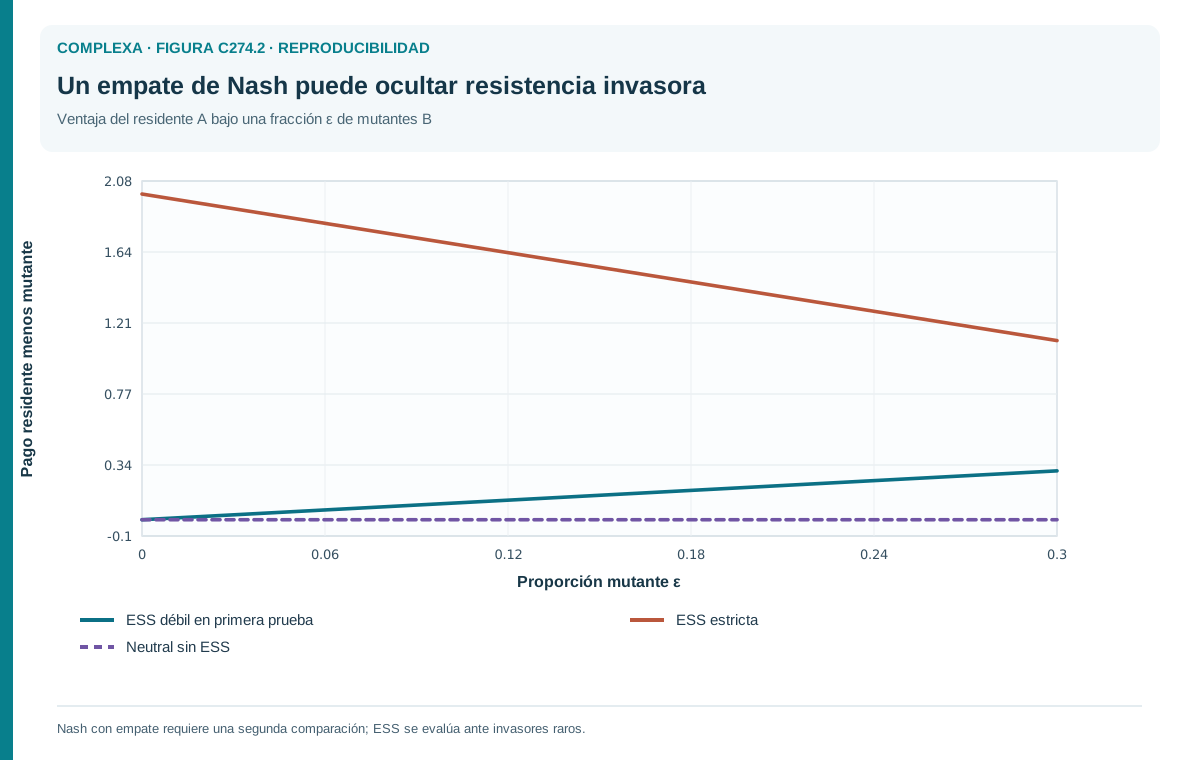
La descomposición anterior conduce a dos condiciones. Para toda alternativa q diferente de p, el residente debe obtener frente a residentes al menos el mismo pago que q. Si ambos empatan en esa comparación, el residente debe obtener más que q cuando ambos se enfrentan a q. En símbolos,
y, cuando hay igualdad,
La primera condición define un equilibrio de Nash simétrico, en el que ninguna alternativa mejora su pago al aparecer unilateralmente frente al residente. La segunda elimina ciertos equilibrios que permiten invasiones sin desventaja o con ventaja a frecuencias positivas. Por eso toda ESS de este marco es un equilibrio de Nash simétrico, aunque el recíproco no se cumple en general.
Un ejemplo permite ver el empate sin recurrir a un límite abstracto. Consideremos dos estrategias A y B, con matriz
En una población enteramente A, tanto A como un B aislado obtienen uno, así que la primera comparación empata. Si introducimos una proporción épsilon de B, A sigue obteniendo uno, mientras que B obtiene uno menos épsilon porque los encuentros entre B reducen su pago. La diferencia favorable a A es épsilon, positiva para cualquier introducción no nula inferior a la sustitución total.
La ventaja restauradora se vuelve pequeña cuando el invasor es muy escaso, de modo que la resistencia puede ser lenta y difícil de distinguir de la neutralidad con datos ruidosos. Matemáticamente, no obstante, es estricta. La estabilidad no exige una diferencia mínima uniforme de pagos al hacer tender la frecuencia mutante a cero.
Cambiemos ahora la matriz por
De nuevo, ambos tipos obtienen uno frente a A. Con una frecuencia épsilon de B, en cambio, el residente A obtiene uno menos épsilon y B conserva uno. El mutante tiene una ventaja pequeña que crece con su frecuencia. A satisface la primera condición y no la segunda; es un equilibrio de Nash simétrico que no es ESS.
Si todos los pagos de la matriz fueran uno, ninguna composición produciría diferencias y tendríamos neutralidad exacta en este modelo. Cada frecuencia sería estacionaria bajo el replicador, pero ninguna estrategia distinta sería rechazada por una comparación estricta. Este tercer caso ayuda a separar ausencia de crecimiento del invasor, desventaja del invasor y empate permanente. Las tres situaciones pueden parecer similares en observaciones cortas, aunque sus respuestas a perturbaciones y deriva sean diferentes.
4. Una estrategia mixta puede ser estable
Volvamos al juego de agresión y retirada con matriz
Llamemos H a la primera acción y D a la segunda. Cuando la frecuencia de H es x, los pagos de H y de D son dos menos tres x y uno menos x, que se igualan en x igual a un medio. La estrategia mixta p que elige cada acción con probabilidad un medio tiene, frente a sí misma, un pago de un medio.
Consideremos una alternativa q que elige H con probabilidad q y D con probabilidad uno menos q. Frente a p, cualquier mezcla obtiene un medio porque ambas acciones puras empatan. Por tanto, la primera condición de ESS se cumple con igualdad para todas las alternativas y la decisión depende enteramente de la segunda.
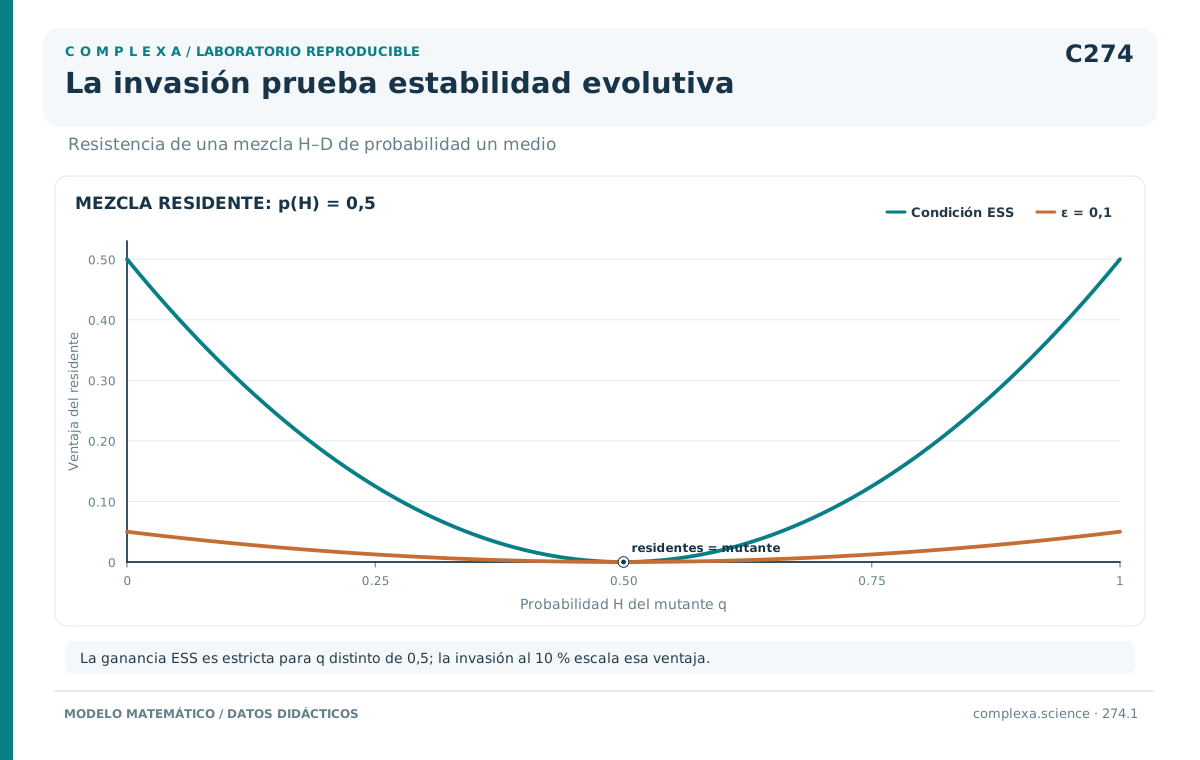
El pago de p frente a q es uno coma cinco menos dos q. El pago de q frente a sí misma es uno menos dos q al cuadrado. La diferencia es
Para cualquier q diferente de un medio, esa cantidad es positiva y la mezcla p satisface la condición de estabilidad. Que todas las estrategias empaten frente a una población exactamente p no implica neutralidad cuando la composición cambia.
Podemos calcular la fuerza de resistencia. Si introducimos una proporción épsilon de individuos que usan q, la frecuencia media de H pasa a un medio más épsilon por q menos un medio. La diferencia entre el pago residente y el mutante es dos épsilon por el cuadrado de q menos un medio. Un mutante que siempre elige H tiene una desventaja de épsilon dividido por dos; si representa el diez por ciento de la población, esa desventaja es cero coma cero cinco.
La interpretación requiere cuidado. Una población de individuos que aleatorizan sus acciones puede producir los mismos pagos medios que una población de especialistas H y D en igual proporción, siempre que los encuentros sean independientes y el pago dependa únicamente de las acciones. Aun así, las dos poblaciones no son biológicamente idénticas, porque pueden diferir en herencia, variación individual o correlaciones entre encuentros.
La definición de estrategia mixta estable compara estrategias dentro del modelo. La estabilidad de una composición de tipos puros se estudia mediante la dinámica poblacional correspondiente. En este ejemplo ambas descripciones se conectan de forma sencilla, pero esa equivalencia no debe extenderse sin revisión a estrategias con memoria, interacciones repetidas o transmisión que conserve correlaciones entre acciones.
5. Estabilidad local y cuencas de atracción
Consideremos ahora el juego de coordinación
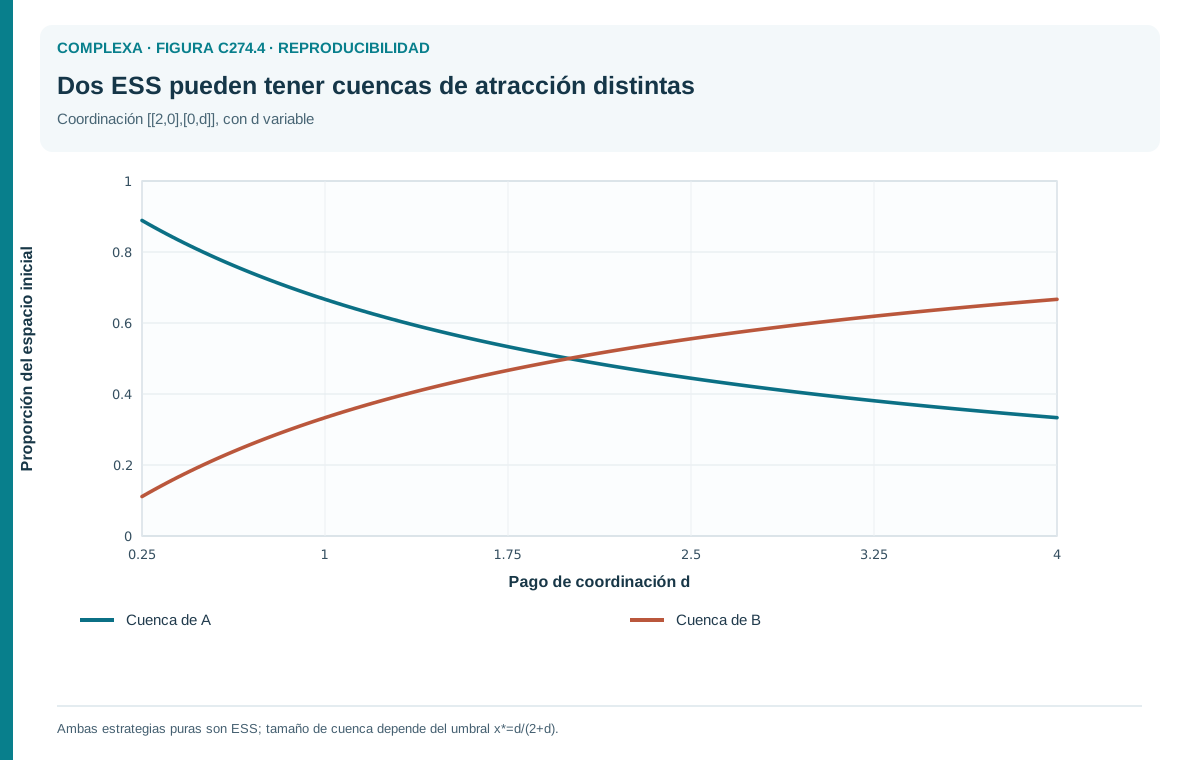
Si x es la frecuencia de A, los pagos de A y de B son dos x y uno menos x, cuya diferencia es tres x menos uno. El replicador tiene un equilibrio interior en un tercio. Por debajo, A disminuye; por encima, aumenta. Las poblaciones enteramente A y enteramente B son localmente atractoras.
Ambas estrategias puras son ESS. Frente a una población A, un residente obtiene dos y un mutante B obtiene cero. Frente a una población B, el residente obtiene uno y un mutante A obtiene cero. En los dos casos hay una ventaja estricta frente a invasores suficientemente raros. Los resultados colectivos, sin embargo, difieren; la población A obtiene dos por individuo y la población B, uno.
La estabilidad evolutiva no selecciona necesariamente el estado de mayor pago ni garantiza una solución única. La historia de la composición inicial determina qué cuenca de atracción se alcanza bajo esta dinámica. Una población estable en B puede permanecer allí aunque exista otro estado estable que produzca pagos mayores.
Las barreras de invasión también son distintas. Si la población residente es A y la proporción de invasores B es épsilon, A conserva ventaja mientras épsilon sea menor que dos tercios. Si la población residente es B y los invasores A tienen frecuencia épsilon, B conserva ventaja mientras épsilon sea menor que un tercio. Una perturbación suficientemente grande puede cruzar el equilibrio interior y cambiar el destino del sistema.
Estas cifras son propias de esta matriz y de esta dinámica. Cambiar los pagos de la coordinación modifica el umbral; incorporar información o adaptación de los encuentros puede modificar la forma completa del proceso. Lo general es la necesidad de distinguir la estabilidad local de la recuperación frente a perturbaciones de gran tamaño.
En una aplicación, conviene especificar la perturbación relevante. Una migración pequeña, una campaña de adopción masiva y un cambio permanente de incentivos no prueban lo mismo. El modelo puede ayudar a calcular qué intervención basta para cruzar una frontera, pero no demuestra que esa intervención sea factible. Además, si los pagos cambian mientras se aplica, la propia frontera puede desplazarse.
La noción de cuenca de atracción da así una descripción más informativa que una etiqueta binaria de estabilidad. Permite preguntar desde qué estados se recupera una composición, cuánto tarda y qué cambios la hacen vulnerable. Esas preguntas conectan la teoría con perturbaciones observables.
6. La relación con el replicador continuo
Para el replicador continuo de un juego matricial simétrico de dos participantes, una ESS genera un estado localmente asintóticamente estable. Esta conexión clásica se desarrolló en los trabajos sobre estrategias estables y dinámica de juegos [2]. Su alcance depende del marco (pagos bilineales, dinámica continua y las condiciones usuales de encuentros y transmisión).
La estabilidad de Lyapunov significa que perturbaciones iniciales suficientemente pequeñas permanecen pequeñas. La estabilidad asintótica añade que las trayectorias cercanas convergen al equilibrio. Un sistema puede cumplir la primera propiedad sin cumplir la segunda, como se ve en los juegos cíclicos, donde las trayectorias pueden girar alrededor de un estado sin acercarse a él.
La relación entre ESS y replicador puede entenderse mediante una medida de divergencia. Para una estrategia residente p y una composición x con componentes positivas donde p las tiene, definamos
Esta cantidad es no negativa y se anula cuando x coincide con p. A lo largo del replicador, su derivada es
Cuando p obtiene un pago mayor que la composición vecina x frente a esa misma composición, la derivada es negativa y la trayectoria reduce la divergencia. Esta es la conexión entre una comparación local de pagos y una propiedad dinámica de retorno.
La cantidad V permite demostrar convergencia bajo condiciones apropiadas sin necesidad de interpretarla como una energía física. Si los pagos cambian con el tiempo o las interacciones dependen de variables omitidas, su derivada puede contener términos adicionales o perder el signo requerido. El uso de una función de Lyapunov debe acompañarse de la ecuación concreta que se está estudiando.
En el ejemplo de mezcla H y D, el replicador es x por uno menos x por uno menos dos x. Cerca de un medio, en la aproximación lineal, una desviación pequeña decae exponencialmente con tasa un medio. Esa velocidad depende de la escala de los pagos; multiplicarlos por una constante positiva acelera o retrasa la trayectoria sin cambiar la mezcla estable.
También debemos evitar invertir un teorema sin justificación. Que ESS implique estabilidad asintótica en este marco no autoriza a identificar ambos conceptos en cualquier juego o dinámica. La definición de ESS compara invasiones, mientras que la estabilidad dinámica describe trayectorias de una ecuación. Para establecer una equivalencia adicional hay que demostrarla en la clase de modelos considerada.
7. Un equilibrio que no atrae
El juego cíclico de piedra, papel y tijera es un buen contraste. Consideremos la matriz antisimétrica
La mezcla uniforme p, con un tercio de cada acción, iguala todos los pagos en cero. Ninguna estrategia obtiene una ventaja unilateral frente a ella, así que es un equilibrio de Nash simétrico. Sin embargo, por la antisimetría cualquier estrategia q tiene pago cero frente a sí misma y p también obtiene cero frente a cualquier q, con lo que falla la segunda condición estricta de ESS.
Bajo el replicador ideal, las trayectorias interiores conservan el producto de las tres frecuencias. El centro tiene producto uno dividido por veintisiete. Una composición distinta, como un medio, un cuarto y un cuarto, tiene producto uno dividido por treinta y dos. Como ese producto permanece constante, la trayectoria no puede converger al centro y se desplaza sobre una curva interior cerrada.
El equilibrio puede ser estable en el sentido de que perturbaciones pequeñas permanecen cerca, pero no atrae las trayectorias vecinas. Si observamos oscilaciones de amplitud aproximadamente constante, no deberíamos describirlas como recuperación progresiva. La distancia al centro varía durante el ciclo según la medida elegida, pero hay una cantidad conservada que impide la convergencia.
Una perturbación de los pagos puede cambiar este comportamiento. Si las ganancias al vencer y las pérdidas al ser vencido dejan de compensarse de la misma manera, las órbitas pueden aproximarse al centro o alejarse de él. La neutralidad del ejemplo depende de una estructura exacta de la matriz. De ahí que un resultado obtenido con pagos perfectamente antisimétricos requiera estudiar su sensibilidad a pequeñas desviaciones antes de interpretarse como predicción robusta.
La discretización numérica introduce otra perturbación. Un método de integración puede generar espirales aparentes aunque la ecuación continua conserve órbitas cerradas. El error acumulado puede aumentar o disminuir el producto de frecuencias. Antes de atribuir ese patrón a selección o adaptación, hay que comprobar que no provenga del algoritmo usado para resolver la ecuación.
En una población finita, las fluctuaciones también modifican el producto y pueden acercar una estrategia a la extinción. La estabilidad neutral del modelo determinista no protege contra todos esos eventos. Este ejemplo muestra por qué conviene informar conjuntamente el concepto de equilibrio, la dinámica empleada y el tipo de perturbación estudiado.
8. Invasión y fijación en poblaciones finitas
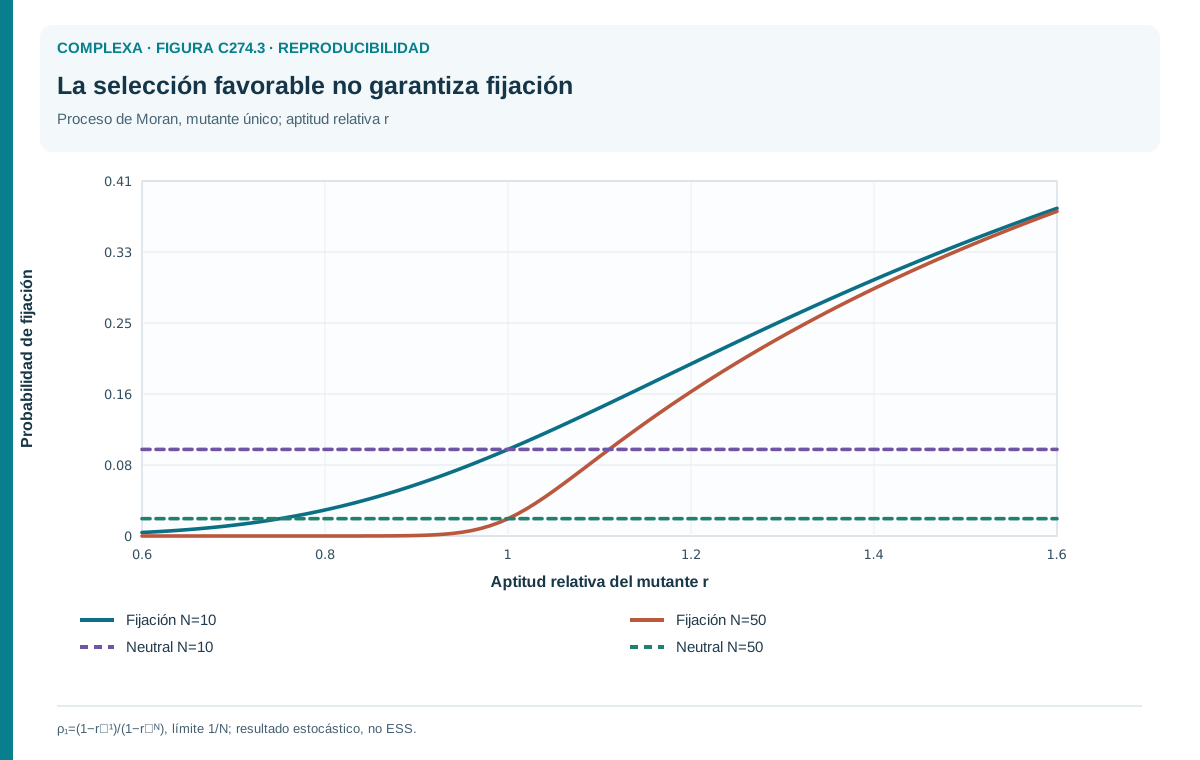
Cuando la población tiene pocos individuos, un invasor favorable puede desaparecer por azar y uno desfavorable puede aumentar temporalmente. La resistencia deja de ser una prohibición determinista de crecimiento y debemos estudiar probabilidades de fijación, tiempos de persistencia o distribuciones estacionarias. Los trabajos sobre estabilidad en poblaciones finitas desarrollan precisamente esta diferencia [3].
Consideremos un proceso de Moran sencillo con diez individuos, dos tipos y aptitudes constantes. En cada paso se elige un progenitor con probabilidad proporcional a su aptitud y se reemplaza un individuo elegido uniformemente. Si la aptitud del mutante es r y la del residente es uno, la probabilidad de fijación de un único mutante, para r distinto de uno, es
En el caso neutral, con r igual a uno, la probabilidad es uno dividido por diez.
Si r vale uno coma dos, la probabilidad de fijación es aproximadamente cero coma ciento noventa y nueve. El mutante tiene ventaja selectiva, pero todavía se pierde en cerca de cuatro de cada cinco realizaciones. Si r vale cero coma ocho, la fijación es menos probable que el diez por ciento neutral, aunque sigue siendo posible. La selección modifica probabilidades, pero cada trayectoria sigue sujeta al azar.
En juegos dependientes de la frecuencia, las aptitudes cambian con el número de mutantes y la fórmula constante ya no se aplica directamente. Debemos calcular las probabilidades de transición en cada estado. La exclusión de encuentros consigo mismo también puede introducir diferencias entre los pagos finitos y los de una población infinita. La definición del proceso reproductivo forma parte de la respuesta.
Sin mutación y con aptitudes positivas, un proceso finito de este tipo puede terminar en una frontera absorbente aunque su aproximación determinista tenga un equilibrio interior atractivo. El tiempo esperado hasta la absorción puede ser muy largo o relativamente corto según los parámetros.
Con mutación recurrente, las fronteras dejan de ser necesariamente absorbentes. Entonces puede ser más útil estudiar cuánto tiempo pasa el proceso cerca de cada composición. Una distribución estacionaria concentrada alrededor de un estado no equivale a una ESS clásica, aunque ambas nociones puedan relacionarse en ciertos límites.
Por ello, afirmar que una estrategia es estable en una población finita exige decir qué criterio se usa. Comparar fijación con neutralidad, comparar abundancias estacionarias y comparar tiempos de escape responde a preguntas distintas. La elección debe seguir el fenómeno que se intenta explicar.
9. Perturbaciones del modelo y errores de interpretación
Hasta aquí hemos perturbado principalmente las frecuencias, pero una población también puede experimentar cambios en recursos, densidad o reglas de interacción. Si esos cambios alteran la matriz, una estrategia que era estable puede dejar de serlo.
Supongamos que una cooperación estable depende de un beneficio b y un costo c. Una reducción pequeña del beneficio puede no cambiar las desigualdades relevantes. Si el sistema está cerca del umbral, la misma reducción puede invertirlas. Por eso conviene informar márgenes de estabilidad, es decir, cuánto pueden variar los parámetros antes de que aparezca una alternativa con ventaja. Una clasificación puntual oculta esa distancia al cambio.
También hay que considerar el repertorio de mutantes. En un juego repetido, una estrategia puede resistir a cooperadores incondicionales y desertores incondicionales, pero ser invadida por una regla que usa la historia. Si el estudio solo comparó los dos primeros tipos, la conclusión debe limitarse a ellos. Analizar un repertorio pequeño es legítimo; el problema aparece al presentar esa estabilidad restringida como universal.
La estructura temporal puede producir otra diferencia. Una actualización discreta intensa puede generar oscilaciones que no aparecen en el replicador continuo. Los retrasos en reproducción o aprendizaje pueden hacer que una respuesta restauradora llegue demasiado tarde. Antes de transferir un resultado de estabilidad entre modelos, debemos comprobar que sus escalas temporales y reglas de actualización sean comparables.
En datos empíricos, la falta de invasión observada también puede deberse a potencia insuficiente. Si la ventaja selectiva es muy pequeña, el período de seguimiento quizá no permita detectarla. Si los invasores se introducen en un ambiente desfavorable por razones ajenas a la estrategia, su fracaso no prueba resistencia estratégica. El experimento necesita separar desempeño, acceso a recursos y transmisión.
Una auditoría razonable pregunta qué perturbaciones se ensayaron, qué alternativas se incluyeron y qué observaciones podrían refutar la estabilidad propuesta. También examina si se confundió estabilidad con eficiencia o con deseabilidad social. Una institución puede resistir cambios porque penaliza a quienes intentan modificarse, aunque produzca resultados colectivos deficientes. El concepto matemático describe esa resistencia sin convertirla en una recomendación normativa.
La incertidumbre de los pagos puede trasladarse directamente a la barrera de invasión. Si sustituimos el dos de la matriz de coordinación por un parámetro a positivo, el umbral de A pasa a ser uno dividido por a más uno. Para a igual a uno coma cinco, el umbral es cero coma cuatro; para a igual a dos coma cinco, es aproximadamente cero coma doscientos ochenta y seis. Una introducción de A del treinta y cinco por ciento crecería en el segundo caso y disminuiría en el primero. Si los datos no distinguen esos valores de a, tampoco permiten asegurar el destino de esa intervención.
Este cálculo sugiere que lo útil es estimar con mayor precisión el pago de la coordinación entre A. Repetir observaciones de un estado ya dominado por B quizá diga poco sobre esa cantidad. La sensibilidad del resultado puede orientar el siguiente experimento hacia la comparación que decide la predicción.
La precisión terminológica tiene así una consecuencia práctica. Permite discutir qué se ha demostrado y qué sigue abierto, sin tomar la palabra «estabilidad» como una conclusión suficiente.
10. Una secuencia de evaluación
Para evaluar una propuesta de estabilidad conviene empezar por la estrategia residente, el conjunto de alternativas y el mecanismo de encuentro. Después se calculan los pagos frente al residente. Si alguna alternativa obtiene más, la estabilidad clásica queda descartada. Si hay empates, se examinan los encuentros con el mutante. Solo entonces puede establecerse si la desigualdad estricta necesaria aparece a frecuencias pequeñas.
El paso siguiente es especificar la dinámica. En un replicador continuo podemos estudiar el campo de velocidades, los equilibrios y sus cuencas. En una actualización discreta debemos verificar la respuesta a pasos finitos. En una población estocástica necesitaremos probabilidades y tiempos. Los resultados pueden complementarse, pero no deberían presentarse como si fueran la misma prueba.
Un ejemplo breve reúne estas operaciones. Para la matriz de coordinación con pagos dos y uno en la diagonal, ambas estrategias puras resisten invasores raros. El replicador divide el intervalo mediante el umbral de un tercio. Una introducción de A del veinte por ciento en una población B disminuye; una del cuarenta por ciento aumenta. La conclusión depende de la magnitud de la perturbación, aunque B sea una ESS.
En cambio, para la mezcla H y D del ejemplo anterior, cualquier desviación interior se dirige hacia la mitad bajo el replicador continuo. La resistencia a estrategias mixtas puede demostrarse mediante una diferencia cuadrática positiva. Si pasamos a una población finita, esa tendencia restauradora coexistirá con fluctuaciones. La pregunta sobre extinción eventual requiere un análisis adicional.
Estas comparaciones permiten comunicar resultados con alcance definido. Podemos decir que una estrategia resiste invasores raros dentro de un repertorio, que un estado atrae trayectorias cercanas o que una composición concentra gran parte de la distribución estacionaria. Cada formulación informa una propiedad verificable y deja visibles sus condiciones.
La cooperación estable será el tema de los próximos capítulos. Observar cooperación no permite suponer que sea estable; necesitamos identificar qué hace que los cooperadores reciban suficientes beneficios, qué limita el aprovechamiento y cómo se transmiten las estrategias. El parentesco y la estructura de interacciones serán una primera vía para modificar esas comparaciones, con efectos que también dependerán de la competencia y de la escala de la población.
Referencias
- Maynard Smith, J., y Price, G. R. (1973). The logic of animal conflict. Nature, 246, 15–18. https://doi.org/10.1038/246015a0
- Hofbauer, J., Schuster, P., y Sigmund, K. (1979). A note on evolutionary stable strategies and game dynamics. Journal of Theoretical Biology, 81(3), 609–612. https://doi.org/10.1016/0022-5193(79)90058-4
- Nowak, M. A., Sasaki, A., Taylor, C., y Fudenberg, D. (2004). Emergence of cooperation and evolutionary stability in finite populations. Nature, 428, 646–650. https://doi.org/10.1038/nature02414