Módulo 28. Juegos evolutivos y cooperación
1. El compañero forma parte del resultado
En una población completamente mezclada, cooperadores y no cooperadores encuentran, en promedio, la misma composición de compañeros. Si cooperar consiste en pagar un costo para beneficiar al otro, esa igualdad de oportunidades deja al cooperador con una desventaja. Muchas poblaciones, sin embargo, no se mezclan de esa manera; los descendientes permanecen cerca de sus progenitores, los individuos eligen compañeros o las interacciones se concentran en una red. En esos casos, la estrategia propia puede estar asociada con el tipo de ayuda que se recibe.
La asociación cambia la comparación. Además de preguntar cuánto cuesta cooperar frente a un compañero dado, debemos preguntar si los cooperadores encuentran compañeros diferentes de los que encuentran los no cooperadores. Una acción costosa puede aumentar en frecuencia si quienes la practican reciben suficientes beneficios de otros portadores de la misma disposición. Esa posibilidad no requiere que el actor calcule conscientemente una ventaja indirecta.
El parentesco es una fuente importante de asociación genética. Los individuos emparentados pueden compartir variantes heredadas de antepasados comunes; por ello, una variante que influye en la ayuda puede encontrarse con copias de sí misma en los receptores. Los trabajos de Hamilton establecieron un marco para analizar cómo los efectos sobre otros individuos contribuyen a la selección de conductas sociales [1, 2]. La interpretación exige definir qué se hereda y qué consecuencias reproductivas produce la interacción.
Sin embargo, asociación y parentesco genealógico no son sinónimos. Dos individuos sin parentesco cercano pueden elegir colaborar porque reconocen una conducta semejante. Una población espacial puede reunir tipos parecidos por dispersión limitada. Una institución puede separar contribuyentes y no contribuyentes. Estos procesos pueden producir estructuras estadísticas similares en un modelo sencillo, aunque sus causas, costos y respuestas a cambios ambientales sean diferentes.
Vivir cerca de parientes puede aumentar tanto la ayuda como la competencia entre ellos. Si los beneficiarios compiten por las mismas pocas oportunidades reproductivas, parte del beneficio puede desplazar a otros portadores de la variante. De ahí que la proximidad no garantice que la cooperación sea favorecida. El análisis debe seguir el beneficio hasta la etapa que determina la contribución a la siguiente generación.
Este capítulo desarrollará primero un modelo explícito de encuentros asociados. Después examinará qué significa su coeficiente de asociación, cómo se relaciona con el parentesco y por qué la escala de competencia puede modificar el resultado. Por último, veremos qué añade una red de interacciones y qué información necesita un estudio empírico para distinguir esos mecanismos.
2. Un modelo mínimo de asociación
Supongamos dos estrategias, C y D, en una población grande. C paga un costo c para dar al compañero un beneficio b; D no paga ese costo ni da ese beneficio. Sea x la frecuencia de C. Un parámetro r entre cero y uno describe un régimen de encuentros en el que, con probabilidad r, el individuo encuentra a otro de su mismo tipo y, con probabilidad uno menos r, encuentra un compañero de la población general.
Este procedimiento es una idealización de la asociación por tipo. Sin suponer que los organismos conozcan sus genes ni que encuentren siempre a alguien idéntico, permite especificar con transparencia dos probabilidades
La diferencia entre ambas es r. Un cooperador recibe ayuda con mayor probabilidad que un no cooperador cuando r es positivo. Para r igual a cero recuperamos el encuentro aleatorio; para r igual a uno, los dos tipos quedan completamente separados en sus encuentros.
Los pagos esperados son
Por tanto,
En este modelo, la cooperación tiene ventaja cuando el beneficio multiplicado por la asociación supera el costo. La frecuencia x desaparece de la diferencia porque el componente de encuentro aleatorio beneficia a ambos tipos de la misma manera. No desaparece de sus pagos absolutos, que aumentan cuando hay más cooperadores.
La construcción respeta un balance importante. La cantidad de encuentros C con D calculada desde los cooperadores es proporcional a x por uno menos r por uno menos x. Calculada desde los no cooperadores produce la misma expresión. Esa consistencia evita asignar a ambos tipos probabilidades de encuentro incompatibles con una única población de parejas.
El pago medio sigue siendo b menos c, multiplicado por x. Cada acto cooperativo genera un beneficio b y cuesta c, con independencia de quién lo recibe. La asociación modifica la distribución de esos beneficios entre tipos; en este modelo no cambia su cantidad total a una frecuencia dada.
La condición br mayor que c es exacta para las reglas que acabamos de escribir. No debe trasladarse sin cambios a cualquier red, población finita o conducta con beneficios no lineales; en esos casos habrá que derivar qué significa r y cómo entran los costos y beneficios.
3. Un cálculo completo de una generación
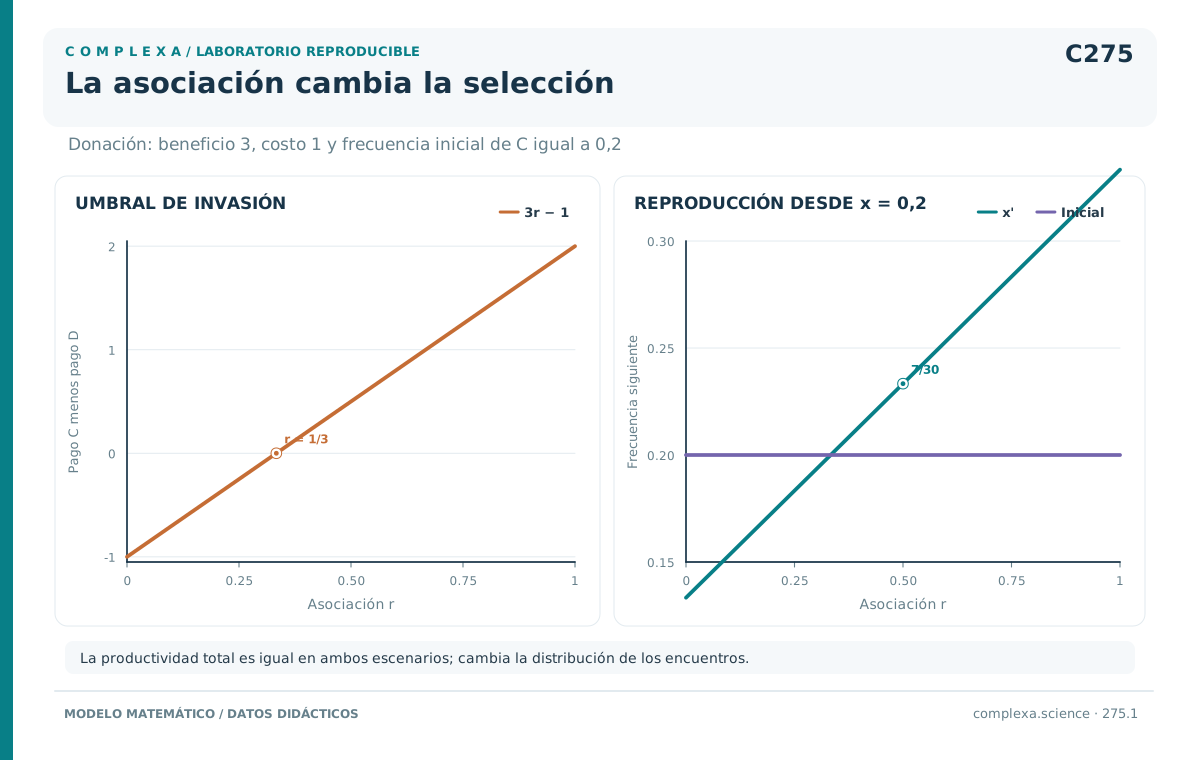
Tomemos un beneficio de tres unidades, un costo de una y una asociación r igual a un medio. Si la frecuencia inicial de cooperadores es un quinto, un C encuentra a otro C con probabilidad cero coma seis y un D encuentra C con probabilidad cero coma uno. El cooperador obtiene un pago esperado de cero coma ocho y el no cooperador de cero coma tres.
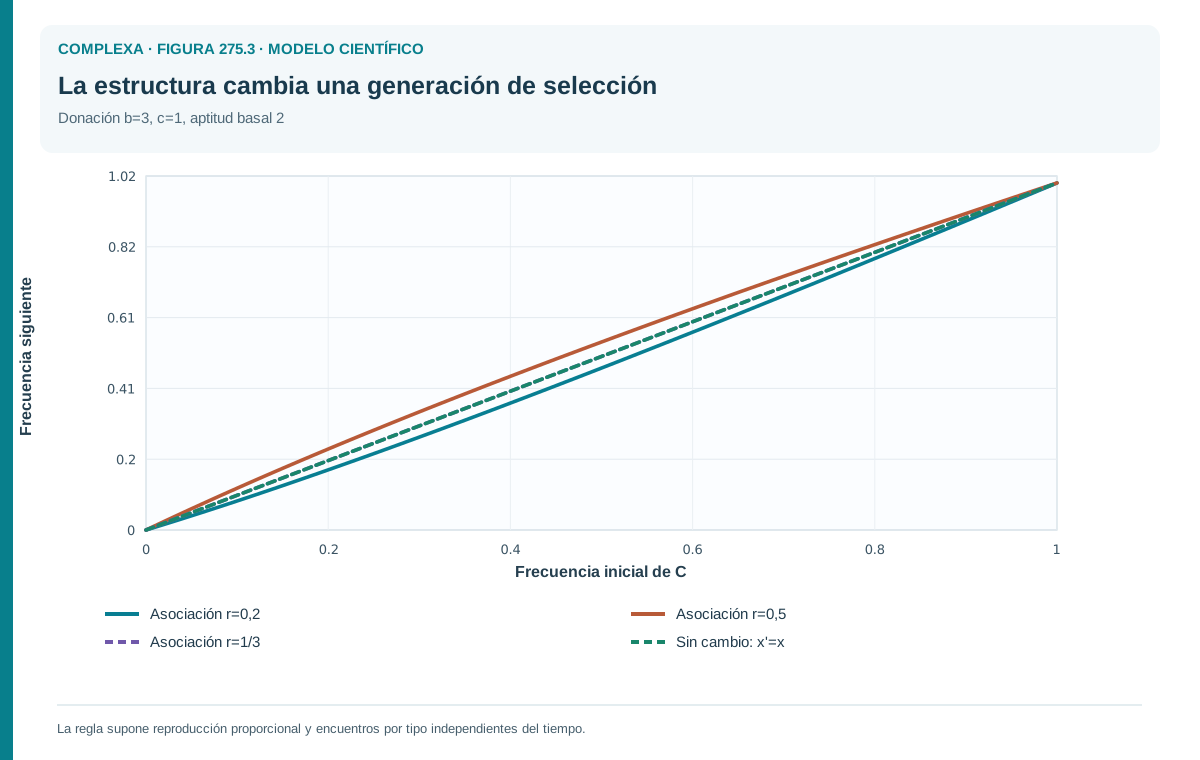
La diferencia es cero coma cinco, como predice tres por un medio menos uno. Añadamos una aptitud basal de dos unidades para traducir los pagos en reproducción proporcional. Las aptitudes son dos coma ocho para C y dos coma tres para D; la aptitud media de la población es dos coma cuatro. La nueva frecuencia cooperadora es
C aumenta desde cero coma dos hasta aproximadamente cero coma doscientos treinta y tres. El costo individual sigue presente, pero los cooperadores reciben ayuda con mayor frecuencia y esa diferencia lo compensa bajo la regla reproductiva especificada.
Reduzcamos ahora r a cero coma dos, manteniendo los demás parámetros. La probabilidad de encontrar C es cero coma treinta y seis para un cooperador y cero coma dieciséis para un no cooperador. Sus pagos son cero coma cero ocho y cero coma cuarenta y ocho. La cooperación tiene una desventaja de cero coma cuatro. Con la misma aptitud basal, su frecuencia pasa de un quinto a trece setenta y cincoavos, aproximadamente cero coma ciento setenta y tres.
En ambos escenarios, la aptitud media inicial es dos coma cuatro. La cantidad total de ayuda producida es la misma porque la frecuencia de C y los valores de b y c no cambian. Sin embargo, el reparto entre tipos es diferente y la dirección de la selección se invierte. Observar solamente la productividad media del conjunto no permitiría distinguirlos.
El umbral de asociación es c dividido por b, aquí un tercio. Si r supera ese valor, C aumenta en el interior bajo estas reglas; si es menor, disminuye. En el umbral exacto, las aptitudes de los tipos son iguales y la selección descrita por el modelo no cambia sus frecuencias. La deriva o la mutación podrían seguir haciéndolo en una población real.
Este ejemplo muestra también que r es una propiedad de la distribución de compañeros, ajena a cualquier recompensa psicológica. Para convertir el cálculo en explicación empírica necesitamos identificar el proceso que produce esa distribución y comprobar que persiste mientras cambian las frecuencias.
4. Qué mide el parentesco relevante
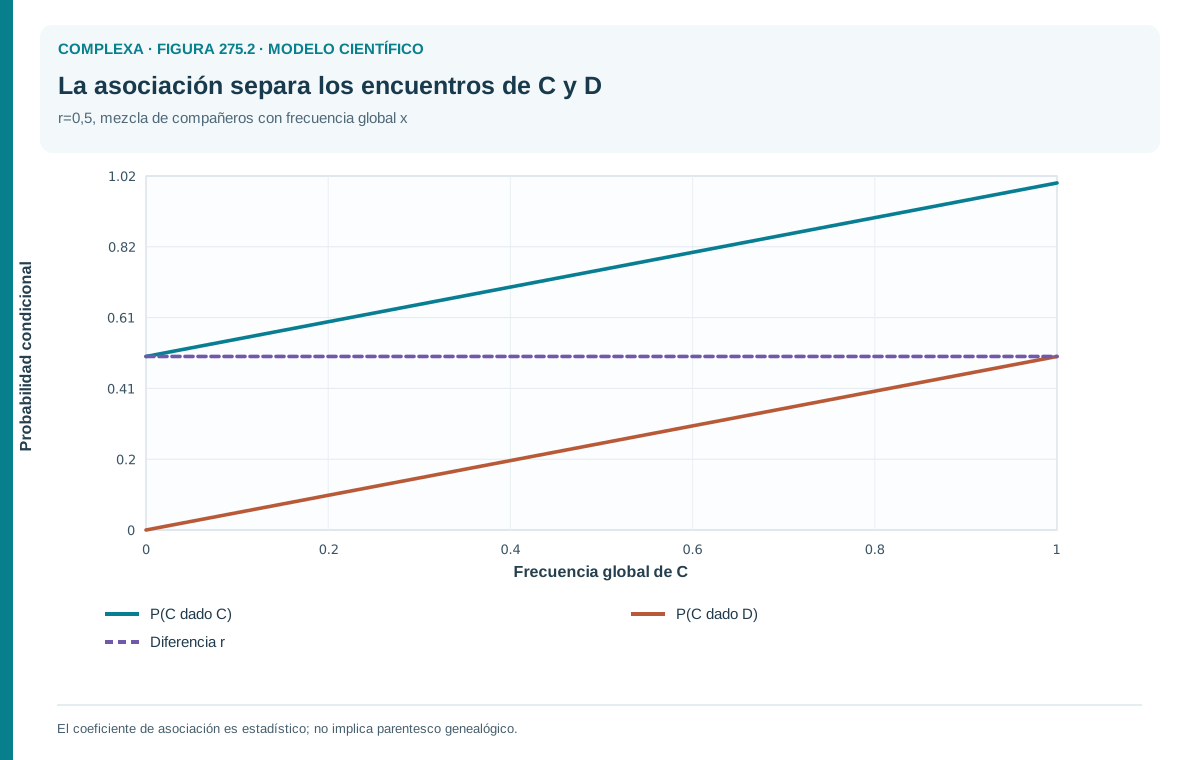
En una descripción genética, el parentesco relevante para una interacción puede expresarse como una asociación entre la variante del actor y la del receptor (relativa a una población de referencia) y representarse mediante una regresión. Si z indica la presencia de una variante en el actor e y la presencia en su compañero, un coeficiente sencillo es la covarianza entre z e y dividida por la varianza de z, cuando esta última es positiva.
Para una variable binaria, ese coeficiente equivale a la diferencia entre la probabilidad de que el compañero porte la variante cuando el actor la porta y la probabilidad correspondiente cuando el actor no la porta. Esta igualdad conecta la formulación estadística con las probabilidades condicionales del modelo anterior, aunque su interpretación genética depende de cómo se definan las variables y de cuál sea la población de referencia.
Los valores genealógicos habituales, como la relación esperada entre hermanos bajo ciertos supuestos de reproducción diploide, son útiles en contextos apropiados, pero no coinciden necesariamente con la asociación relevante para un locus, sistema de herencia o conjunto de competidores dados. La consanguinidad, la estructura poblacional y la forma de transmisión pueden modificar la comparación. Un parentesco promedio resulta insuficiente si la conducta dirige la ayuda selectivamente hacia algunos receptores.
Una dificultad adicional aparece cuando la conducta observada no identifica perfectamente la variante heredable. Dos individuos pueden cooperar por razones ambientales distintas; a su vez, dos portadores de una misma disposición pueden comportarse de manera diferente según sus condiciones. La asociación entre conductas puede ser alta sin que exista la misma asociación genética. En evolución cultural, la variable transmitida podría ser una regla aprendida y requerir otra descripción.
La referencia estadística influye en el resultado incluso en ejemplos simples. En una población finita con un número fijo de cooperadores, si cada individuo elige al azar entre todos los demás, un cooperador tiene un cooperador menos disponible entre sus posibles compañeros. Un no cooperador no elimina ningún C al excluirse a sí mismo. La diferencia entre ambas probabilidades es menos uno dividido por el tamaño poblacional menos uno. Esa pequeña asociación negativa proviene del muestreo sin autorencuentros, sin que intervenga ninguna preferencia activa por tipos distintos.
Por eso un coeficiente debe acompañarse de su definición; dar un valor de r sin especificar qué variables relaciona puede esconder cambios de significado. En el modelo de asociación por tipo, r era un parámetro de formación de parejas. En una regresión genética, resume una distribución producida por reproducción, dispersión y demografía. Pueden coincidir en una aplicación cuidadosamente construida, pero la coincidencia necesita demostración.
5. Costos, beneficios y consecuencias reproductivas
La desigualdad de costo y beneficio solo es informativa si sus términos corresponden a consecuencias comparables. Un costo energético y un beneficio en número de descendientes no pueden sumarse directamente sin un modelo que conecte ambas magnitudes. Del mismo modo, una ventaja de crecimiento temprano puede quedar compensada por competencia posterior. El ciclo de vida determina en qué escala deben evaluarse los efectos.
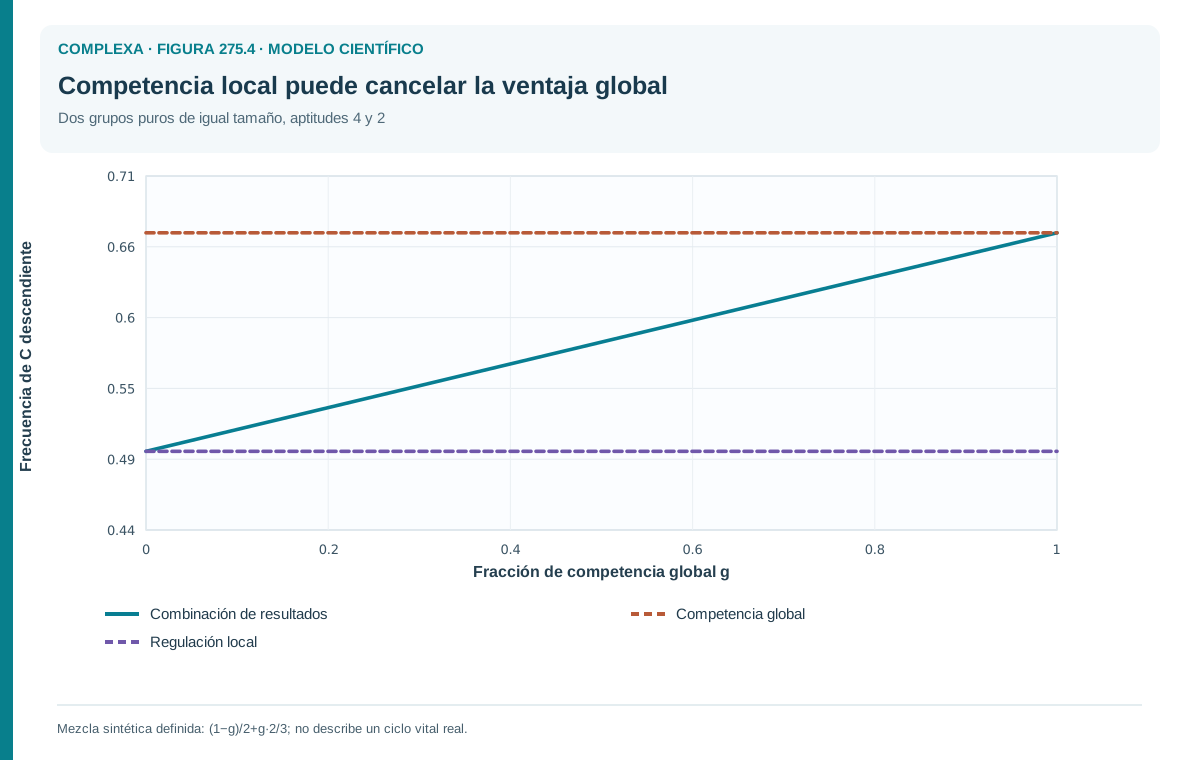
Podemos verlo con dos grupos del mismo tamaño, uno formado enteramente por cooperadores y otro por no cooperadores. Supongamos que cada cooperador obtiene un beneficio neto de dos unidades y que todos tienen una aptitud basal de dos. Los miembros del primer grupo producen, en promedio, cuatro unidades de descendencia potencial; los del segundo producen dos.
Si toda esa descendencia entra en una competencia global común, el grupo cooperador contribuye con el doble. Como ambos grupos parten con igual número de individuos, la frecuencia global de C entre los descendientes potenciales será dos tercios.
Imaginemos ahora que cada grupo puede aportar exactamente el mismo número de adultos nuevos, con independencia de cuántos descendientes produzca. Si el exceso se elimina mediante regulación local, ambos grupos contribuyen por igual y la frecuencia global de C permanece en un medio mientras los grupos sigan homogéneos.
El contraste muestra que el destino de los beneficios depende de quién compite por las oportunidades adicionales, sin implicar que la competencia local anule siempre la selección de cooperación. El modelo clásico de Taylor sobre poblaciones con dispersión limitada expuso un caso en el que la mayor interacción entre parientes se compensaba con mayor competencia entre ellos [3]. Esa cancelación corresponde a sus condiciones demográficas.
En grupos mezclados puede persistir, además, una ventaja local de no contribuir. Si los beneficios se comparten y el costo recae en quien actúa, un D puede obtener más descendencia que sus vecinos C dentro del mismo grupo. Para predecir el cambio global habrá que combinar esa diferencia interna con la contribución diferencial de los grupos. El capítulo sobre selección multinivel desarrollará esa contabilidad de manera explícita.
La lección operativa es seguir los efectos hasta la etapa pertinente. Contar producción sin contar supervivencia, dispersión y reemplazo puede atribuir a la cooperación una ventaja que desaparece después. También puede ocultar beneficios que solo se expresan en otra etapa.
6. Cómo se forma y cuánto cuesta la asociación
La asociación positiva puede surgir sin reconocimiento individual. Si los descendientes permanecen cerca del lugar donde nacieron, los vecinos pueden parecerse por ascendencia. Si las estrategias se transmiten localmente, regiones enteras pueden compartir una conducta. En esos casos, la estructura de encuentros, consecuencia de la dispersión y la transmisión, puede cambiar cuando aumenta la movilidad.
Otra posibilidad es la elección de compañeros. Un individuo puede abandonar relaciones poco beneficiosas o preferir colaboradores con conductas observables. Esa elección puede generar encuentros cooperativos sin parentesco cercano, siempre que haya información, oportunidades de cambio y alguna forma de evaluar a los candidatos. Si todos imitan señales fáciles de falsificar, la asociación obtenida puede ser menor que la esperada.
Encontrar compañeros también tiene costos. En una extensión sencilla del modelo, supongamos que los cooperadores pagan un costo adicional d para mantener el sistema que los reúne, mientras los no cooperadores no lo pagan. La diferencia de pagos pasa entonces a ser br menos c menos d y la condición favorable es br mayor que c más d. Una asociación suficiente cuando era gratuita puede dejar de compensar al incorporar su mantenimiento.
Con b igual a tres, c igual a uno y r igual a un medio, el margen favorable original era cero coma cinco. Si el costo adicional es cero coma dos, queda un margen positivo de cero coma tres; si es cero coma seis, la diferencia se vuelve negativa. El cálculo indica qué costo debe medirse para evaluar si la elección de compañeros es viable.
Otros costos recaen sobre ambos tipos o sobre una institución externa y no tienen por qué añadirse al mismo término. Si un gasto afecta por igual a los dos tipos, puede modificar el crecimiento absoluto sin modificar la diferencia de pagos, aunque sí altere la intensidad de selección bajo ciertas funciones de aptitud. La asignación del costo debe corresponder al mecanismo real.
Una señal de pertenencia no garantiza cooperación futura. Si los individuos pueden adoptar la señal sin realizar la conducta costosa, la asociación por señal puede separarse de la asociación por contribución. El modelo necesitaría al menos una estrategia adicional que explote esa discrepancia. Examinar solo cooperadores reconocibles y no cooperadores sin señal podría sobreestimar la estabilidad.
Estas extensiones muestran que la formación de grupos es parte de la explicación. Además de postular que los cooperadores se encuentran entre sí, hay que establecer cómo ocurre, cuánto dura y qué estrategias alternativas pueden explotar el procedimiento.
7. Qué añade una red de interacciones
En una red, los nodos son individuos y los enlaces son relaciones posibles. La red puede indicar quién juega con quién, quién compite por un lugar o quién imita a quién. Estas tres redes pueden coincidir, pero no tienen por qué hacerlo. Una persona puede trabajar con un conjunto de compañeros, comparar sus resultados con otro y aprender de un tercero. Colapsar esas relaciones en una sola red es un supuesto.
El grado de un nodo es su número de vecinos. En una red regular todos tienen el mismo grado, lo que facilita el análisis. Sin embargo, conocer el grado medio no determina toda la estructura. Dos redes pueden compartirlo y diferir en agrupamientos, cuellos de botella o distribución de distancias. Esas propiedades pueden cambiar la dispersión de estrategias y la composición local de los encuentros.
También debemos especificar el orden de actualización. En un proceso de muerte y nacimiento, primero queda un lugar vacío y luego sus vecinos compiten para ocuparlo. En un proceso de nacimiento y muerte, primero se elige quién se reproduce y después dónde reemplaza a otro individuo. Aunque los pagos sean iguales, los candidatos que compiten y las correlaciones pertinentes pueden ser diferentes.
Ohtsuki y colaboradores estudiaron una regla aproximada según la cual la cooperación en un juego de donación es favorecida cuando b dividido por c supera el grado k [4]. Su derivación para redes regulares supone selección débil, actualización de muerte seguida de nacimiento y una población grande en relación con el grado. El criterio compara la fijación con la neutralidad. No es una ley exacta para cualquier red o regla de actualización.
Esta precisión evita una extrapolación tentadora, la de concluir que reducir contactos siempre aumenta la cooperación. Una red real puede cambiar a la vez el acceso a recursos, la información y las oportunidades de reemplazo. Una interacción intensa con pocos vecinos, por otra parte, no equivale necesariamente a varias interacciones independientes de igual peso. Para aplicar una condición derivada debemos conservar el significado de sus parámetros.
En una simulación, las decisiones técnicas deben registrarse. ¿Se suman pagos sobre todos los vecinos o se promedian? ¿Se actualiza un nodo por vez o todos simultáneamente? ¿La red permanece fija? ¿Los nuevos individuos heredan la posición? Cada elección puede afectar la comparación de aptitudes y el resultado.
La red indica quién puede influir en quién. La explicación evolutiva requiere, además, una regla que convierta esas interacciones en cambios de composición.
8. Asociación observada y explicación causal
Supongamos que encontramos más cooperadores alrededor de cooperadores que alrededor de no cooperadores. Esa observación establece una asociación, pero todavía admite varias explicaciones. Los cooperadores pueden elegir compañeros similares. También pueden compartir un ambiente que favorece la cooperación, o haber aprendido de una misma fuente. Incluso puede ocurrir que el grupo se forme primero y que la cooperación aumente después.
Para distinguir esas posibilidades necesitamos información temporal o intervenciones. Si observamos primero la composición y luego el cambio de conducta, podemos preguntar qué precede a qué. Si reorganizamos compañeros al azar, podemos evaluar cuánto depende la cooperación de la asociación previa. Si modificamos la dispersión manteniendo otros factores aproximadamente constantes, podemos estudiar una vía concreta de formación de estructura.
La interpretación exige cuidado, porque reorganizar grupos puede alterar, además del parentesco, la familiaridad, la confianza, la competencia y el acceso a recursos. Un efecto posterior no identifica automáticamente cuál de esas variables fue responsable. El diseño debe medir o controlar las alternativas relevantes para la pregunta, sin pretender que una sola manipulación elimine toda ambigüedad.
En sistemas genéticos, comparar marcadores neutrales puede ayudar a caracterizar estructura poblacional, pero la relación con una conducta específica depende de su arquitectura hereditaria y de la escala espacial. En sistemas culturales, la semejanza de opiniones o prácticas puede deberse a aprendizaje compartido sin que medie transmisión biológica. Usar la misma palabra, «parentesco», para ambos procesos puede ocultar diferencias importantes.
También conviene estimar la asociación en la escala de los beneficios. Si una sustancia se difunde solamente unos pocos diámetros celulares, el parentesco promedio de toda la colonia puede ser una medida demasiado amplia. Si una acción beneficia a varios grupos conectados, el parentesco entre vecinos inmediatos puede ser insuficiente. El receptor efectivo debe definirse a partir del mecanismo material de la interacción.
Por último, el cambio de frecuencia debe relacionarse con reproducción o adopción. Una asociación positiva puede existir sin producir una ventaja neta, por ejemplo cuando la competencia local absorbe los beneficios. Medir simultáneamente composición de compañeros, costos y contribución final permite poner a prueba una explicación más completa.
La evidencia más convincente combina estas piezas en predicciones contrastables. Su objetivo es estimar los componentes de la desigualdad de forma que anticipen cambios bajo condiciones nuevas, algo que no consigue un coeficiente ajustado después de observar el resultado para que la desigualdad se cumpla.
9. Límites de una condición escalar
La expresión br mayor que c resume un modelo aditivo. En muchas interacciones, el beneficio de una contribución depende de cuántos otros contribuyan. Puede existir un umbral para activar una tarea o una saturación cuando el recurso ya es abundante. Entonces un único beneficio constante b puede no describir todos los estados de la población.
Imaginemos que una tarea produce beneficio solamente si cooperan dos participantes. Ayudar a un cooperador y ayudar a un no cooperador tienen consecuencias diferentes. La asociación sigue siendo relevante, pero aparece una interacción entre la conducta del actor y la del receptor. Para predecir la selección habrá que incluir ese término o usar una función de pagos que lo represente explícitamente.
Un coeficiente de regresión puede resumir relaciones incluso cuando el sistema es más complejo, pero sus valores pueden depender de la frecuencia y del ambiente. Una desigualdad expresada con coeficientes ajustados en cada estado puede ser una identidad descriptiva útil aunque, tomada aisladamente, no aporte un mecanismo causal independiente. La interpretación debe distinguir entre descomponer un cambio observado y predecirlo a partir de procesos medidos.
La heterogeneidad de receptores añade otra dificultad. Un actor puede beneficiar a varios individuos con asociaciones distintas y con contribuciones reproductivas diferentes. Sumar beneficios ponderados puede ser adecuado bajo ciertos supuestos, pero no equivale a multiplicar el beneficio total por un parentesco promedio elegido sin ponderación. El modo de agregar debe corresponder a quién recibe cada efecto.
También pueden aparecer clases de edad o etapas reproductivas. Ayudar a un individuo que tendrá muchas oportunidades futuras puede tener una consecuencia diferente de ayudar a otro con pocas, aunque el aumento inmediato de supervivencia sea igual. En esos modelos se necesitan ponderaciones apropiadas para comparar contribuciones. El principio de contabilizar consecuencias permanece, pero la fórmula elemental requiere ampliación.
En aplicaciones humanas, la asociación entre personas semejantes puede favorecer cooperación dentro de un grupo y simultáneamente perjudicar relaciones entre grupos. Una medida de productividad interna no recoge necesariamente las consecuencias externas. La teoría evolutiva no convierte la asociación en una recomendación social universal. Cualquier evaluación normativa necesita explicitar quién se beneficia, quién soporta costos y qué objetivos se consideran.
Reconocer estos límites permite conservar la utilidad del modelo sencillo, cuya función es mostrar cómo la distribución de compañeros puede invertir una comparación selectiva. Cuando las condiciones cambian, hay que ampliar la descripción pertinente y evitar que la misma desigualdad se mantenga mediante redefiniciones opacas de sus términos.
10. Seguir el beneficio hasta su transmisión
La asociación positiva es una vía concreta para que una conducta costosa aumente en frecuencia. En el modelo de encuentros por tipo, los cooperadores reciben ayuda con mayor probabilidad y su ventaja depende de br menos c. El cálculo permite identificar un umbral y predecir el cambio de una generación. La explicación completa, sin embargo, requiere conocer cómo se forma esa asociación y qué ocurre con los beneficios después de la interacción.
El parentesco genético puede producir semejanza entre actores y receptores sin reconocimiento consciente. La elección de compañeros y la transmisión local pueden producir otras formas de semejanza. Estos mecanismos no son intercambiables en todos sus efectos. Una modificación de la dispersión, una señal falsa o un costo de búsqueda puede afectar a uno y dejar casi intacto a otro.
La competencia determina cuánto del beneficio se convierte en contribución adicional. Dos grupos igualmente representados pueden producir descendencia en cantidades diferentes y, aun así, aportar el mismo número de adultos si la regulación es estrictamente local. Por eso el ciclo de vida debe acompañar a cualquier cálculo de costos, beneficios y parentesco.
Las redes permiten representar restricciones de encuentro y reemplazo, pero sus resultados dependen de la actualización y de la escala de selección. Un umbral obtenido para una población grande con selección débil no debe presentarse como predicción exacta de una red pequeña sometida a cambios intensos. La precisión de los supuestos es parte del contenido del resultado.
En la práctica, una buena explicación conectará una distribución de compañeros medida, efectos de conducta estimados y una regla de transmisión contrastable. También indicará qué observación la pondría en dificultad. Si al reorganizar compañeros desaparece la ventaja cooperadora, la asociación gana apoyo como mecanismo. Si la ventaja permanece, habrá que investigar beneficios privados, repetición u otras consecuencias omitidas.
El siguiente capítulo estudiará una de esas posibilidades, la de que las consecuencias de ayudar dependan de encuentros futuros y de la información que circula sobre la conducta. La cooperación puede sostenerse porque los compañeros están asociados en el presente o porque una acción modifica oportunidades posteriores. Separar ambas vías permitirá entender cuándo se complementan y cuándo una de ellas resulta suficiente.
Referencias
- Hamilton, W. D. (1964). The genetical evolution of social behaviour. I. Journal of Theoretical Biology, 7(1), 1–16. https://doi.org/10.1016/0022-5193(64)90038-4
- Hamilton, W. D. (1964). The genetical evolution of social behaviour. II. Journal of Theoretical Biology, 7(1), 17–52. https://doi.org/10.1016/0022-5193(64)90039-6
- Taylor, P. D. (1992). Altruism in viscous populations — an inclusive fitness model. Evolutionary Ecology, 6, 352–356. https://doi.org/10.1007/BF02270971
- Ohtsuki, H., Hauert, C., Lieberman, E., y Nowak, M. A. (2006). A simple rule for the evolution of cooperation on graphs and social networks. Nature, 441, 502–505. https://doi.org/10.1038/nature04605