Módulo 28. Juegos evolutivos y cooperación
1. El cambio puede tener signos distintos según la escala
Una conducta puede disminuir dentro de cada grupo y aumentar en la población total. Para que eso ocurra, los grupos donde esa conducta es inicialmente más frecuente deben producir una fracción suficientemente grande de la población posterior. El cambio global combina modificaciones internas con cambios en el peso relativo de los grupos; ignorar cualquiera de las dos partes puede invertir la conclusión.
Imaginemos dos comunidades de microorganismos. En ambas, producir una molécula compartida tiene un costo, de modo que los no productores crecen más rápido que sus vecinos productores. Sin embargo, la comunidad que empieza con más productores puede disponer de más recurso y generar muchos más descendientes. Al reunir las comunidades, la contribución de la más productiva puede aumentar la proporción global de productores, aunque esa proporción haya bajado dentro de ella.
Esta posibilidad, que se sigue de la reproducción diferencial y de la ponderación, no exige que los grupos tengan intenciones ni que la selección anticipe beneficios colectivos. Convertirla en una explicación evolutiva sostenida exige saber, además, cómo se forman los grupos, cómo conservan diferencias y cómo contribuyen a generaciones posteriores.
La ecuación de Price es una contabilidad general del cambio de un carácter que permite separar la asociación entre carácter y contribución descendiente de los cambios ocurridos durante la transmisión. Su extensión a particiones de la población descompone la asociación total en componentes dentro y entre grupos [1]. Para saber qué mecanismo causal produce cada componente hace falta información que la identidad matemática no contiene.
El término selección multinivel se usa para analizar procesos en los que esas escalas tienen relevancia biológica. En algunos sistemas, los grupos se dividen y originan grupos descendientes; en otros, solo envían individuos en cantidades distintas a una población común. Las dos situaciones pueden requerir medidas de contribución diferentes, que debemos definir antes de interpretar una covarianza.
Este capítulo desarrollará un ejemplo completo de una generación, con números que permitan comprobar cada término. Después relacionaremos la descomposición con la asociación entre cooperadores y examinaremos el papel del ciclo de vida. El propósito será distinguir una identidad de contabilidad, una tendencia selectiva y una explicación de mantenimiento a largo plazo, piezas complementarias que no se sustituyen automáticamente unas a otras.
2. De los descendientes a la identidad de Price
Consideremos una población inicial de N individuos. El individuo i tiene un valor de carácter z subíndice i y contribuye w subíndice i descendientes a la población posterior; el promedio del carácter entre sus descendientes es z prima subíndice i. La media posterior se calcula ponderando cada familia por su tamaño
Si un individuo no deja descendientes, su contribución a la suma es cero; el valor de su media descendiente puede definirse arbitrariamente para esa operación.
Escribamos el cambio durante la transmisión como delta z subíndice i igual a z prima subíndice i menos z subíndice i. Al sustituir en la expresión anterior y restar la media inicial obtenemos
La covarianza se calcula sobre los individuos iniciales con pesos uniformes. La aptitud media, w barra, es el promedio de sus contribuciones descendientes. Esta derivación es una identidad algebraica que no presupone que el carácter sea genético, que aumente la aptitud media o que la selección favorezca un objetivo colectivo.
El primer término mide si los individuos con mayor valor del carácter dejan más descendientes. El segundo recoge diferencias entre el carácter del progenitor y el promedio de sus descendientes. Según el sistema, pueden contribuir a ese término la mutación, la segregación, el aprendizaje o los cambios de medición. Si la transmisión conserva exactamente el carácter, el segundo término desaparece.
Para un carácter binario que vale uno en cooperadores y cero en no cooperadores, la media es la frecuencia cooperadora. Una covarianza positiva entre w y z indica que, en el conjunto de la población, los cooperadores dejan en promedio más descendencia. Esto puede ocurrir incluso si dentro de cada grupo contribuyen menos que los no cooperadores del mismo grupo.
Sin información sobre w y sobre la transmisión, la identidad no permite predecir el cambio. Decir que una conducta aumenta porque tiene covarianza positiva con la descendencia describe correctamente el balance, pero deja abierta la causa de esa covarianza. Un modelo de interacciones puede especificar cómo depende w de la conducta propia, de la composición del grupo y del ambiente.
También debemos distinguir contribuciones esperadas y realizadas. Un modelo determinista puede asignar números fraccionarios de descendientes como expectativas; una población finita produce cantidades enteras y fluctuaciones. La identidad se aplica a los datos realizados, mientras que una ecuación para expectativas puede tener que considerar correlaciones entre numeradores y denominadores. Aquí usaremos una generación determinista de contribuciones esperadas definidas explícitamente.
3. Separar los cambios dentro y entre grupos
Dividamos la población inicial en grupos g. Cada grupo contiene una fracción f subíndice g de los individuos, tiene carácter medio z barra subíndice g y contribución media w barra subíndice g. Las medias entre grupos deben ponderarse por f subíndice g; dar el mismo peso a grupos de tamaños diferentes exige una justificación.
La ley de covarianza total permite escribir
El primer término relaciona la composición de los grupos con su contribución media; el segundo promedia las asociaciones entre individuos dentro de cada grupo. Las dos partes suman exactamente la asociación total cuando se usan los mismos pesos y definiciones.
Si el carácter se transmite fielmente, podemos expresar también el término interno mediante el cambio de frecuencia de cada grupo, porque la covarianza interna del grupo g es su contribución media multiplicada por el cambio de su carácter medio. Así,
La ponderación por productividad es indispensable. Un cambio de diez puntos porcentuales en un grupo que deja pocos descendientes no pesa globalmente lo mismo que en otro que deja muchos.
La descomposición depende de la partición elegida. Podemos agrupar individuos por colonia, por vecindario o por cualquier etiqueta sin que la identidad deje de ser verdadera, pero no toda partición tiene el mismo significado causal. Para interpretar el término entre grupos como parte de un proceso biológico debemos justificar que esos grupos son unidades relevantes de interacción, competencia o reproducción.
La descomposición tampoco supone que las fuerzas dentro y entre grupos sean independientes. Una conducta puede aumentar la productividad grupal y modificar a la vez la ventaja de los individuos dentro del grupo. Separar ambos términos algebraicamente ayuda a comprender el balance, pero no demuestra que puedan intervenirse por separado.
Un error frecuente consiste en comparar el promedio simple de las frecuencias finales de los grupos con la frecuencia global final. Si los grupos crecieron de manera diferente, ese promedio simple responde a otra pregunta. La frecuencia global debe calcularse sumando los descendientes cooperadores y dividiendo por el total de descendientes.
El ejemplo siguiente, verificable por conteo directo y con la ecuación descompuesta, muestra cómo el cambio de los pesos puede superar una reducción interna en todos los grupos.
4. Dos grupos y una generación calculada
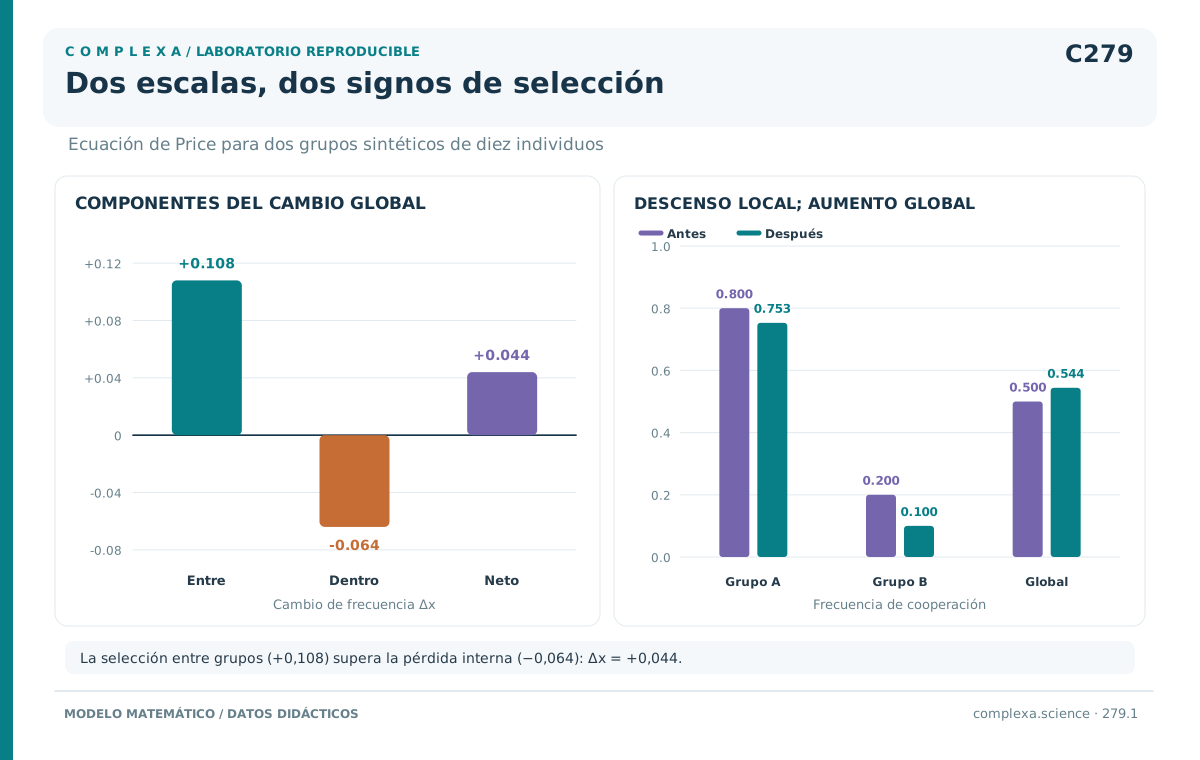
Tomemos dos grupos iniciales de diez individuos. El grupo A contiene ocho cooperadores y dos no cooperadores; el grupo B, dos cooperadores y ocho no cooperadores. La frecuencia global inicial de C es un medio. Definamos la contribución esperada de cada individuo mediante
donde x subíndice g es la frecuencia cooperadora del grupo y z vale uno para C y cero para D. La composición cooperadora aumenta la contribución de todos, mientras que cooperar tiene un costo individual de una unidad.
En A, x vale cero coma ocho. Cada C tiene tres coma dos descendientes esperados y cada D, cuatro coma dos. La contribución total del grupo es ocho por tres coma dos más dos por cuatro coma dos, igual a treinta y cuatro. De los cooperadores proceden veinticinco coma seis, de modo que su frecuencia interna final es veinticinco coma seis dividido por treinta y cuatro, aproximadamente cero coma setecientos cincuenta y tres.
En B, x vale cero coma dos. Cada C deja cero coma ocho y cada D, uno coma ocho. El grupo produce dieciséis descendientes esperados, de los cuales uno coma seis proceden de C, así que su frecuencia cooperadora final es cero coma uno. Los cooperadores disminuyen dentro de ambos grupos.
Sin embargo, la frecuencia global final es
La cooperación aumenta respecto del cero coma cinco inicial. El grupo inicialmente más cooperador pasa de la mitad de la población a treinta y cuatro cincuentavos, el sesenta y ocho por ciento. Ese cambio de peso supera las pérdidas internas.
Calculemos la descomposición. Las contribuciones medias de A y B son tres coma cuatro y uno coma seis, con una media global de dos coma cinco. La covarianza entre contribución media y frecuencia grupal es cero coma veintisiete. Dentro de cada grupo, la covarianza entre w y z es menos cero coma dieciséis; como ambos tienen el mismo tamaño inicial, el promedio interno también es menos cero coma dieciséis.
La covarianza total es cero coma once. Al dividirla por la contribución media dos coma cinco se obtiene el cambio global cero coma cero cuarenta y cuatro. En el cambio de frecuencia, el componente entre grupos vale cero coma ciento ocho y el interno, menos cero coma cero sesenta y cuatro. Su suma coincide con el conteo directo.
La selección individual sigue actuando dentro de los grupos y favorece localmente a D. El aumento global ocurre porque la descendencia de los distintos grupos entra con pesos desiguales en la población posterior.
5. La variación entre grupos determina el balance
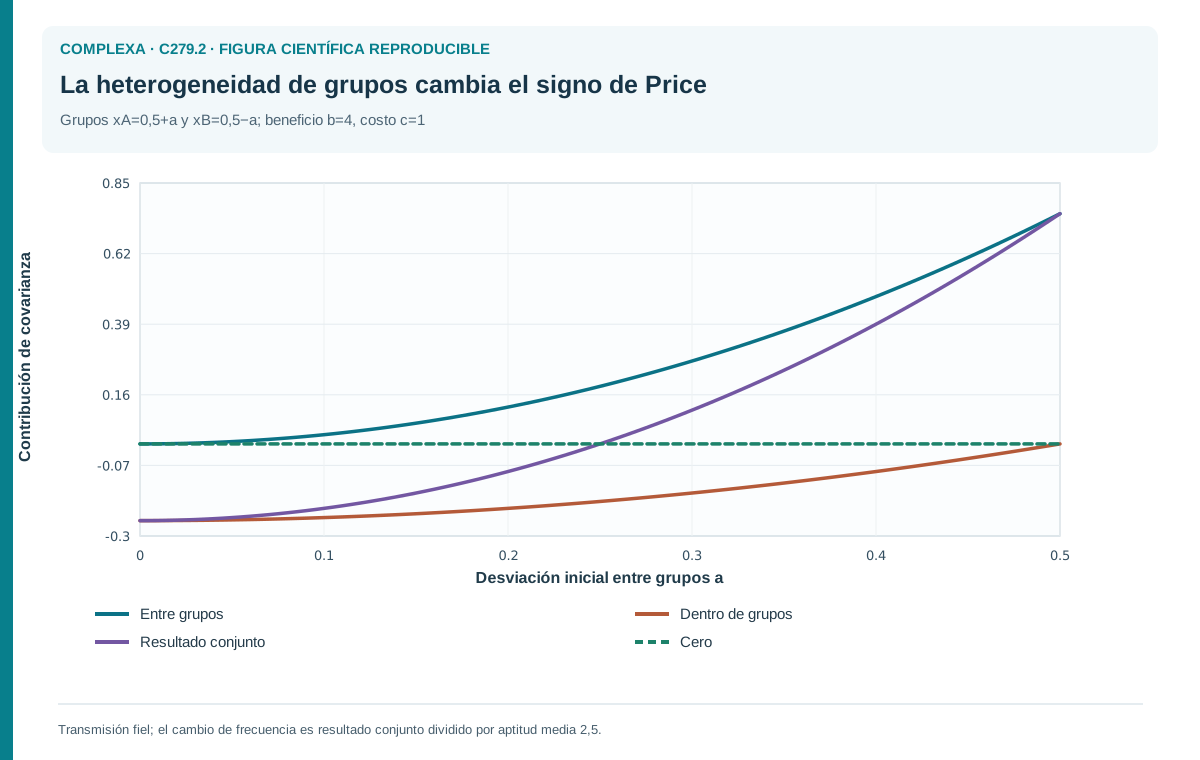
El ejemplo puede generalizarse. Supongamos con transmisión fiel y grupos de composición inicial definida. La contribución media del grupo es , suma del componente basal y del efecto neto de la composición cooperadora. Por ello, la covarianza entre grupos es el producto de b menos c por la varianza de sus frecuencias.
Dentro de cada grupo, x subíndice g es constante y la única diferencia entre C y D es el costo c, de modo que la covarianza interna es menos c por la varianza del carácter binario dentro del grupo, que vale x subíndice g por uno menos x subíndice g. El balance selectivo resulta
Según esta expresión, el aumento global exige en este modelo que la variación entre grupos, ponderada por su efecto productivo, supere la pérdida interna en los grupos mezclados. Si todos los grupos tienen exactamente la misma composición, el primer término es cero y la cooperación disminuye cuando hay variación interna y c es positivo.
En nuestro ejemplo, las frecuencias cero coma ocho y cero coma dos tienen media un medio y varianza entre grupos cero coma cero nueve; la varianza interna media es cero coma dieciséis. Con b igual a cuatro y c igual a uno, el término entre grupos es tres por cero coma cero nueve, igual a cero coma veintisiete. El término interno es menos cero coma dieciséis.
La varianza total del carácter binario, cero coma veinticinco, se descompone en cero coma cero nueve entre grupos y cero coma dieciséis dentro de ellos. Esa identidad permite comprobar que no contamos dos veces la misma variación. Cambiar la formación de grupos redistribuye la variación entre ambas escalas.
Si formamos al azar grupos de diez a partir de una población grande con frecuencia cooperadora un medio, la varianza esperada de las frecuencias grupales es cero coma cero veinticinco y la varianza interna media esperada, cero coma doscientos veinticinco. Con el mismo modelo de productividad, el balance de covarianzas es menos cero coma quince, por lo que la cooperación disminuye.
La comparación, que supone suficientes grupos para representar esas medias de formación aleatoria y una generación con las reglas dadas, muestra que la variación entre grupos del ejemplo inicial era una condición sustantiva y que volver a mezclar a los individuos puede destruirla. De ella no se sigue que cualquier agrupamiento aleatorio impida la cooperación.
6. Conectar la descomposición con asociación
La misma generación puede describirse mediante la asociación entre el carácter individual y la composición de su grupo. Como el promedio de z dentro de cada grupo es x subíndice g, la covarianza entre z y x subíndice g coincide con la varianza entre grupos de x. Por tanto,
Si la varianza del carácter es positiva, definamos r subíndice grupo como esa covarianza dividida por la varianza de z. La condición de aumento es b por r subíndice grupo mayor que c.
En el ejemplo, r subíndice grupo es cero coma cero nueve dividido por cero coma veinticinco, igual a cero coma treinta y seis. Con b igual a cuatro, el producto es uno coma cuarenta y cuatro, mayor que el costo uno. La diferencia, cero coma cuarenta y cuatro, multiplicada por la varianza cero coma veinticinco, da la covarianza total cero coma once.
Esta formulación y la descomposición entre y dentro de grupos describen exactamente el mismo balance del modelo, de modo que no deben sumarse como si fueran dos mecanismos. Una organiza la contabilidad por escalas; la otra, por la asociación entre el actor y su ambiente social. Su equivalencia depende aquí de las variables y de la función lineal de contribución utilizadas.
El coeficiente r subíndice grupo incluye al propio actor dentro de x subíndice g. Por eso no debe identificarse sin ajustes con el parentesco entre el actor y otro miembro del grupo. Para grupos de diez, la frecuencia cooperadora entre los otros nueve es diez x subíndice g menos z, dividido por nueve.
Al reescribir la contribución en función de esa frecuencia de compañeros, el efecto directo del carácter pasa a ser menos cero coma seis y el beneficio procedente de los demás tiene coeficiente tres coma seis. La asociación con los compañeros es trece cuarenta y cincoavos, aproximadamente cero coma doscientos ochenta y nueve. Tres coma seis por esa asociación menos cero coma seis vuelve a dar cero coma cuarenta y cuatro.
Pasar del promedio grupal que incluye al actor al promedio de compañeros modifica tanto la asociación como los coeficientes de costo y beneficio. Si se cambia solo uno de esos elementos, la condición deja de representar el mismo modelo.
Sustituir nombres en una desigualdad no resuelve las controversias terminológicas. Para eso hay que mostrar qué cantidades se miden, cómo se forman los grupos y qué comparación causal se pretende hacer. Una equivalencia algebraica puede aclarar relaciones entre descripciones sin eliminar las diferencias entre modelos biológicos más amplios.
7. El ciclo de vida puede conservar o borrar la ventaja
Una generación favorable no demuestra un mantenimiento indefinido. Después de mezclar los descendientes, la formación de nuevos grupos puede producir menos variación entre ellos. Si los cooperadores pierden dentro de cada grupo y no hay un mecanismo que regenere la asociación, la ventaja global inicial puede agotarse. La trayectoria de varias generaciones necesita una regla de formación y reproducción de grupos.
La dispersión limitada puede conservar la semejanza, pero también intensificar la competencia local. La fragmentación de grupos puede transmitir composiciones parecidas a los grupos descendientes; los cuellos de botella pueden aumentar la variación por muestreo. Cada proceso cambia de manera distinta la relación entre composición, productividad y representación futura.
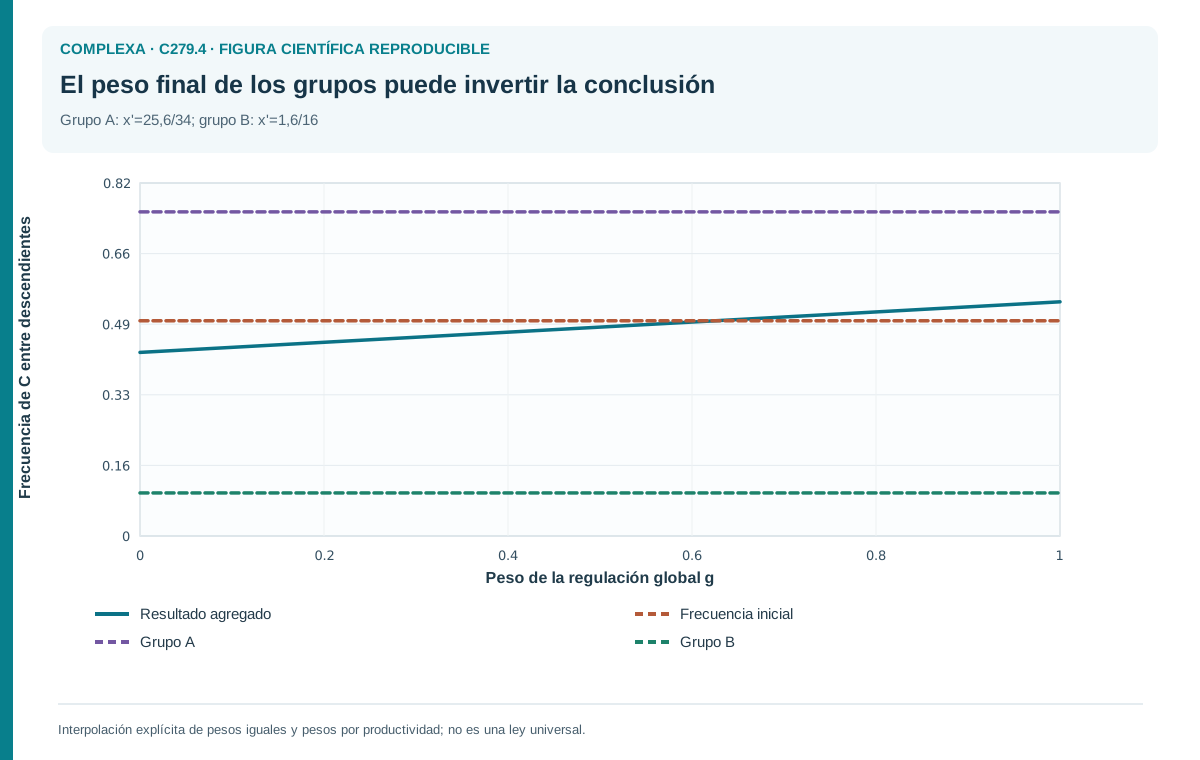
También importa cómo se regula el tamaño final. Si en el ejemplo anterior obligamos a ambos grupos a dejar exactamente el mismo número de individuos a la siguiente generación, la frecuencia global será el promedio simple de sus frecuencias internas finales, aproximadamente cero coma cuatrocientos veintiséis, menor que la frecuencia inicial de un medio. La regla de contribución igualitaria elimina la ventaja de productividad entre grupos.
Este resultado, propio de la etapa y del modelo considerados, no implica que igualar tamaños siempre perjudique la cooperación. Una regulación diferente podría cambiar la competencia, la supervivencia o la formación de grupos antes de la interacción. La contribución al conjunto posterior debe derivarse del ciclo de vida completo, del que el crecimiento local es solo una parte.
Los modelos de selección multinivel, como el de Traulsen y Nowak, especifican procesos de reproducción individual y de grupos para estudiar las condiciones de la cooperación [2]. Sus umbrales dependen de esa estructura y no pueden trasladarse a cualquier sistema con grupos visibles. Un grupo puede ser una unidad de interacción sin reproducirse como unidad.
La duración de la fase interna también afecta el balance. Si los no cooperadores tienen ventaja dentro de cada grupo, los períodos largos antes de la dispersión pueden reducir la proporción de cooperadores y modificar la productividad; los períodos demasiado cortos pueden limitar la expresión de diferencias productivas. La relación entre escalas temporales debe estudiarse antes de darla por favorable.
Una explicación sostenida necesita cerrar el ciclo, que va de los individuos a los grupos, de las interacciones a la descendencia y de la descendencia a nuevos grupos. La ecuación de Price puede describir cada paso, pero la predicción de varios ciclos requiere reglas que conecten esos estados sucesivos.
8. Transmisión imperfecta y evolución cultural
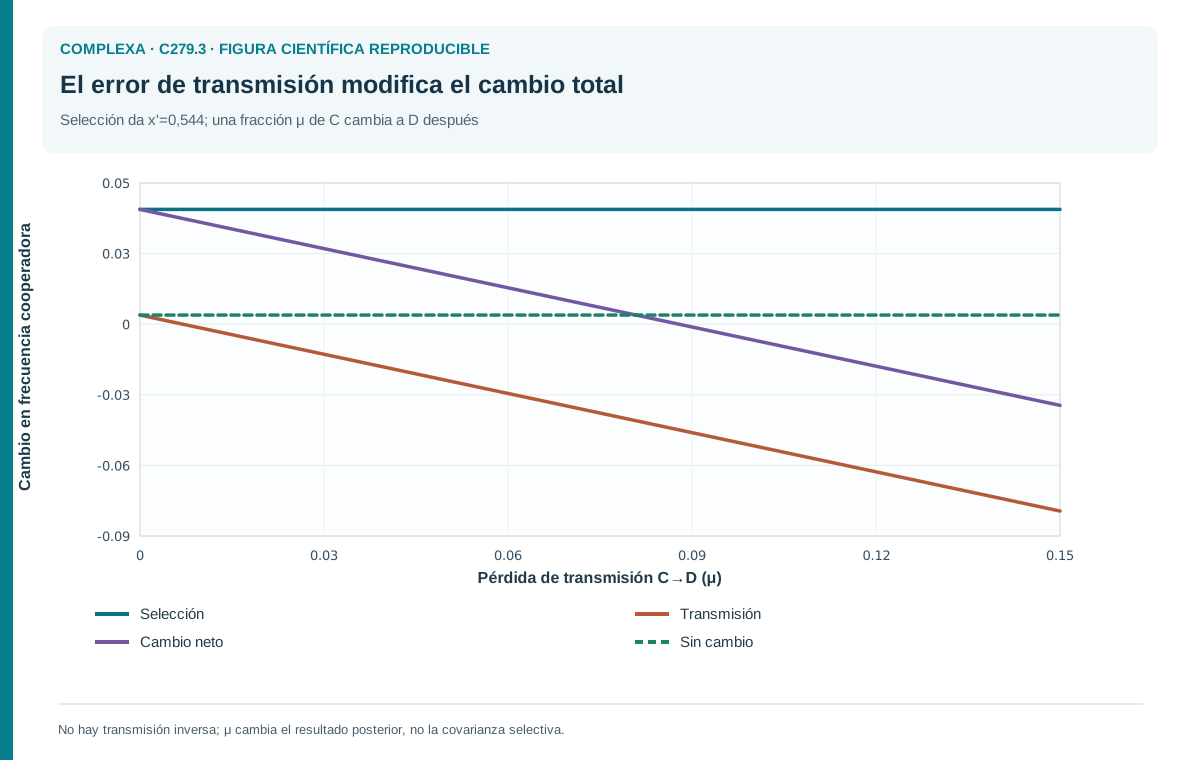
Hasta ahora supusimos que cada descendiente conserva el tipo de su progenitor. Si parte de los descendientes de C se convierte en D, el aumento por selección puede reducirse. La ecuación completa recoge ese efecto en el término de transmisión; omitirlo puede llevar a atribuir a la selección un cambio ocurrido después de la reproducción diferencial.
En nuestro ejemplo, la frecuencia después de la selección fiel era 0,544. Supongamos que el uno por ciento de los descendientes procedentes de C cambia a D y que no ocurre el cambio inverso. La frecuencia final será 0,544 multiplicado por 0,99, igual a 0,53856.
El cambio total respecto de la frecuencia inicial es 0,03856. La selección sumó 0,044 y la transmisión restó 0,00544. En la forma no normalizada de Price, el término de transmisión es −0,0136; al dividirlo por la contribución media dos coma cinco se obtiene la reducción indicada.
En evolución cultural, la correspondencia entre progenitor y descendiente puede ser más compleja. Una persona puede aprender de varias fuentes, cambiar de grupo o combinar reglas. Para aplicar una ecuación de transmisión necesitamos definir qué cuenta como copia, influencia o contribución. Si no hay una asignación única, puede ser necesario repartir pesos entre varias fuentes.
La expansión de una institución tampoco equivale necesariamente a la reproducción biológica de sus miembros. Puede crecer porque atrae participantes, porque otras organizaciones imitan sus reglas o porque desplaza alternativas. Estos procesos pueden representarse con contabilidades apropiadas, pero con unidades de contribución distintas, que la explicación debe mantener visibles.
La selección entre grupos culturales puede coexistir con conflicto dentro de ellos, pero observar el crecimiento de una organización no demuestra que sus reglas lo causen. Puede haber recursos externos, coerción o ventajas históricas que expliquen ambos. La asociación entre norma y éxito necesita investigación causal.
La utilidad de Price en estos contextos es ordenar contribuciones y cambios de transmisión. Su generalidad también obliga a no confundir una identidad aplicable a muchas clases de cambio con una prueba de que todos esos cambios son el mismo proceso evolutivo. La definición de las unidades y de los vínculos de transmisión es parte del argumento.
9. Evidencia y diseño para separar escalas
Un estudio empírico de selección multinivel necesita medir la composición inicial, el cambio interno y la contribución final de cada grupo. Si solo registra frecuencias, puede perder diferencias de productividad; si solo registra tamaños finales, puede ignorar cambios de composición. La combinación permite reconstruir el balance global y comprobar la descomposición.
Chuang, Rivoire y Leibler estudiaron un sistema microbiano sintético en el que la proporción global de productores podía aumentar mientras disminuía dentro de subpoblaciones, una manifestación de la llamada paradoja de Simpson [3]. Su trabajo es una demostración experimental de cómo la estructura y los pesos de agregación pueden cambiar el signo del resultado observado. Eso no implica que toda reversión estadística tenga una explicación evolutiva semejante.
En un trabajo posterior, los mismos autores examinaron la cooperación y una formulación de la regla de Hamilton en un sistema sintético en el que modificaron características de la interacción [4]. Poder intervenir sobre componentes del sistema ayuda a distinguir una contabilidad compatible con los datos de una explicación que anticipa los efectos de cambios controlados.
Un diseño especialmente informativo puede variar la distribución inicial de cooperadores entre grupos manteniendo constante su frecuencia global. Si el modelo predice que la varianza entre grupos es decisiva, esa manipulación cambia el término pertinente. Después se comparan la productividad y la frecuencia final.
También puede variarse el modo de reunir los descendientes. Una mezcla proporcional a la producción y una contribución igual por grupo ponen a prueba consecuencias diferentes; en el ejemplo numérico, esas reglas producen signos opuestos del cambio global. Hay que registrar la regla de muestreo con el mismo cuidado que la conducta cooperativa.
La unidad estadística requiere atención. Muchos individuos dentro de un mismo grupo comparten ambiente e interacciones, por lo que no son réplicas independientes del efecto grupal. La incertidumbre del componente entre grupos depende del número de grupos y de su variación; ignorar esa dependencia puede exagerar la precisión de una covarianza.
Un contraejemplo numérico hace visible el problema causal. Conservemos los grupos de diez con frecuencias cooperadoras de ocho décimos y dos décimos, pero eliminemos todo beneficio de la cooperación sobre el grupo. Supongamos que los recursos externos permiten a A una contribución basal de cuatro y a B una de dos. Cooperar sigue costando una unidad. En A, cada cooperador deja tres descendientes y cada no cooperador cuatro; en B, uno y dos, respectivamente.
El grupo A produce treinta y dos descendientes esperados, veinticuatro de origen cooperador; el grupo B produce dieciocho, dos de origen cooperador. Al reunirlos, la frecuencia de C es veintiséis cincuentavos, igual a cero coma cincuenta y dos. La cooperación aumentó globalmente, aunque en este modelo solo tiene un efecto causal negativo sobre la contribución individual y ningún beneficio productivo grupal.
La asociación inicial entre la abundancia de cooperadores y los recursos externos explica el aumento. Si intercambiamos las composiciones de los grupos manteniendo sus recursos, A contiene dos C y produce treinta y ocho descendientes, seis de ellos cooperadores; B contiene ocho C y produce doce, ocho de ellos cooperadores. La frecuencia global final pasa a catorce cincuentavos, igual a cero coma veintiocho.
La ecuación de Price se cumple en ambos escenarios, pero, como identidad, no puede decidir si la cooperación produjo la diferencia ambiental o simplemente quedó asociada con ella. Este contraste muestra por qué una covarianza entre grupos requiere un modelo causal antes de interpretarse como beneficio generado por la conducta.
Finalmente, deben medirse los factores ambientales que puedan covariar con la composición y la productividad. Si los grupos más cooperadores reciben mejores recursos por razones externas, una covarianza positiva entre cooperación y crecimiento puede reflejar esa diferencia; la identidad seguirá siendo correcta, pero su interpretación causal cambiará. Las intervenciones y los controles ayudan a establecer qué parte del balance produce la cooperación misma.
10. Qué demuestra una descomposición y qué queda por explicar
La ecuación de Price permite comprobar que el cambio global coincide con la suma de contribución diferencial y transmisión. La partición por grupos muestra cuánto del balance corresponde a diferencias entre grupos y cuánto a diferencias internas. Estas operaciones son útiles porque obligan a mantener pesos y unidades consistentes.
El ejemplo de dos grupos produjo una disminución cooperadora dentro de ambos y un aumento global de 0,044. La productividad diferencial cambió el peso del grupo inicialmente más cooperador. Cuando obligamos a los grupos a contribuir por igual, el aumento desapareció. La regla de agregación era una parte causal del proceso.
La formulación mediante asociación recuperó la misma condición selectiva. El coeficiente que relaciona al actor con la composición grupal resumió la distribución de tipos relevante para el modelo. Al excluir al actor del promedio social tuvimos que cambiar también los coeficientes de costo y beneficio; la equivalencia exigió conservar toda la contabilidad.
Una tendencia de una generación deja abiertas preguntas sobre la regeneración de la variación, la duración de los grupos y la transmisión. Si la estructura se disuelve después de cada ciclo, el resultado puede cambiar. Si las reglas se copian imperfectamente, el término de transmisión puede reforzar o contrarrestar la selección. La predicción requiere especificar esos procesos.
El análisis multinivel tampoco convierte automáticamente al grupo en una entidad que maximiza su bienestar. Los grupos pueden crecer por razones ajenas a una conducta; por otra parte, las conductas que favorecen su expansión pueden imponer costos a sus miembros o a terceros. La descripción evolutiva y la evaluación normativa responden a preguntas diferentes.
El último capítulo del módulo reunirá los mecanismos estudiados en un caso comparativo. Veremos cómo la asociación, la repetición y los incentivos institucionales pueden sostener la cooperación con parámetros diferentes y cómo distinguirlos mediante perturbaciones. La finalidad será pasar de una frecuencia cooperadora observada a explicaciones que den predicciones verificables sobre su mantenimiento y su pérdida.
Referencias
- Price, G. R. (1972). Extension of covariance selection mathematics. Annals of Human Genetics, 35(4), 485–490. https://doi.org/10.1111/j.1469-1809.1957.tb01874.x
- Traulsen, A., y Nowak, M. A. (2006). Evolution of cooperation by multilevel selection. Proceedings of the National Academy of Sciences, 103(29), 10952–10955. https://doi.org/10.1073/pnas.0602530103
- Chuang, J. S., Rivoire, O., y Leibler, S. (2009). Simpson's paradox in a synthetic microbial system. Science, 323(5911), 272–275. https://doi.org/10.1126/science.1166739
- Chuang, J. S., Rivoire, O., y Leibler, S. (2010). Cooperation and Hamilton's rule in a simple synthetic microbial system. Molecular Systems Biology, 6, 398. https://doi.org/10.1038/msb.2010.57