Módulo 28. Juegos evolutivos y cooperación
1. Qué exige explicar una conducta cooperativa
Dos personas pueden obtener un beneficio trabajando juntas y, aun así, tener incentivos para trasladar parte del esfuerzo a la otra. Una célula puede beneficiarse de una molécula producida por sus vecinas sin contribuir a su síntesis. En ambos casos hay una interacción social, pero todavía falta establecer si estamos ante el mismo problema evolutivo. Para hacerlo necesitamos describir quién actúa, quién recibe las consecuencias y cómo se traducen estas en reproducción, supervivencia o aprendizaje. La palabra cooperación orienta la pregunta, aunque especificar un mecanismo exige algo más.
Conviene comenzar con una distinción entre conducta y motivación. En un modelo evolutivo, una acción puede beneficiar a otros sin que su ejecutor represente mentalmente ese beneficio. Una bacteria no necesita tener intenciones generosas para liberar un producto aprovechable por otras. En humanos, una misma acción observable puede responder al afecto, a una obligación, a una recompensa esperada o a varias razones simultáneas. La teoría de juegos permite estudiar las consecuencias de la acción bajo supuestos explícitos, pero no identifica automáticamente los motivos psicológicos que la originan.
También debemos precisar el sentido de costo. Que producir una sustancia consuma energía no implica que reduzca la aptitud del productor, porque ese gasto puede aumentar su supervivencia o atraer interacciones beneficiosas. Para hablar de altruismo biológico se necesita una comparación pertinente entre alternativas, con un costo para el actor y un beneficio para el receptor en la medida de aptitud considerada. Cambiar el horizonte temporal, la condición ambiental o el conjunto de receptores puede alterar esa clasificación. Un costo inmediato y un costo reproductivo neto son cantidades diferentes.
La dificultad central aparece cuando una acción mejora un resultado colectivo, pero pierde frente a otra alternativa en la comparación individual que determina la transmisión. El resultado colectivo podría ser la producción total, la supervivencia del grupo o el bienestar agregado; la comparación individual podría depender del número de descendientes o de la probabilidad de imitar una estrategia. No hay razón general para que ambas ordenaciones coincidan. Antes de explicar la cooperación hay que comprobar que esa divergencia existe en el sistema estudiado.
Este capítulo construye varios ejemplos con números sencillos para identificar qué obstáculo enfrenta una conducta en cada caso. Los pagos son magnitudes hipotéticas; ninguno se ha estimado en una población concreta. La misma palabra cooperación aparecerá en matrices con consecuencias distintas. Como un mecanismo capaz de resolver un problema de explotación puede ser insuficiente frente a uno de coordinación, el diagnóstico del juego antecede a la elección de su explicación.
2. Una contribución que beneficia al compañero
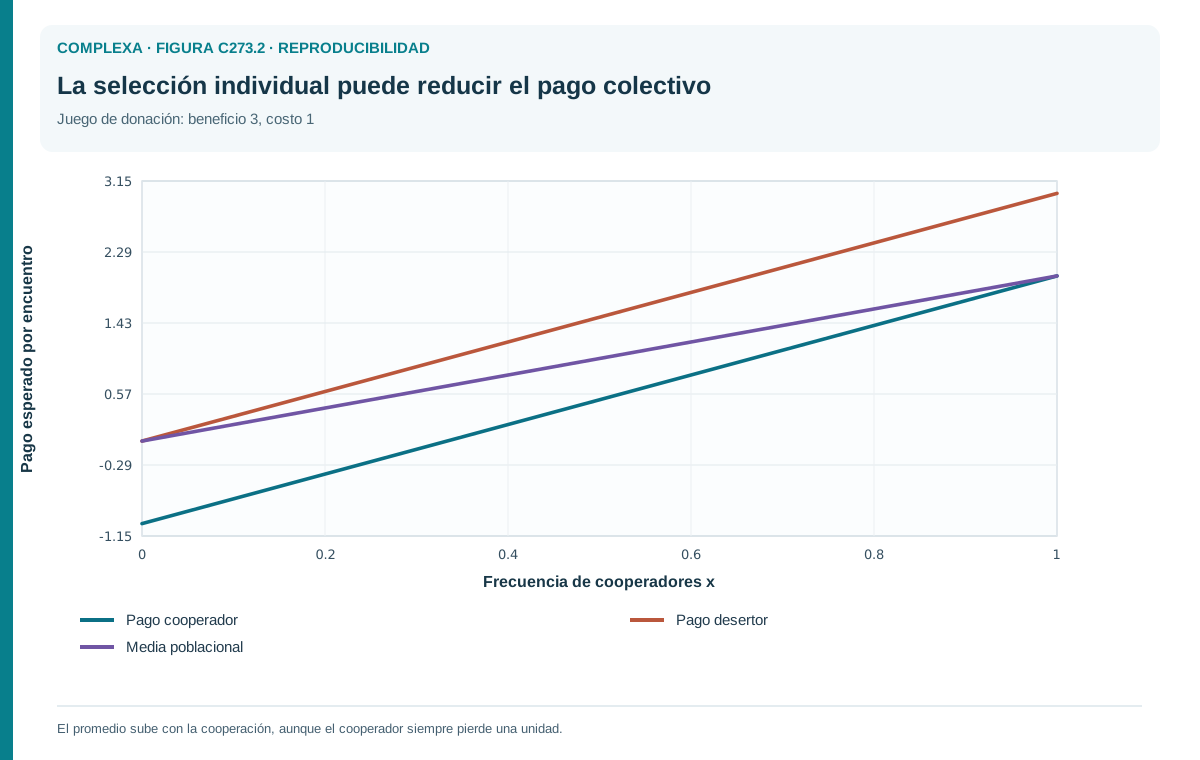
Imaginemos encuentros entre dos individuos. Cada uno puede cooperar, C, entregando al compañero un beneficio de tres unidades a un costo propio de una unidad, o abstenerse, D. Los efectos se suman, de modo que recibir ayuda aporta tres unidades y prestarla resta una. La matriz de pagos del jugador de la fila es
Si ambos cooperan, cada uno recibe tres y paga una, con un resultado neto de dos. Si solamente uno coopera, este obtiene menos uno y el otro obtiene tres. Si ninguno coopera, ambos obtienen cero. Los pagos negativos son pérdidas respecto de una referencia. No son números negativos de descendientes, de modo que, cuando queramos traducirlos en reproducción discreta, necesitaremos una función de aptitud que produzca cantidades biológicamente admisibles.
Supongamos encuentros aleatorios en una población grande y llamemos x a la frecuencia de C. Un cooperador encuentra otro cooperador con probabilidad x, por lo que su pago esperado es dos por x más menos uno por uno menos x. Un no cooperador recibe tres cuando encuentra C y cero cuando encuentra D. Así,
La desventaja del cooperador no depende de cuántos cooperadores haya. Con independencia de lo que haga el compañero, abstenerse de pagar el costo mejora el pago propio en una unidad; esta propiedad se llama dominancia estricta de D. Sin embargo, una población formada enteramente por C obtiene dos unidades por individuo, mientras que una formada enteramente por D obtiene cero. La comparación individual favorece una estrategia cuya expansión destruye el beneficio colectivo disponible.
Sigamos una generación concreta. Si añadimos dos unidades a cada pago para obtener aptitudes positivas, el cooperador tiene aptitud uno más tres x y el no cooperador, dos más tres x. Si al principio coopera la mitad de la población, esas aptitudes valen dos coma cinco y tres coma cinco, con una media de tres. Tras reproducción proporcional a la aptitud, la frecuencia cooperadora pasa de un medio a cinco doceavos, aproximadamente cero coma cuatrocientos diecisiete.
El pago medio de la población es dos x; antes de esa generación vale uno y después, cinco sextos. El cambio favorece al tipo que se reproduce más y reduce el pago medio de la interacción. No hay contradicción, porque la selección compara rendimientos relativos en la población presente sin contrastar deliberadamente el estado actual con todos los estados colectivos alcanzables. En la diferencia entre esas dos operaciones está el problema que queremos explicar.
3. Qué caracteriza al dilema del prisionero
La matriz anterior es un caso particular del dilema del prisionero. Sus cuatro resultados suelen nombrarse mediante R, la recompensa de la cooperación mutua; T, la tentación de aprovechar al cooperador; P, el pago de la defección mutua; y S, el pago de quien coopera mientras el otro no lo hace. La ordenación decisiva es T mayor que R, R mayor que P y P mayor que S. La primera y la última desigualdad hacen que D domine estrictamente; la desigualdad central expresa la superioridad de la cooperación mutua sobre la defección mutua.
A veces se añade la condición dos R mayor que T más S, que establece que dos encuentros de cooperación mutua producen más pago conjunto que alternar quién explota a quién. Resulta útil para ciertas preguntas sobre juegos repetidos, pero no debe confundirse con la ordenación básica que define la dominancia. En nuestro ejemplo, dos R vale cuatro y T más S vale dos. Se cumplen ambas condiciones, aunque describen comparaciones distintas.
Si usamos una dinámica continua del replicador con el pago como tasa relativa, obtenemos
Para cualquier frecuencia interior, la proporción de cooperadores disminuye. Partiendo de x igual a cero coma ocho, la solución es
Después de dos unidades de tiempo, la frecuencia es aproximadamente cero coma trescientos cincuenta y uno. La unidad temporal depende de la escala del modelo, así que la ecuación no indica si una población real tardaría dos días o dos generaciones en experimentar ese cambio. Con estas interacciones y esta regla de actualización, lo que establece es que la dirección selectiva favorece a D en todo el interior.
La población enteramente cooperadora es un estado estacionario de la ecuación porque no contiene individuos D. Sin mutación, inmigración o experimentación, la dinámica no inventa estrategias ausentes. Un estado estacionario puede, sin embargo, ser vulnerable a la introducción de una alternativa. Si aparece una pequeña cantidad de D, cada uno obtiene casi tres mientras los C obtienen casi dos. Por eso la cooperación completa es invadible; su carácter estacionario no implica estabilidad frente a perturbaciones.
La interpretación cambia si la frecuencia observada permanece alta durante cierto período. Puede haber pocos invasores, transmisión lenta, asociaciones no aleatorias o beneficios futuros omitidos. También puede haber una medición incorrecta de los pagos. El modelo da una predicción condicional que ayuda a buscar esas diferencias, pero no autoriza a concluir que toda cooperación observada refuta la selección ni que necesariamente existe un beneficio oculto capaz de explicar cualquier resultado.
4. Cuando cooperar también conviene individualmente
Consideremos ahora la matriz
Aquí C obtiene una unidad más que D frente a cualquiera de las dos estrategias del compañero. Sus pagos esperados son uno más dos x y dos x, respectivamente. C domina estrictamente y aumenta bajo selección determinista en una población mezclada. La cooperación mutua produce tres por individuo y cooperar es, además, la mejor respuesta individual. Hay beneficio social, pero desaparece el conflicto de incentivos que caracterizaba al dilema anterior.
Este caso puede describir una acción que ayuda a otros y da, a la vez, un beneficio privado suficiente. Por ejemplo, una modificación ambiental podría proteger al productor y a sus vecinos. El beneficio colectivo no deja de ser relevante porque exista beneficio privado. Lo que cambia es la pregunta explicativa. Sigue siendo necesario comprender cómo surge y se mantiene la acción, pero ya no hay que explicar por qué persiste una estrategia sistemáticamente desfavorecida en la comparación individual que especifica la matriz.
La diferencia entre ambas matrices tampoco se resuelve mediante una etiqueta moral. Un comportamiento puede parecer generoso desde fuera y resultar ventajoso para su ejecutor; otro puede parecer poco costoso y producir una desventaja reproductiva importante. En sistemas humanos, además, las utilidades pueden incorporar satisfacción, compromisos o preocupación por otras personas. Si introducimos esas preferencias en el pago, debemos reconocer que hemos cambiado la variable que maximiza el modelo y que ese pago ya no mide exclusivamente dinero o descendencia.
Un problema frecuente es inferir el costo a partir del esfuerzo observado. Si una persona dedica una hora a una tarea compartida, esa hora es un recurso, pero la evaluación completa depende de qué habría hecho en su ausencia y de qué obtiene al participar. Puede ganar información, conservar una relación o evitar una pérdida mayor. Identificar estas consecuencias requiere observaciones independientes; añadir beneficios hipotéticos después de conocer el resultado vuelve demasiado flexible la explicación.
También puede ocurrir que una acción sea individualmente ventajosa solo en ciertos ambientes. Si el beneficio privado disminuye cuando cambia la temperatura o aumenta la disponibilidad del recurso, la misma conducta puede pasar de dominancia cooperadora a coexistencia o a desventaja constante. La clasificación es una propiedad de la relación entre estrategias, ambiente y consecuencias.
De la comparación se sigue una precaución. Antes de invocar parentesco, reciprocidad o sanciones, conviene comprobar si hace falta alguno de esos mecanismos para explicar la persistencia. Un beneficio privado suficiente es una hipótesis contrastable. Si explica los datos, agregar mecanismos sociales puede mejorar otras predicciones, pero ya no resuelve el dilema de incentivos supuesto al principio.
5. Cooperación favorecida cuando es escasa
Un tercer caso aparece cuando la ventaja depende de la frecuencia. Imaginemos una tarea que, una vez hecha, da un beneficio de tres unidades a cada participante. Ejecutarla cuesta dos unidades, que se reparten si ambos contribuyen. Si ninguno actúa, no hay beneficio. La matriz queda
Cuando ambos cooperan, cada uno recibe tres y paga uno. Cuando solamente uno coopera, paga dos y conserva un beneficio neto de uno; el compañero recibe tres. Frente a D conviene, pues, hacer la tarea antes que dejarla sin hacer; frente a C, en cambio, conviene beneficiarse de su contribución. Este patrón se conoce como juego del montón de nieve o snowdrift y comparte la estructura estratégica de otros juegos de coexistencia.
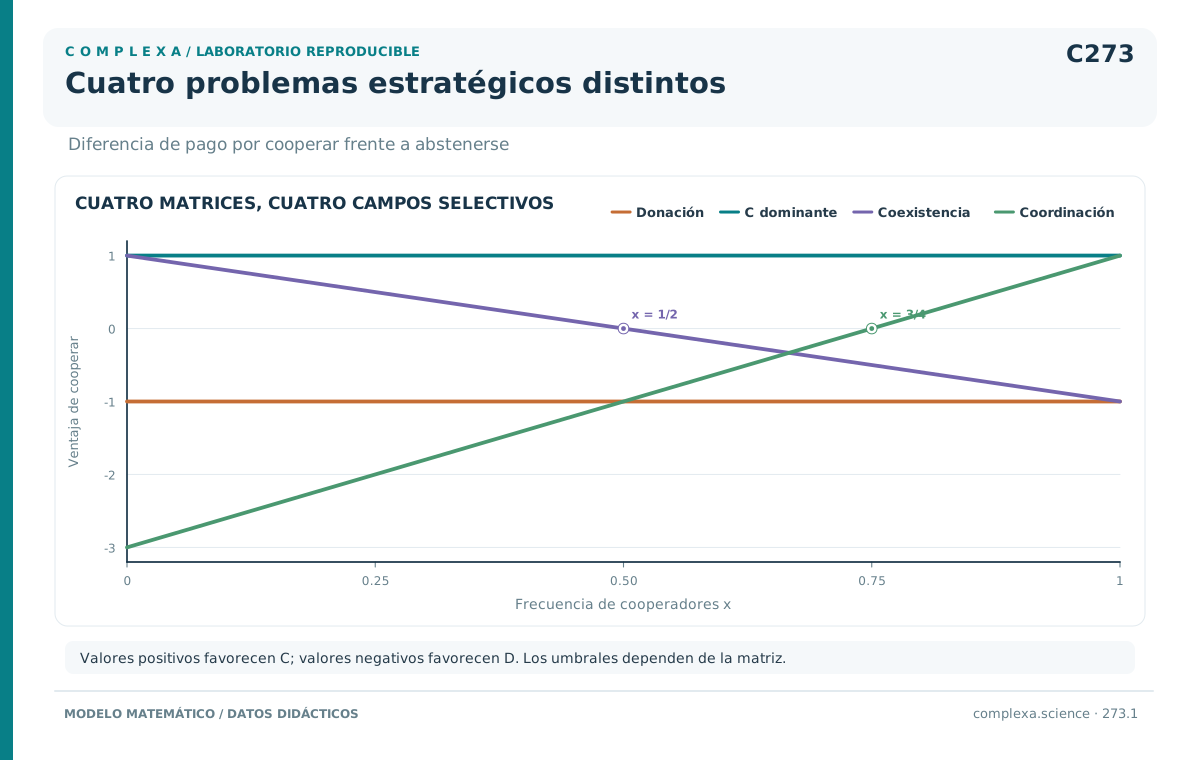
En una población mezclada, el pago de C es uno más x y el de D es tres x. La diferencia es uno menos dos x. Si C es escaso, encuentra principalmente D y tiene ventaja. Si C es abundante, los D encuentran oportunidades de aprovechamiento y son ellos quienes tienen ventaja. La dinámica del replicador conduce al equilibrio interior x igual a un medio, donde las dos estrategias obtienen uno coma cinco unidades por individuo.
Este equilibrio no maximiza necesariamente la producción colectiva; la cooperación completa daría dos por individuo, más que el pago del equilibrio. Sin embargo, a diferencia del dilema del prisionero, la cooperación puede recuperarse desde una frecuencia pequeña. En esta matriz no hace falta un mecanismo que permita esa invasión, porque la propiedad ya está incorporada en los pagos. Sí quedan preguntas sobre la frecuencia final, la variabilidad y las condiciones que permiten la coexistencia.
La diferencia tiene consecuencias experimentales. Si observamos que los cooperadores escasos aumentan y los abundantes disminuyen, ese patrón es compatible con una ventaja dependiente negativamente de la frecuencia. Para sostenerlo hay que medir cambios desde varias frecuencias iniciales. Una sola mezcla que conserve aproximadamente su composición podría reflejar ausencia de selección, equilibrio estable o cambios demasiado lentos para detectarlos. El diseño debe distinguir estas posibilidades.
Gore, Youk y van Oudenaarden estudiaron una interacción de producción y aprovechamiento de invertasa en levaduras y encontraron condiciones compatibles con dinámica de snowdrift y coexistencia dependiente de la frecuencia [2]. El ejemplo muestra que una molécula compartida no implica necesariamente un dilema del prisionero, porque la fracción de beneficio que retiene el productor y la relación entre recurso y crecimiento pueden modificar los incentivos.
Tampoco debemos convertir ese resultado en una regla universal para microorganismos. La geometría del cultivo, la concentración del sustrato y la función de crecimiento son parte del sistema; un cambio en esas condiciones puede alterar la matriz efectiva. La clasificación debe apoyarse en las consecuencias medidas bajo el régimen experimental concreto.
6. Cuando el obstáculo es coordinarse
Si C es una actividad productiva que requiere suficientes participantes y D es una alternativa segura, consideremos la matriz
La cooperación mutua produce cuatro por individuo. Si una persona intenta cooperar mientras la otra elige la alternativa segura, obtiene cero. Quien elige D recibe tres cualquiera que sea la acción ajena. En una población mezclada, C obtiene cuatro x y D obtiene tres. La diferencia es cuatro x menos tres, de modo que el umbral aparece en x igual a tres cuartos.
Por debajo de ese umbral, C disminuye; por encima, aumenta. Las dos fronteras son atractoras y el equilibrio interior es inestable. Una población puede permanecer en el estado de menor pago colectivo porque una introducción pequeña de cooperadores fracasa. En cambio, si suficientes individuos cambian a la vez, la cooperación puede mantenerse sin que D tenga ventaja cuando es raro. El problema es alcanzar la cuenca de atracción adecuada.
Esta estructura suele describirse mediante juegos de coordinación, como ciertas versiones de la caza del ciervo. La incertidumbre sobre la participación de otros puede desalentar una acción cuyo rendimiento sería alto si se hiciera conjuntamente. Una garantía creíble, una señal pública o una implementación gradual pueden cambiar las expectativas o reducir la pérdida de participar sin compañeros. Son intervenciones dirigidas a un problema diferente del que plantea la dominancia estricta de D.
La diferencia puede verse con una perturbación pequeña. En el dilema del prisionero, una población casi enteramente cooperadora permite que D aumente. En esta matriz de coordinación, un D raro obtiene tres mientras la mayoría C obtiene casi cuatro, de modo que D disminuye; un C raro entre D, por su parte, obtiene casi cero y también disminuye. La composición inicial determina, por tanto, hacia cuál de las dos fronteras se mueve la población.
Un acuerdo verbal no cambia necesariamente los pagos. Si carece de credibilidad o si los participantes no pueden observar su cumplimiento, quizá no modifique las decisiones. Del mismo modo, una subvención temporal puede facilitar el cruce del umbral, pero habrá que verificar que la cooperación siga siendo estable cuando se retire. La política pertinente depende de qué elemento del juego se está modificando y de cuánto dura esa modificación.
Esta distinción evita atribuir todos los fracasos colectivos al oportunismo. Algunas personas pueden estar dispuestas a participar siempre que exista una expectativa razonable de participación ajena. La tarea empírica es separar esa respuesta condicional de una preferencia estable por abstenerse. Experimentos con información, garantías o cambios en la proporción inicial pueden ayudar, siempre que sus efectos se interpreten dentro del diseño concreto.
7. De dos participantes a un bien público
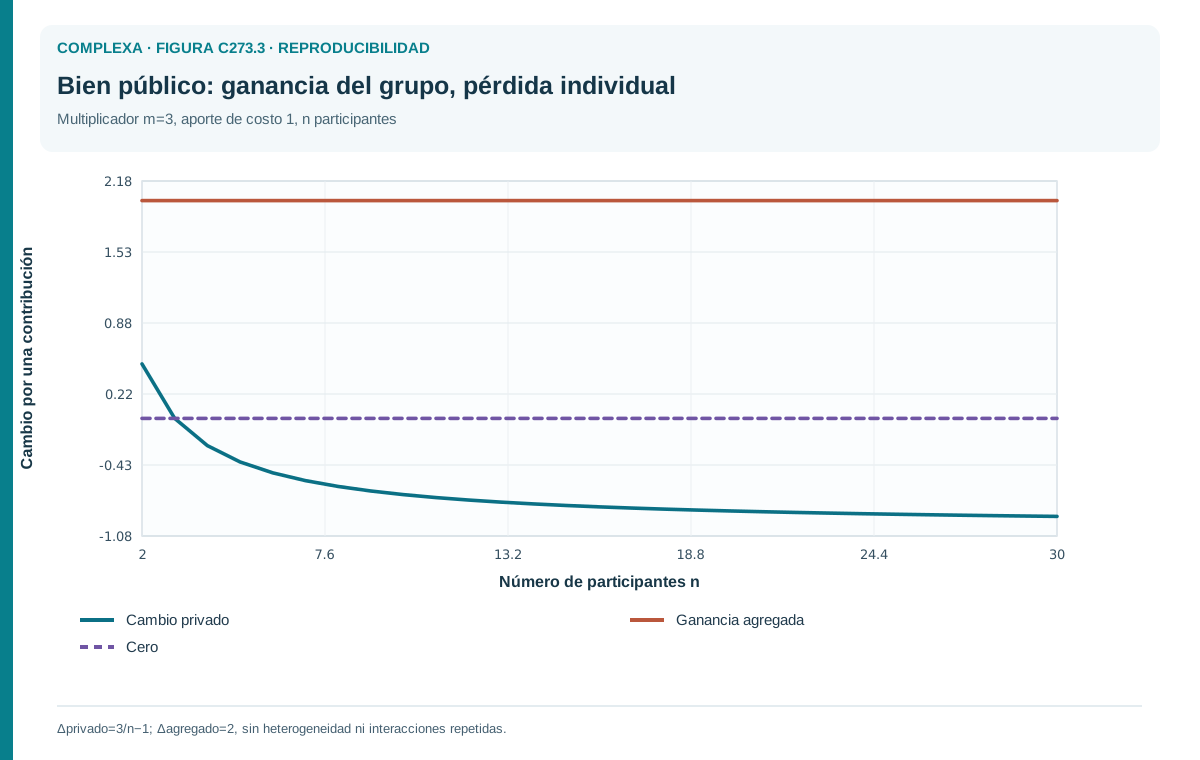
Muchos problemas colectivos involucran a más de dos personas. Un modelo sencillo reúne grupos de cinco, en los que cada participante puede aportar una unidad a un fondo común. La suma se multiplica por tres y se reparte por igual entre los cinco integrantes, hayan contribuido o no. Si los otros cuatro participantes hacen k contribuciones, quien coopera obtiene tres veces k más uno, dividido por cinco, menos su costo de una unidad. Quien no coopera obtiene tres k dividido por cinco.
La diferencia individual entre cooperar y no hacerlo, manteniendo constantes las contribuciones ajenas, es
Cada contribución cuesta una unidad y devuelve al contribuyente solamente cero coma seis. Las otras cuatro personas reciben en conjunto dos coma cuatro. El rendimiento total aumenta en dos unidades, pero quien hace el aporte pierde cero coma cuatro frente a la alternativa de abstenerse.
Si todos contribuyen, el fondo contiene cinco unidades, se transforma en quince y cada persona recibe tres. Descontando el aporte, cada una obtiene dos, con un resultado neto total de diez. Si nadie contribuye, todos obtienen cero. La contribución de una sola persona produce un pago neto de menos cero coma cuatro para ella y cero coma seis para cada una de las otras cuatro. La suma vuelve a ser dos, como exige el balance del modelo.
En general, con n participantes, costo unitario y factor multiplicador r, el retorno privado de contribuir es r dividido por n y el incremento colectivo neto es r menos uno. Hay un dilema lineal de este tipo cuando r es mayor que uno y menor que n. Si r supera n, contribuir puede ser individualmente ventajoso. Si r es menor que uno, ni siquiera aumenta el pago colectivo total en esta formulación.
Estos resultados presuponen que el fondo crece linealmente y que el reparto es igualitario. Un umbral mínimo para activar el proyecto, una saturación de beneficios o un reparto proporcional al aporte generan otros incentivos. También cambia el problema si la pertenencia al grupo depende de contribuciones anteriores. Hablar de un bien público deja sin fijar todas esas características.
Debemos distinguir, además, dos comparaciones. Una pregunta qué ocurre cuando la misma persona cambia su decisión manteniendo a los demás constantes. Otra compara cooperadores y no cooperadores muestreados de una población finita con composición fija; en esa población, conocer el tipo del focal cambia ligeramente la composición posible de sus compañeros. La diferencia estadística resultante no debe confundirse con el efecto causal de cambiar únicamente la acción del focal.
8. Qué pueden cambiar los mecanismos de cooperación
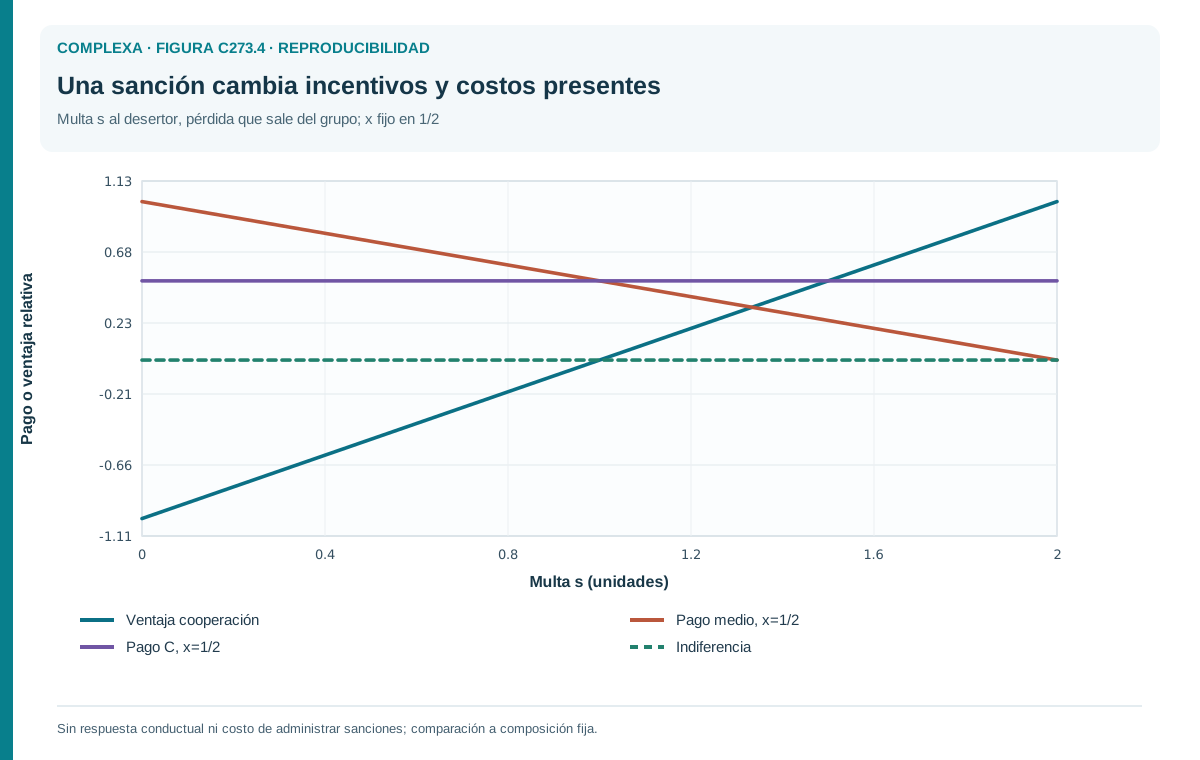
Parentesco, estructura espacial, repetición, reputación y sanciones aparecen con frecuencia como explicaciones de cooperación. Para usarlos con precisión hay que mostrar qué término modifican. Una asociación positiva entre cooperadores puede aumentar la probabilidad de que quien paga un costo reciba beneficios de otros cooperadores. La repetición puede hacer que una ganancia presente tenga consecuencias futuras. La reputación puede influir en la elección de compañeros o en el trato recibido en interacciones posteriores.
Una sanción modifica el rendimiento de ciertas conductas, pero requiere recursos y un procedimiento de aplicación. Si castigar es costoso, hay que preguntar quién sostiene ese gasto. Si la sanción depende de observaciones imperfectas, también puede afectar a contribuyentes. Añadir una penalización a la matriz no prueba que exista una institución capaz de imponerla de manera estable; ese paso necesita un modelo o evidencia adicional.
La estructura espacial tampoco tiene un efecto uniforme. Puede favorecer agrupamientos de cooperadores, pero también restringir beneficios, intensificar la competencia local o proteger fronteras entre estrategias. Hauert y Doebeli mostraron que la estructura espacial podía dificultar la cooperación en las condiciones de un juego de snowdrift que estudiaron [3]. Ese resultado impide convertir la proximidad en una explicación automática, porque el efecto depende del juego y de cómo se actualizan las estrategias.
La reciprocidad, por su parte, necesita que la conducta presente tenga consecuencias posteriores. Si los encuentros se repiten pero las acciones no pueden observarse, o si los compañeros cambian de manera imprevisible, la estrategia condicional puede perder eficacia. El trabajo de Axelrod y Hamilton es una referencia histórica para estudiar la cooperación mediante interacciones repetidas [1]. Sus resultados deben leerse junto con las reglas de los encuentros y las estrategias consideradas.
Cada mecanismo puede tratarse como una hipótesis que produce diferencias observables. La asociación predice cambios al reorganizar compañeros. La reciprocidad predice sensibilidad a la continuidad de la relación. La reputación predice efectos de la información social. Las sanciones predicen respuestas a su probabilidad y magnitud, aunque esas respuestas puedan interactuar con normas y preferencias. Ninguna de estas predicciones tiene por qué ser exclusiva de un solo mecanismo.
Por eso un resultado cooperativo no identifica su causa. Dos sistemas pueden alcanzar la misma frecuencia mediante procesos diferentes y responder de manera opuesta a una intervención. El análisis gana fuerza cuando compara predicciones fuera de la condición en la que se ajustaron los parámetros. Los capítulos siguientes desarrollarán estos mecanismos con modelos que permitan distinguir sus supuestos.
9. Cómo investigar el conflicto sin darlo por supuesto
Un estudio de cooperación necesita una unidad de análisis clara. En un cultivo puede ser una célula o un linaje; en una tarea humana, una persona, un equipo o una institución. Después debe definirse qué cuenta como contribución y cómo se mide su consecuencia. El uso indistinto de crecimiento, supervivencia, dinero y satisfacción puede producir conclusiones incompatibles si cada variable responde a un mecanismo diferente.
Una primera estrategia es comparar resultados frente a distintos compañeros. Para estimar una matriz de dos estrategias se requieren observaciones de las cuatro combinaciones o un diseño que identifique sus efectos. Si solamente se observan grupos cooperadores exitosos, faltan las comparaciones necesarias para determinar si un no cooperador podría aprovecharlos.
Una segunda estrategia modifica las frecuencias iniciales. Si la ventaja relativa de C permanece negativa, los datos pueden apoyar un dilema de dominancia bajo las condiciones estudiadas. Si cambia de positiva a negativa al aumentar C, aparece una señal compatible con coexistencia estable; si cambia de negativa a positiva, el patrón sugiere coordinación. Estas inferencias requieren controlar cambios simultáneos en densidad, recursos y composición del ambiente.
También conviene separar los efectos de corto plazo de los resultados acumulados. Una acción puede reducir el crecimiento inmediato y aumentar la supervivencia posterior, de modo que medir solo la primera fase daría una clasificación distinta de la que da el ciclo completo. Sin embargo, extender el horizonte no debe convertirse en una búsqueda indefinida de beneficios compensatorios. El período pertinente debe justificarse por la biología o por la pregunta social.
La incertidumbre pesa sobre todo cerca de los límites entre juegos. Si dos pagos son casi iguales y sus estimaciones son imprecisas, quizá no podamos decidir si una estrategia domina o si hay un equilibrio interior. Presentar una matriz puntual sin intervalos puede ocultar esa ambigüedad. Un análisis de sensibilidad puede mostrar qué ordenaciones son compatibles con los datos y qué nuevas observaciones resultarían informativas.
Por último, la transmisión debe medirse o justificarse. Una ventaja monetaria no garantiza que una conducta sea imitada; una ventaja de crecimiento en laboratorio tampoco implica mayor descendencia en todo el ciclo natural. La regla que traduce pagos en cambios de frecuencia es parte del modelo. Si se mantiene explícita, el desacuerdo entre predicción y observación señala qué supuesto conviene revisar.
10. Del nombre del juego a una explicación contrastable
Los ejemplos permiten organizar el problema mediante preguntas concretas. ¿Cooperar beneficia al actor frente a cualquiera de las alternativas ajenas? ¿Lo beneficia solamente cuando es escaso? ¿Necesita una mayoría cooperadora para resultar ventajoso? ¿Pierde siempre en el encuentro individual, aunque la cooperación general produzca más? Cada respuesta define una dificultad distinta y orienta hacia intervenciones diferentes.
En el juego de donación, aumentar la proporción inicial no elimina la ventaja de D. En el juego de coexistencia, la cooperación puede aumentar desde frecuencias pequeñas, aunque no llegue a dominar. En el juego de coordinación, una introducción suficientemente grande puede cambiar el destino de la población. En el ejemplo de beneficio privado, C aumenta sin necesidad de asociación especial. Estas diferencias se derivan de comparaciones explícitas entre pagos; el aspecto cooperativo de las conductas no permite anticiparlas.
Una explicación completa debe conectar esas comparaciones con procesos materiales. El beneficio puede viajar por difusión, por intercambio directo o mediante una institución. Los costos pueden aparecer en energía, tiempo o riesgo. Las oportunidades futuras pueden depender de reconocimiento y memoria. La matriz resume estas relaciones, pero el trabajo empírico es establecer cuándo esa reducción representa adecuadamente el sistema.
Las simplificaciones también tienen un alcance temporal. Una matriz fija puede describir una fase de la interacción mientras el recurso permanece aproximadamente constante. Si la cooperación modifica el ambiente, los pagos posteriores pueden cambiar. Entonces la frecuencia de estrategias y el estado ambiental deben estudiarse conjuntamente. Un equilibrio calculado con pagos congelados puede desaparecer cuando incorporamos esa retroalimentación.
Nada de esto exige abandonar los modelos simples. Son útiles porque permiten localizar el supuesto responsable de una predicción y calcular qué ocurriría al modificarlo. El modelo de donación muestra con claridad cómo una ventaja individual puede deteriorar un resultado colectivo. Los otros modelos muestran por qué esa trayectoria no se puede extrapolar a toda interacción cooperativa.
El paso siguiente será precisar qué significa resistir una invasión y qué significa recuperar un estado después de una perturbación, dos preguntas próximas pero distintas. Una cooperación observada puede persistir por estabilidad local, por ausencia de alternativas o por una historia particular. Distinguir esas posibilidades permitirá evaluar mecanismos de mantenimiento sin confundir duración, eficiencia y resistencia evolutiva.
Referencias
- Axelrod, R., y Hamilton, W. D. (1981). The evolution of cooperation. Science, 211(4489), 1390–1396. https://doi.org/10.1126/science.7466396
- Gore, J., Youk, H., y van Oudenaarden, A. (2009). Snowdrift game dynamics and facultative cheating in yeast. Nature, 459, 253–256. https://doi.org/10.1038/nature07921
- Hauert, C., y Doebeli, M. (2004). Spatial structure often inhibits the evolution of cooperation in the snowdrift game. Nature, 428, 643–646. https://doi.org/10.1038/nature02360